鱼鳞作为鱼类皮肤的衍生物,兼具保护机体的生物学功能,同时也是水产加工过程中产生的大宗副产物。然而在实际生产中,鱼鳞常被当作废弃物直接丢弃,不仅造成资源的严重浪费,还易引发环境污染问题。相关研究证实,鱼鳞富含粗蛋白等营养物质[1],且具备提取胶原蛋白、抗菌肽等高附加值活性成分的潜力[2-3],相关提取与应用开发已成为水产副产物高值化利用领域的研究热点。
抗菌肽作为新型天然抑菌物质,广泛存在于各类生物中,按来源可分多类,水产动物抗菌肽是鱼、虾等防御系统的关键成分[4]。鱼类受病原体侵袭时,鱼鳞黏膜层会产生大量抗菌肽,作为防线和非特异性免疫分子。其低分子质量、耐热、广谱抗菌等特性,这为其在食品防腐中的应用提供了理论支撑[5]。迄今为止,诸多研究证实鱼鳞、黏液等鱼类加工副产物是抗菌肽提取的优质来源,相关研究多聚焦于提取工艺优化与基础抑菌性验证。例如,段晓琳等[6]从鲟鱼的黏液中成功纯化并鉴定了2种新型抗菌肽;王雪燕等[7]探究草鱼鱼鳞抗菌肽与肉桂精油联合作用的抑菌机理,但未深入解析抗菌肽自身的作用机制;董毓卿等[8]通过酶解法从草鱼鱼鳞中提取抗菌肽,核心围绕抑菌特性展开评估分析。鲫鱼作为常见的淡水鱼类,其鱼鳞中也被证实含有抑菌成分,但现有相关研究仍存在明显局限:顾晨涛等[9]从鲫鱼鱼鳞中酶解分离抗菌肽,施永清等[10]采用双酶消化法制备鲫鱼鱼鳞的抗菌肽。两者研究核心均集中于提取工艺优化与抑菌活性初步验证,未涉及抗菌肽的纯化分级与序列结构解析,更缺乏对其抑菌机制的系统性探究。
课题组前期以鲫鱼鱼鳞为原料,通过超声波辅助酶解获得具有基础抑菌效果的粗酶液。在此基础上,本研究突破粗提为主的局限,对粗酶液进行逐级精准分离,获得稳定抑菌活性的纯化肽段。结合肽段序列分析、结构解析,联合最低抑菌浓度(minimal inhibitory concentration,MIC)测定、扫描电子显微镜(scanning electron microscope,SEM)观察及细胞结构完整性检测等多种手段,系统探究鲫鱼鱼鳞抗菌肽的抗菌特性与理化性质,并深入阐明其抑菌机制,旨在为鲫鱼鱼鳞抗菌肽的食品保鲜应用提供更精准的理论支撑,同时也为鱼类加工副产物的高值化利用拓展思路。
1 材料与方法
1.1 实验材料
鲫鱼鱼鳞产自泰州水域,泰州市海陵区大润发超市;大肠杆菌 ZKCC10105、金黄色葡萄球菌,本实验室保存。交联葡萄糖Sephadex G-25 S14031,上海源叶生物科技有限公司;EDTA-2Na,天津市化学试剂研究所有限公司;琼脂培养基、营养肉汤,均为分析纯,北京路桥技术股份有限公司;胃蛋白酶BR,国药集团化学试剂有限公司;乙腈、肽段浓度测定标准品、肽段定量试剂盒,赛默飞世尔科技(中国)有限公司;二硫苏糖醇溶液、碘乙酰胺溶液,美国Sigma公司;0.1 g/L三氟乙酸、洗脱液(80 g/L 乙腈-20% 0.1 g/L 三氟乙酸)、50 mmol/L NH4HCO3,上海研生生化试剂有限公司;PBS、Triton X-100 (10 g/L) 、碱性磷酸酶试剂盒,上海碧云天生物技术有限公司。
1.2 试验设备
85-1恒温加热磁力搅拌器,金坛市杰瑞尔电器有限公司;HH数显恒温水浴锅,金坛市国胜试验仪器厂;B-260旋转蒸发仪,上海亚荣生化仪器厂;5810R高速冷冻离心机,艾本德实验室科技有限公司;PHS-3E酸度计,上海雷磁科学仪器厂;DHG-202-0A恒温干燥箱,绍兴亿纳电热智能干燥箱;WKS900B/3S超声波发生器,江苏江大五棵松生物科技有限公司;KDN-520全自动凯氏定氮仪,青岛路博建业环保有限公司;Amicn 8400搅拌式超滤器、MSM2013微滤超滤钠滤一体机,上海摩速科学仪器有限公司;Easy-nLC 1200/Q 液相色谱-质谱仪、NanoDropTM One/OneC 超微量分光光度计,赛默飞世尔科技(中国)有限公司;Labconco台式冻干机,北京照生行仪器设备有限公司; DH3600A恒温培养箱,天津市泰斯特仪器有限公司;JSM-6380LV型SEM,日本电子株式会社;722可见光分光光度计,上海仪电分析仪器有限公司。
1.3 实验方法
1.3.1 鲫鱼鱼鳞抗菌肽粗酶液提取
称取干燥鲫鱼鱼鳞,参照蒋慧亮等[11]的方法,在最佳酶解工艺下,制备抗菌肽粗酶液。
1.3.2 抗菌肽逐级分离纯化
1.3.2.1 抗菌肽分子质量范围测定
采用超滤的方式,取适量鱼鳞抗菌肽粗酶液注入超滤分离装置的储槽中,分别使用截留分子质量为10、5、3 kDa的超滤膜,分析各组分肽液对大肠杆菌的抗菌性和短肽回收率(percentage peptide recovery,PPR),以确定抗菌肽的分子质量范围。
1.3.2.2 抗菌肽色谱层析分离纯化
采用交联葡萄糖Sephadex G-25作为凝胶填料,进行色谱层析分离。参照张涛等[12]的方法,以3倍柱体积的蒸馏水为流动相,手动上样、洗脱流速1 mL/min,平衡流速1.33 mL/min。280 nm波长下测定收集组分浓度,绘制洗脱曲线。分离得到具有抗菌活性的肽液,用于肽段序列检测。
1.3.2.3 抗菌肽肽段序列分析
LC-MS/MS分析委托北京百泰派克生物科技有限公司进行测定,以获得具有抗菌性的肽序列。
1.3.3 最优抗菌肽确定
鉴定出的肽序列委托北京百泰派克生物科技有限公司,采用FMOC固相化学合成法进行合成,并进一步用于抑菌性能验证,确定最优抗菌肽。
1.3.4 抑菌性能测定
以E.coli为指示菌,采用双层牛津杯抑菌圈法测定抗菌肽粗酶液的抑菌性能。吸取1 mL E.coli菌悬液(1×10⁶ CFU/mL)于10 mL琼脂培养基溶液中制成上层培养基,放入无菌牛津杯,培养基凝固后,取出牛津杯,吸取100 μL鱼鳞抗菌肽粗酶液放入孔(直径0.6 cm)中。37 ℃培养24 h后,测量抑菌圈直径大小,同时以生理盐水作空白对照。
1.3.5 PPR测定
按照GB 5009.5—2025《食品安全国家标准 食品中蛋白质的测定》中凯氏定氮法分别测定干燥鱼鳞和酶解后抗菌肽液中的蛋白质含量,以酶解后抗菌肽液中蛋白质含量占原料鱼鳞中的蛋白质含量比例来表示PPR,其计算如公式(1)所示。
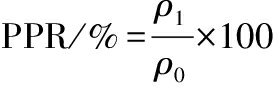
(1)
式中:ρ1,酶解后抗菌肽液中蛋白质的质量浓度,mg/L;ρ0,原料鱼鳞中的蛋白质质量浓度,mg/L。
1.3.6 最优抗菌肽MIC分析
参照Chi等[13]的方法,利用96孔板微量稀释法测定MIC。将指示菌S.aureus和E.coli分别接种至肉汤培养基中,培养至对数期(1×10⁶ CFU/mL),取100 μL菌悬液加入96孔板内。配置梯度浓度的抗菌肽液,分别取100 μL抗菌肽液加入菌悬液中。37 ℃下摇床培养36 h,酶标仪测定600 nm下吸光度值(optical density,OD)。
1.3.7 最优抗菌肽抑菌机制分析
细胞形态观察:将试验菌制备成浓度为106 CFU/mL的菌悬液备用,加入MIC浓度的最优抗菌肽液100 μL,再次培养8 h,制得抗菌肽处理组菌液,同步设置对照组。参照韩帅等[14]的方法,进行菌体细胞处理,通过SEM观察各指示菌菌体形态。
细胞膜完整性分析:用PBS洗涤试验菌重悬至1×10⁸ CFU/mL,加入抗菌肽溶液使其终浓度达到1×、2×和4× MIC,等体积无菌PBS做阴性对照。37 ℃水浴恒温培养,每间隔1 h取200 μL 样品,4 ℃、12 000 r/min离心取上清液,测定OD260和OD280。
细胞壁通透性分析:重悬沉淀制备菌悬液,加入抗菌肽溶液使其终浓度达到1×、2×和4× MIC,等体积无菌PBS为阴性对照组,0.3 g/L Triton X-100为阳性对照。37 ℃水浴1 h,12 000 r/min离心取上清液,参照碱性磷酸酶试剂盒说明书中的步骤,测定OD405,计算酶活力。
1.4 数据处理
所有实验均设3个平行,最终数据以“平均值±标准偏差”表示。用SPSS 22.0软件对实验结果进行统计分析和绘图。
2 结果与分析
2.1 抗菌肽分离纯化结果
2.1.1 抗菌肽分子质量范围测定结果
各分子质量段抗菌肽表现图1结果显示,超滤膜分级后获得的各分子质量段的抗菌肽液均表现出抑菌性,其中<3 kDa分子质量段的抗菌肽抑菌效果最为显著,其抑菌圈直径达到(2.31±0.11)cm。抑菌效果明显高于分子质量在3~5 kDa和5~10 kDa的抗菌肽。分子质量在5~10 kDa的抗菌肽抑菌活性最弱,抑菌圈直径仅为(1.09±0.05)cm。这一现象表明,具有较强抗菌活性的肽段主要富集在<3 kDa范围内。基于此关键发现,后续研究选择该区段的抗菌肽液进行Sephadex G-25凝胶色谱层析分离实验。相关研究显示,小分子质量(一般在1.5~5 kDa)抗菌肽的天然抗菌效果较强,在这个分子质量范围内,肽可以同时具备较好的穿透能力和形成有效膜破坏结构的能力[15]。金枪鱼内脏提取的低分子质量(<3 kDa)水解产物,低分子质量抗菌肽对食源性致病菌和腐败菌均具有明显的抑菌效果,与本研究的结果一致[16]。
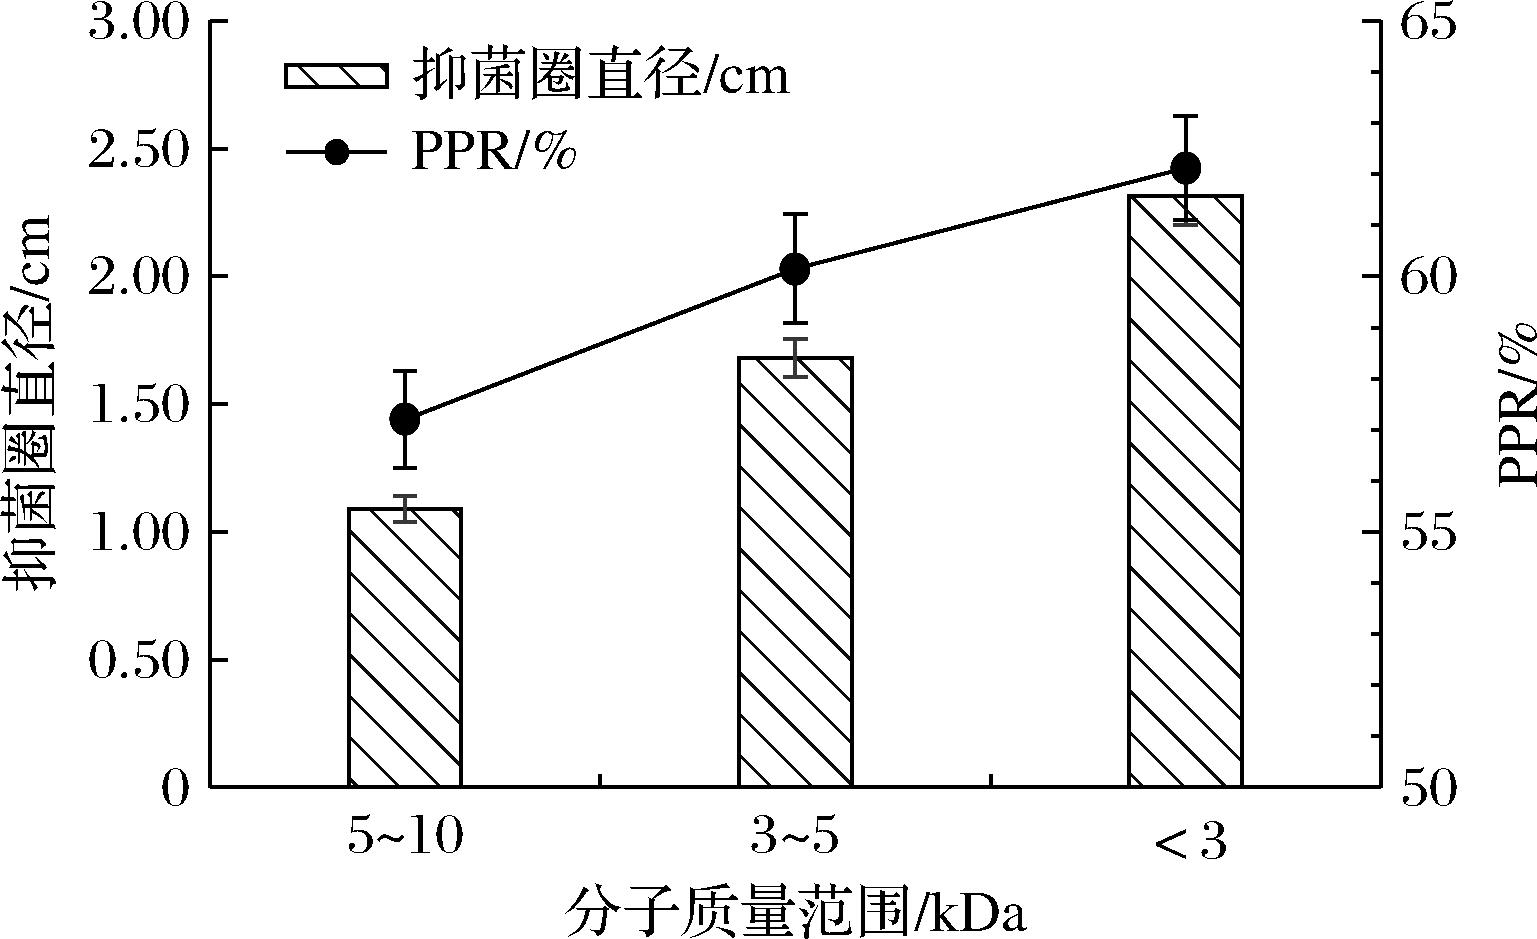
图1 不同分子质量范围抗菌肽的抑菌性和PPR
Fig.1 Antibacterial activity and their peptide recovery rate at different molecular mass ranges
2.1.2 抗菌肽色谱层析分离纯化结果
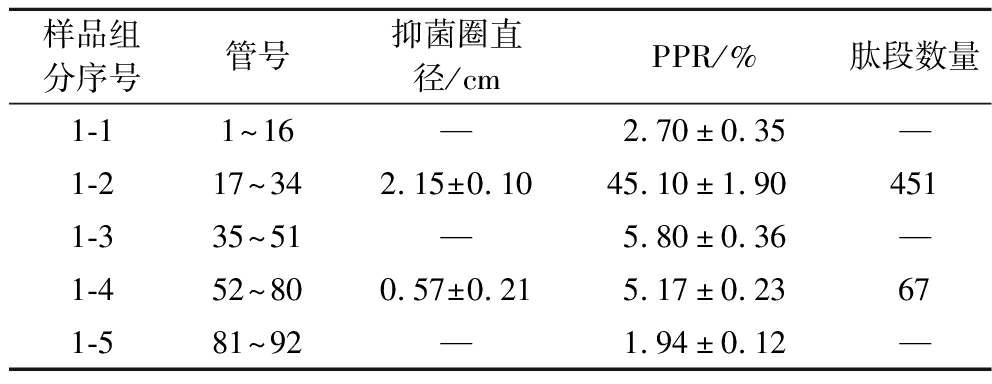
超滤后的抗菌肽液经Sephadex G-25凝胶色谱层析分离纯化,得到5个层析分离组分,如电子版增强出版附图1(https://doi.org/10.13995/j.cnki.11-1802/ts.045666)所示。各分离组分测定抑菌性和PPR结果如表1所示。抗菌活性的肽段只聚集在1-2组分段和1-4组分段,2组分段的抑菌圈直径分别为(2.15±0.10)cm和(0.57±0.21)cm。2个组分PPR分别为(45.10±1.90)%和(5.17±0.23)%。经LC-MS/MS分别对1-2和1-4组分肽段数量进行分析,分别获得451和67个肽段。由于1-2组分的抑菌活性和回收率均高于1-4组分,因此1-2组分的短肽主要开展后续研究。
表1 各组分肽液抑菌性和PPRTable 1 Antibacterial activity, peptide recovery rate of each component peptide solution
样品组分序号管号抑菌圈直径/cmPPR/%肽段数量1-11~16—2.70±0.35—1-217~342.15±0.1045.10±1.904511-335~51—5.80±0.36—1-452~800.57±0.215.17±0.23671-581~92—1.94±0.12—
注:“—”表示无抑菌活性、未测定肽段数量。
2.1.3 抗菌肽肽段序列分析结果
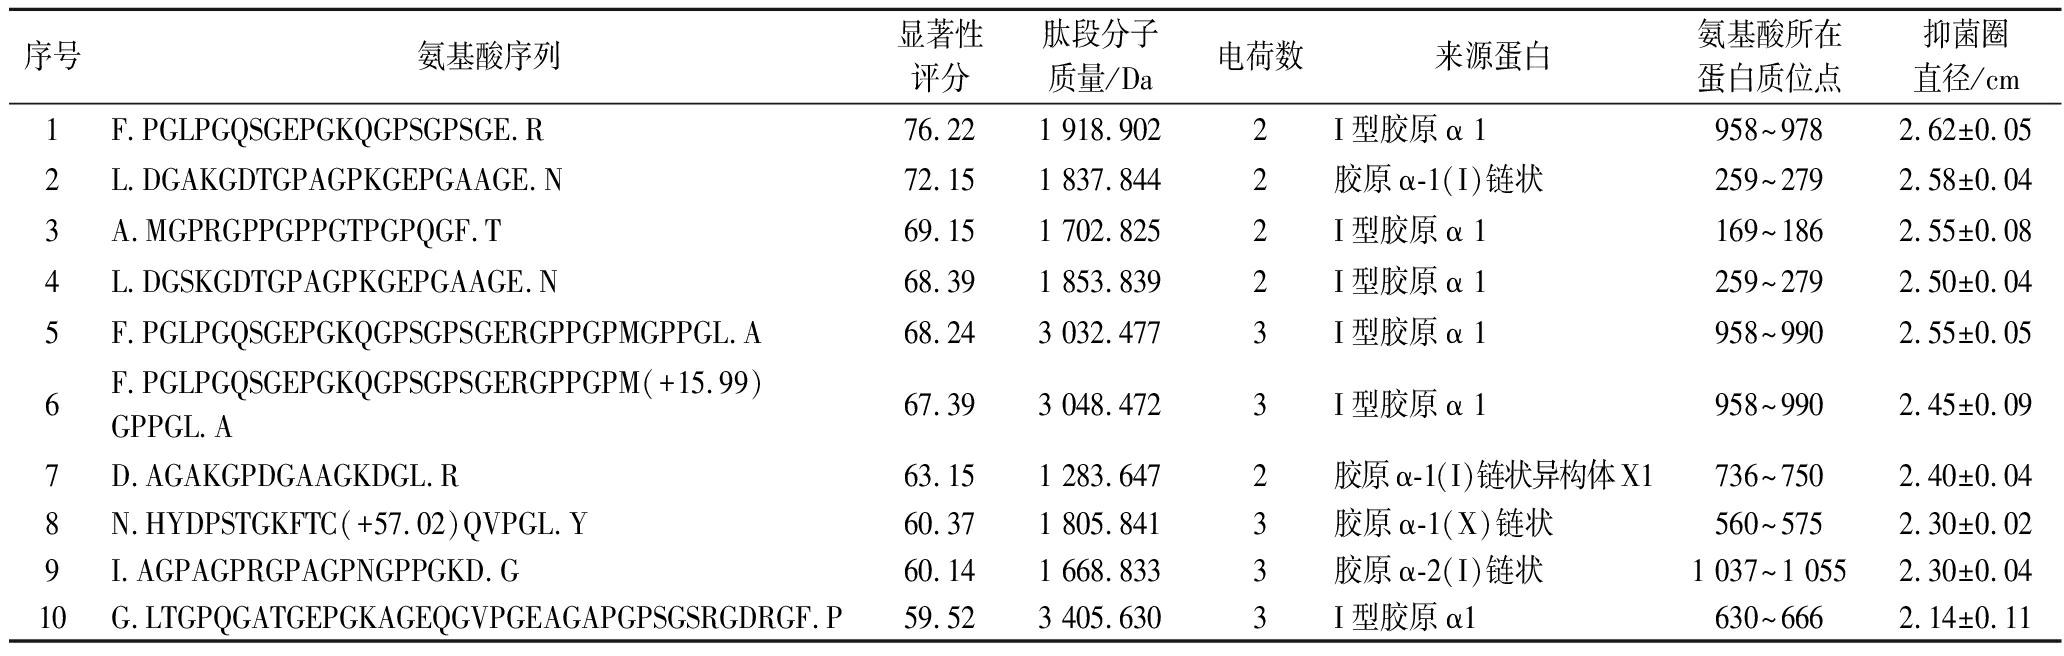
基于1-2组分中肽段序列经过目标蛋白数据库检索分析,结合电荷数、氨基酸残基数以及疏水性特征等核心指标筛选,最终获得显著性得分较高的10条肽段,并进行人工合成(表2)。以E.coli为指示菌,验证合成肽链的抑菌性。结果发现,合成为氨基酸F.PGLPGQSGEPGKQGPSGPSGE.R(N端为疏水残基苯丙氨酸F,C端为亲水碱性残基精氨酸R)的肽段表现出较好的抑菌活性,抑菌圈直径为(2.62±0.05)cm。该肽段被选定为后续深入抑菌性能分析的对象,并命名为CF-3GPS。经目标蛋白数据库比对发现研究中潜在的抗菌肽与I型胶原α1链和胶原α-1(I)链等胶原蛋白组分相似。这些蛋白具有天然α-螺旋构象,是现有众多天然抗菌肽发挥抑菌效应的关键结构[17-18]。此外,本研究中鉴定出的所有肽段均含有多个阳离子氨基酸残基,特别是赖氨酸和组氨酸。已有研究证实,阳离子抗菌肽可通过静电吸引与带负电荷的细菌细胞膜磷脂结合;随后,α-螺旋在膜上聚集形成束状结构,其亲水端插入细菌胞内,最终形成跨膜孔道,造成细胞内容物泄漏,进而诱导细菌死亡[19-21]。肽链长度与抗菌活性的关联性研究表明,肽链过短(氨基酸残基<10个)时,难以形成稳定螺旋,常呈无规卷曲;而肽链过长(氨基酸残基>50个,分子质量>5 kDa),易因熵增导致折叠不稳定,或形成多结构域影响螺旋均一性[22]。这一结论进一步解释了本实验的现象:分子质量在5~10 kDa的抗菌肽抑菌活性最弱,而分子质量<3 kDa的抗菌肽因其氨基酸残基数量适中(15~40个),更易形成稳定的抑菌α-螺旋构象,从而提高抑菌性能。综上,后续研究可聚焦于CF-3GPS氨基酸的疏水性修饰和分子质量优化。
表2 抗菌肽鉴定肽段与蛋白数据库前10序列对比结果
Table 2 Comparison results of the peptide segments identified in our study with top ten amino acid sequences in the protein database
序号氨基酸序列显著性评分肽段分子质量/Da电荷数来源蛋白氨基酸所在蛋白质位点抑菌圈直径/cm1F.PGLPGQSGEPGKQGPSGPSGE.R76.221 918.9022I型胶原α 1958~9782.62±0.052L.DGAKGDTGPAGPKGEPGAAGE.N72.151 837.8442胶原α-1(I)链状259~2792.58±0.043A.MGPRGPPGPPGTPGPQGF.T69.151 702.8252I型胶原α 1169~1862.55±0.084L.DGSKGDTGPAGPKGEPGAAGE.N68.391 853.8392I型胶原α 1259~2792.50±0.045F.PGLPGQSGEPGKQGPSGPSGERGPPGPMGPPGL.A68.243 032.4773I型胶原α 1958~9902.55±0.056F.PGLPGQSGEPGKQGPSGPSGERGPPGPM(+15.99)GPPGL.A67.393 048.4723I型胶原α 1958~9902.45±0.097D.AGAKGPDGAAGKDGL.R63.151 283.6472胶原α-1(I)链状异构体X1736~7502.40±0.048N.HYDPSTGKFTC(+57.02)QVPGL.Y60.371 805.8413胶原α-1(X)链状560~5752.30±0.029I.AGPAGPRGPAGPNGPPGKD.G60.141 668.8333胶原α-2(I)链状1 037~1 0552.30±0.0410G.LTGPQGATGEPGKAGEQGVPGEAGAPG-PSGSRGDRGF.P59.523 405.6303I型胶原α1630~6662.14±0.11
注:A-丙氨酸,D-天冬氨酸,E-谷氨酸,F-苯丙氨酸,G-甘氨酸,K-赖氨酸,L-亮氨酸,P-脯氨酸,Q-谷氨酰胺,R-精氨酸,S-丝氨酸,T-苏氨酸,V-缬氨酸,W-色氨酸,Y-酪氨酸。
2.2 抗菌肽MIC分析
以E.coli和S.aureus为指示菌株,测定抗菌肽CF-3GPS的MIC。由图2-a可知,随着CF-3GPS质量浓度的升高,E.coli的存活率呈显著下降趋势;当CF-3GPS质量浓度达到0.125 mg/mL时,菌体浓度的下降速率趋于平缓,表明该浓度可有效抑制E.coli的生长繁殖,故确定CF-3GPS对E.coli的MIC为0.125 mg/mL。由图2-b可见,对于S.aureus,当CF-3GPS质量浓度提升至0.25 mg/mL时,菌体浓度不再发生明显变化,提示此浓度已能完全抑制S.aureus的增殖,因此确定其对S.aureus的MIC为0.25 mg/mL。
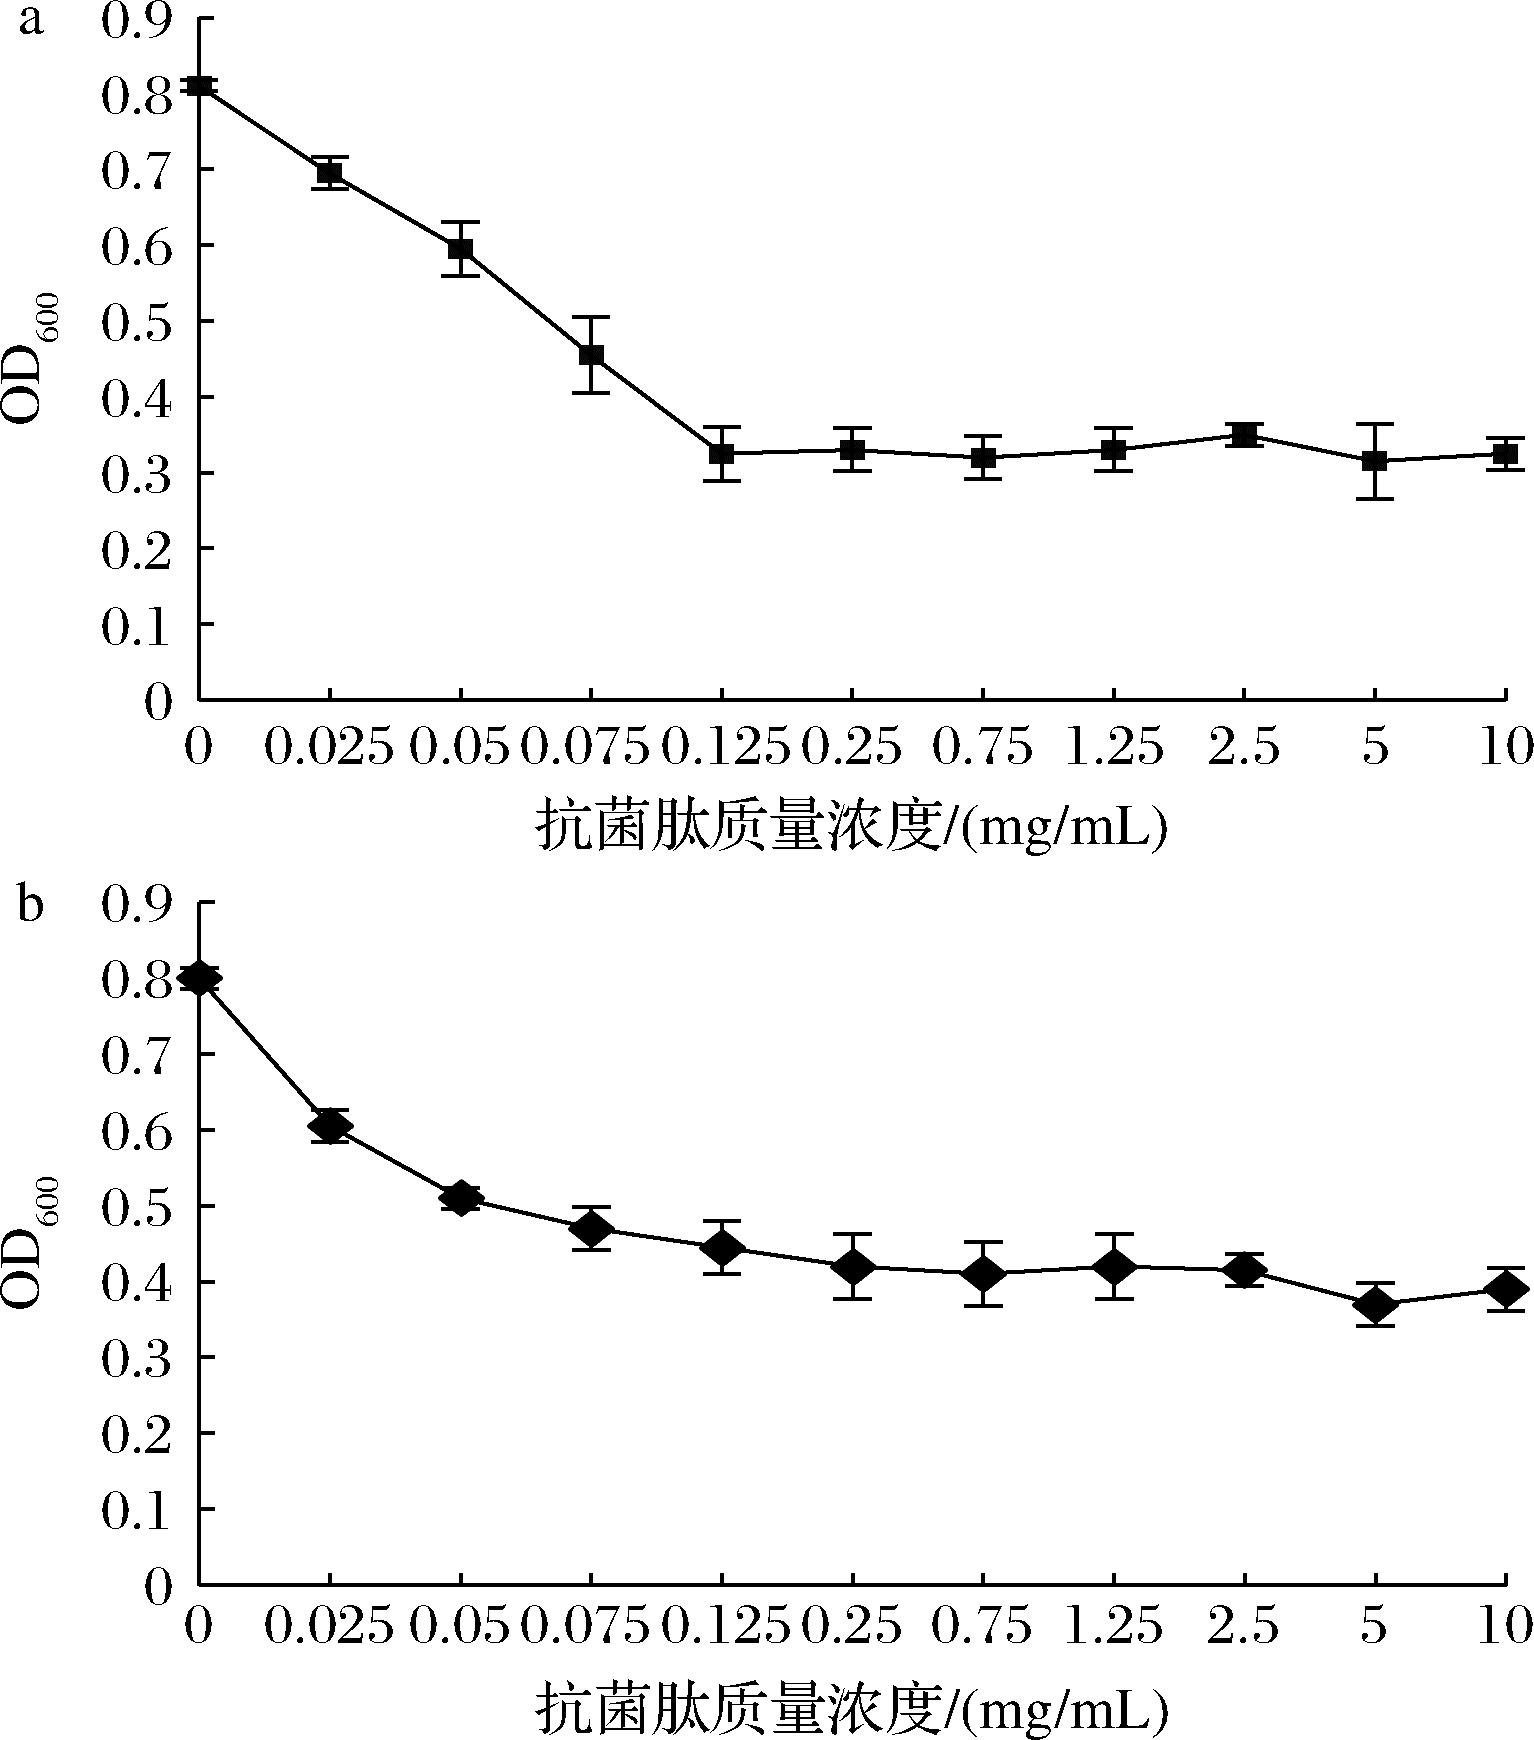
a-E.coli;b-S.aureus
图2 抗菌肽CF-3GPS对E.coli和S.aureus的抑菌曲线
Fig.2 Antibacterial curve of antimicrobial peptides CF-3GPS against E.coli and S.aureus
将本研究中CF-3GPS的抑菌活性数据与已报道的同类抗菌肽研究结果进行对比分析,发现不同来源抗菌肽对E.coli和S.aureus的MIC存在显著差异,这可能与抗菌肽的氨基酸序列组成、空间构象及作用机制的不同密切相关。例如,盖雪蕾[23]从南极磷虾中分离纯化的抗菌肽对E.coli的MIC>0.512 mg/mL。Chee等[24]从条带石斑鱼鳃及肠道组织中分离的抗菌肽对E.coli的MIC<5 μmol/L。此外,抗菌肽A2M3对S.aureus的MIC为0.125 mg/mL[25],乳源抗菌肽BCp12对S.aureus的MIC为2 mg/mL[26],均与本研究中CF-3GPS对S.aureus的MIC存在差异。相比之下,CF-3GPS对革兰氏阴性菌的抑菌效果明显好于已有的报道,展现出其良好的抑菌应用潜力。
2.3 抗菌肽抑菌机制分析
2.3.1 抗菌肽CF-3GPS对E.coli和S.aureus细胞形态的影响
SEM观察结果显示,对照组E.coli菌体形态完整,呈典型短杆状,表面光滑平整,细胞边界清晰且结构饱满(图3-a);而CF-3GPS处理组菌体形态发生显著畸变,表现为细胞表面出现严重皱缩、凹陷及塌陷,边界模糊不清,且可见细胞间粘连聚集现象(图3-b)。细胞表面褶皱与凹陷可能是细胞膜结构损伤后,胞内渗透压失衡导致的,菌体粘连则可能与细胞膜破坏后释放的胞内物质(如蛋白质、核酸)介导的聚集效应相关。由图3-c可知,S.aureus对照组菌体呈规则球形,表面光滑,边界清晰,菌体内容物分布均匀;经CF-3GPS处理后(图3-d),部分菌体出现明显结构萎缩、变形及形态不规则现象,且菌体间存在粘连聚集。
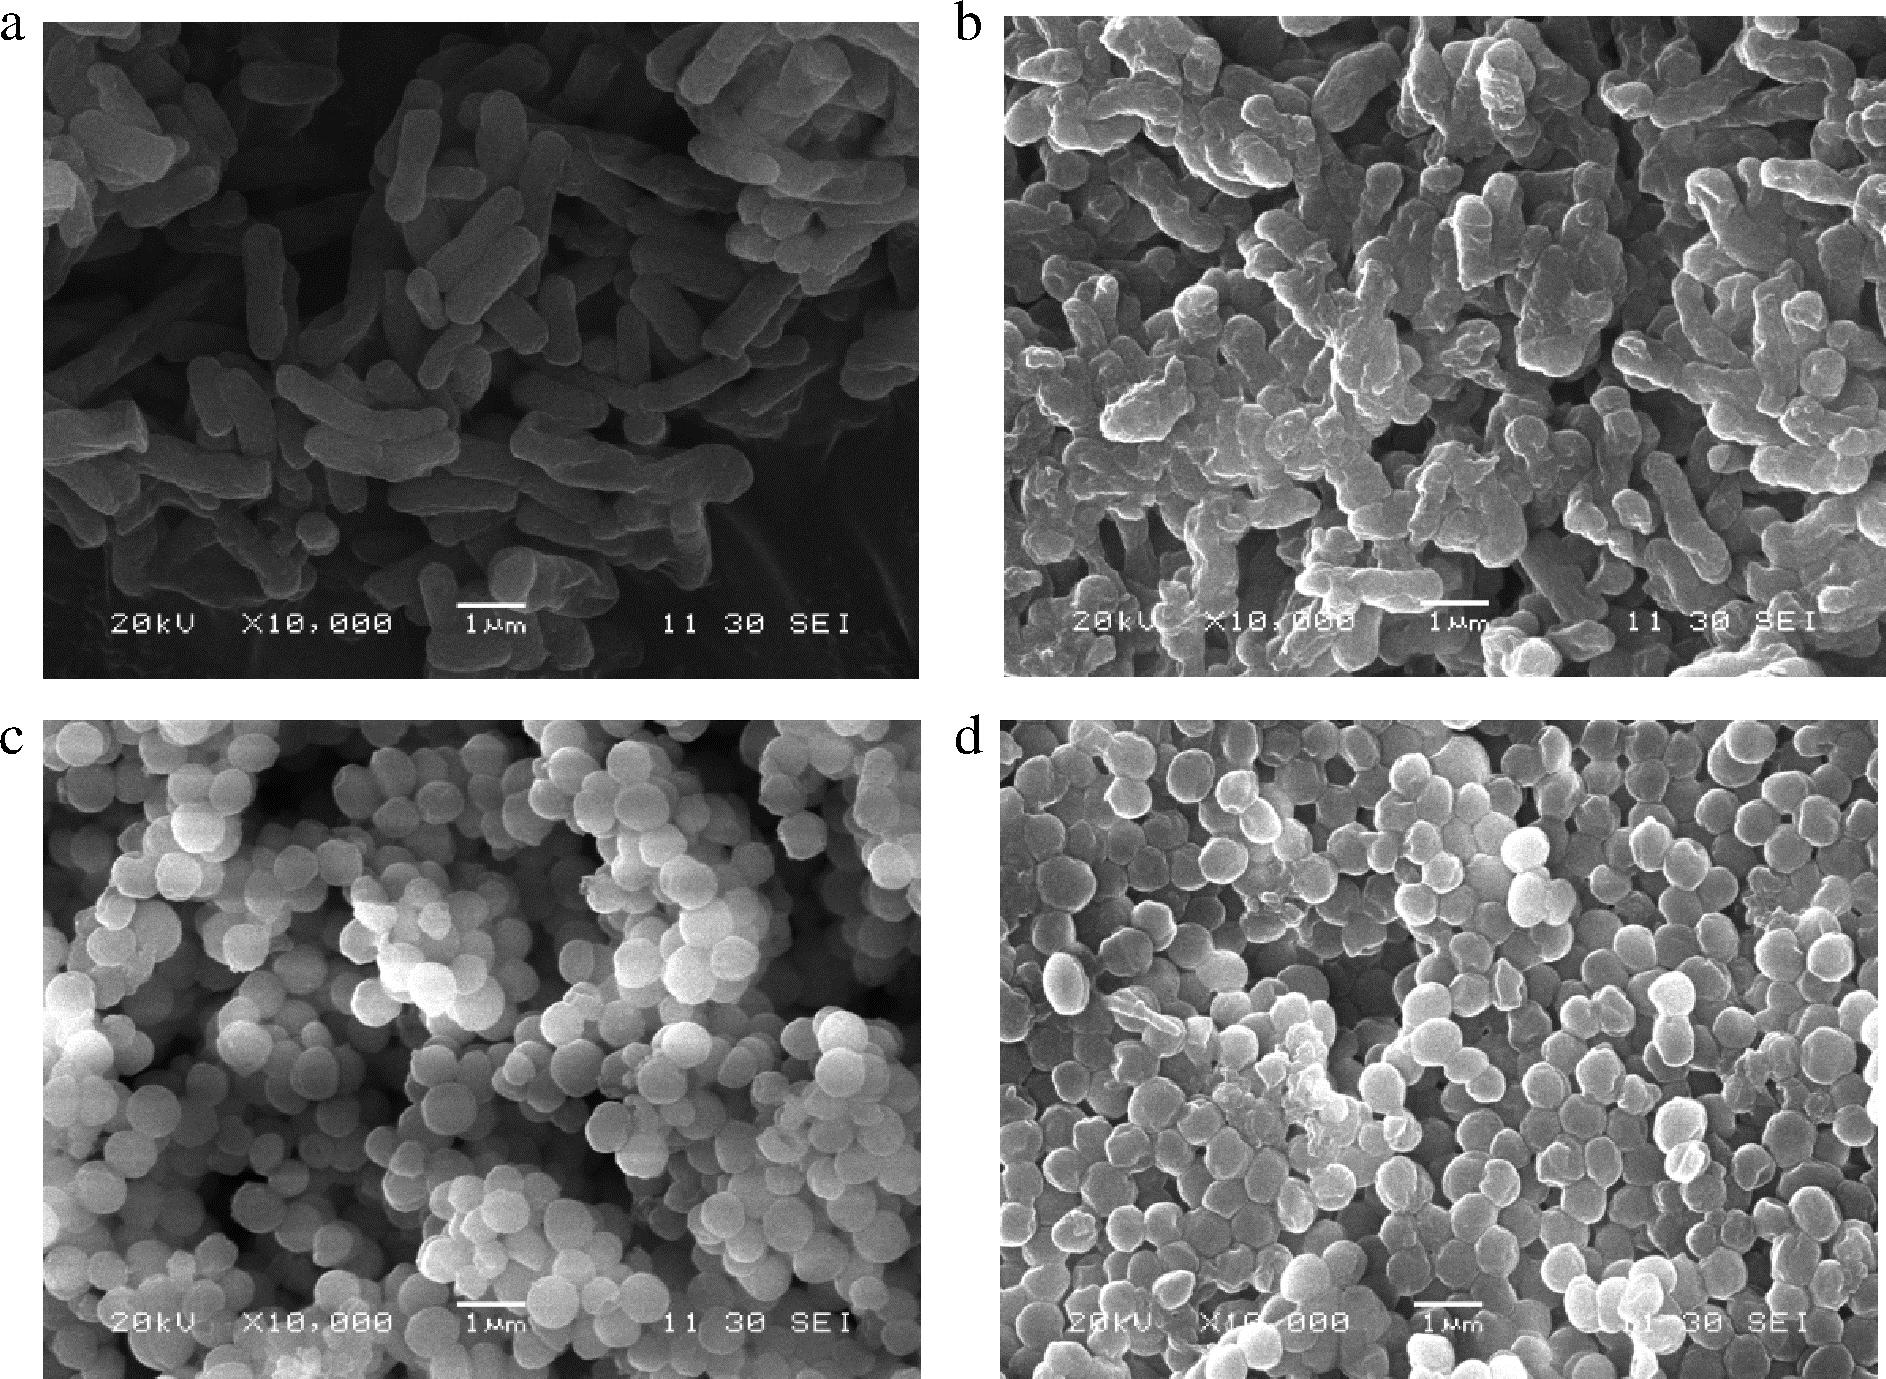
a-E.coli对照组;b-E.coli抗菌肽处理组;c-S.aureus对照组;d-S.aureus抗菌肽处理组
图3 抗菌肽CF-3GPS处理后E.coli和S.aureus菌体SEM(×10 000)图
Fig.3 SEM(×10 000)photograph of E.coli and S.aureus treated with antimicrobial peptide CF-3GPS
细胞形态完整性结果与相关研究中的阳离子抗菌肽“细胞膜靶向作用机制”高度一致,即通过破坏细菌细胞膜结构完整性,导致胞内内容物泄漏,最终诱导菌体凋亡[27]。LC-MS/MS检测结果显示,CF-3GPS肽段的分子质量为1 918.902 Da,较小的分子质量有利于其穿透细菌外膜及细胞膜,进而到达作用靶点发挥抗菌活性[28]。综合SEM观察结果、肽段序列及结构分析可知,CF-3GPS可通过破坏E.coli与S.aureus的细胞壁及细胞膜结构完整性,导致细胞损伤乃至死亡,从而实现抑菌效果。肖怀秋等[29]发现抗菌肽SIF4可增强S.aureus的细胞膜通透性,导致胞内物质泄漏,同时增强细胞表面疏水性、降低细胞表面电位,最终引发细胞聚沉并诱导细胞坏死。王巧巧[30]的研究也证实,抗菌肽可破坏细胞膜的通透性及完整性,导致菌体粘连并出现溶菌现象。本研究中CF-3GPS诱导细菌形态畸变、细胞膜损伤及菌体粘连的结果,进一步佐证了抗菌肽通过靶向破坏细胞膜发挥作用的共性机制,同时也表明CF-3GPS的抗菌作用模式与SIF4等已报道抗菌肽具有相似性,为其后续应用及作用机制深入研究提供了参考。
2.3.2 抗菌肽CF-3GPS对E.coli和S.aureus细胞膜完整性的影响
如图4所示,CF-3GPS对E.coli和S.aureus细胞膜的破坏作用呈现明确的浓度依赖性与时间依赖性特征。1×、2×和4× MIC处理组条件下与初始核酸及蛋白质浓度无统计学差异(P>0.05)。随着作用时间的延长,各处理组胞内物质均有泄露,但抗菌肽处理组的泄露幅度与速率显著高于对照组,且呈现浓度依赖效果,即CF-3GPS处理浓度越高抑菌效应越强。在细胞培养6 h时,4×MIC组E.coli菌悬液OD260为(0.49±0.03),核酸含量提升至对照组(0.21±0.02)的约2倍(图4-a)。同期该组OD280为(0.36±0.01),蛋白质含量提升至对照组(0.15±0.03)的约2倍(图4-b)。二者同步高量泄露,直接证实高浓度抗菌肽已导致E.coli细胞膜结构严重破损,失去屏障功能,胞内物质大量外溢。而1×MIC组初期(0~4 h)核酸与蛋白质泄露较缓,说明低浓度抗菌肽仅引发细胞膜局部通透性改变,尚未造成膜结构完全破裂,体现了泄露量与膜破损程度的梯度关联。
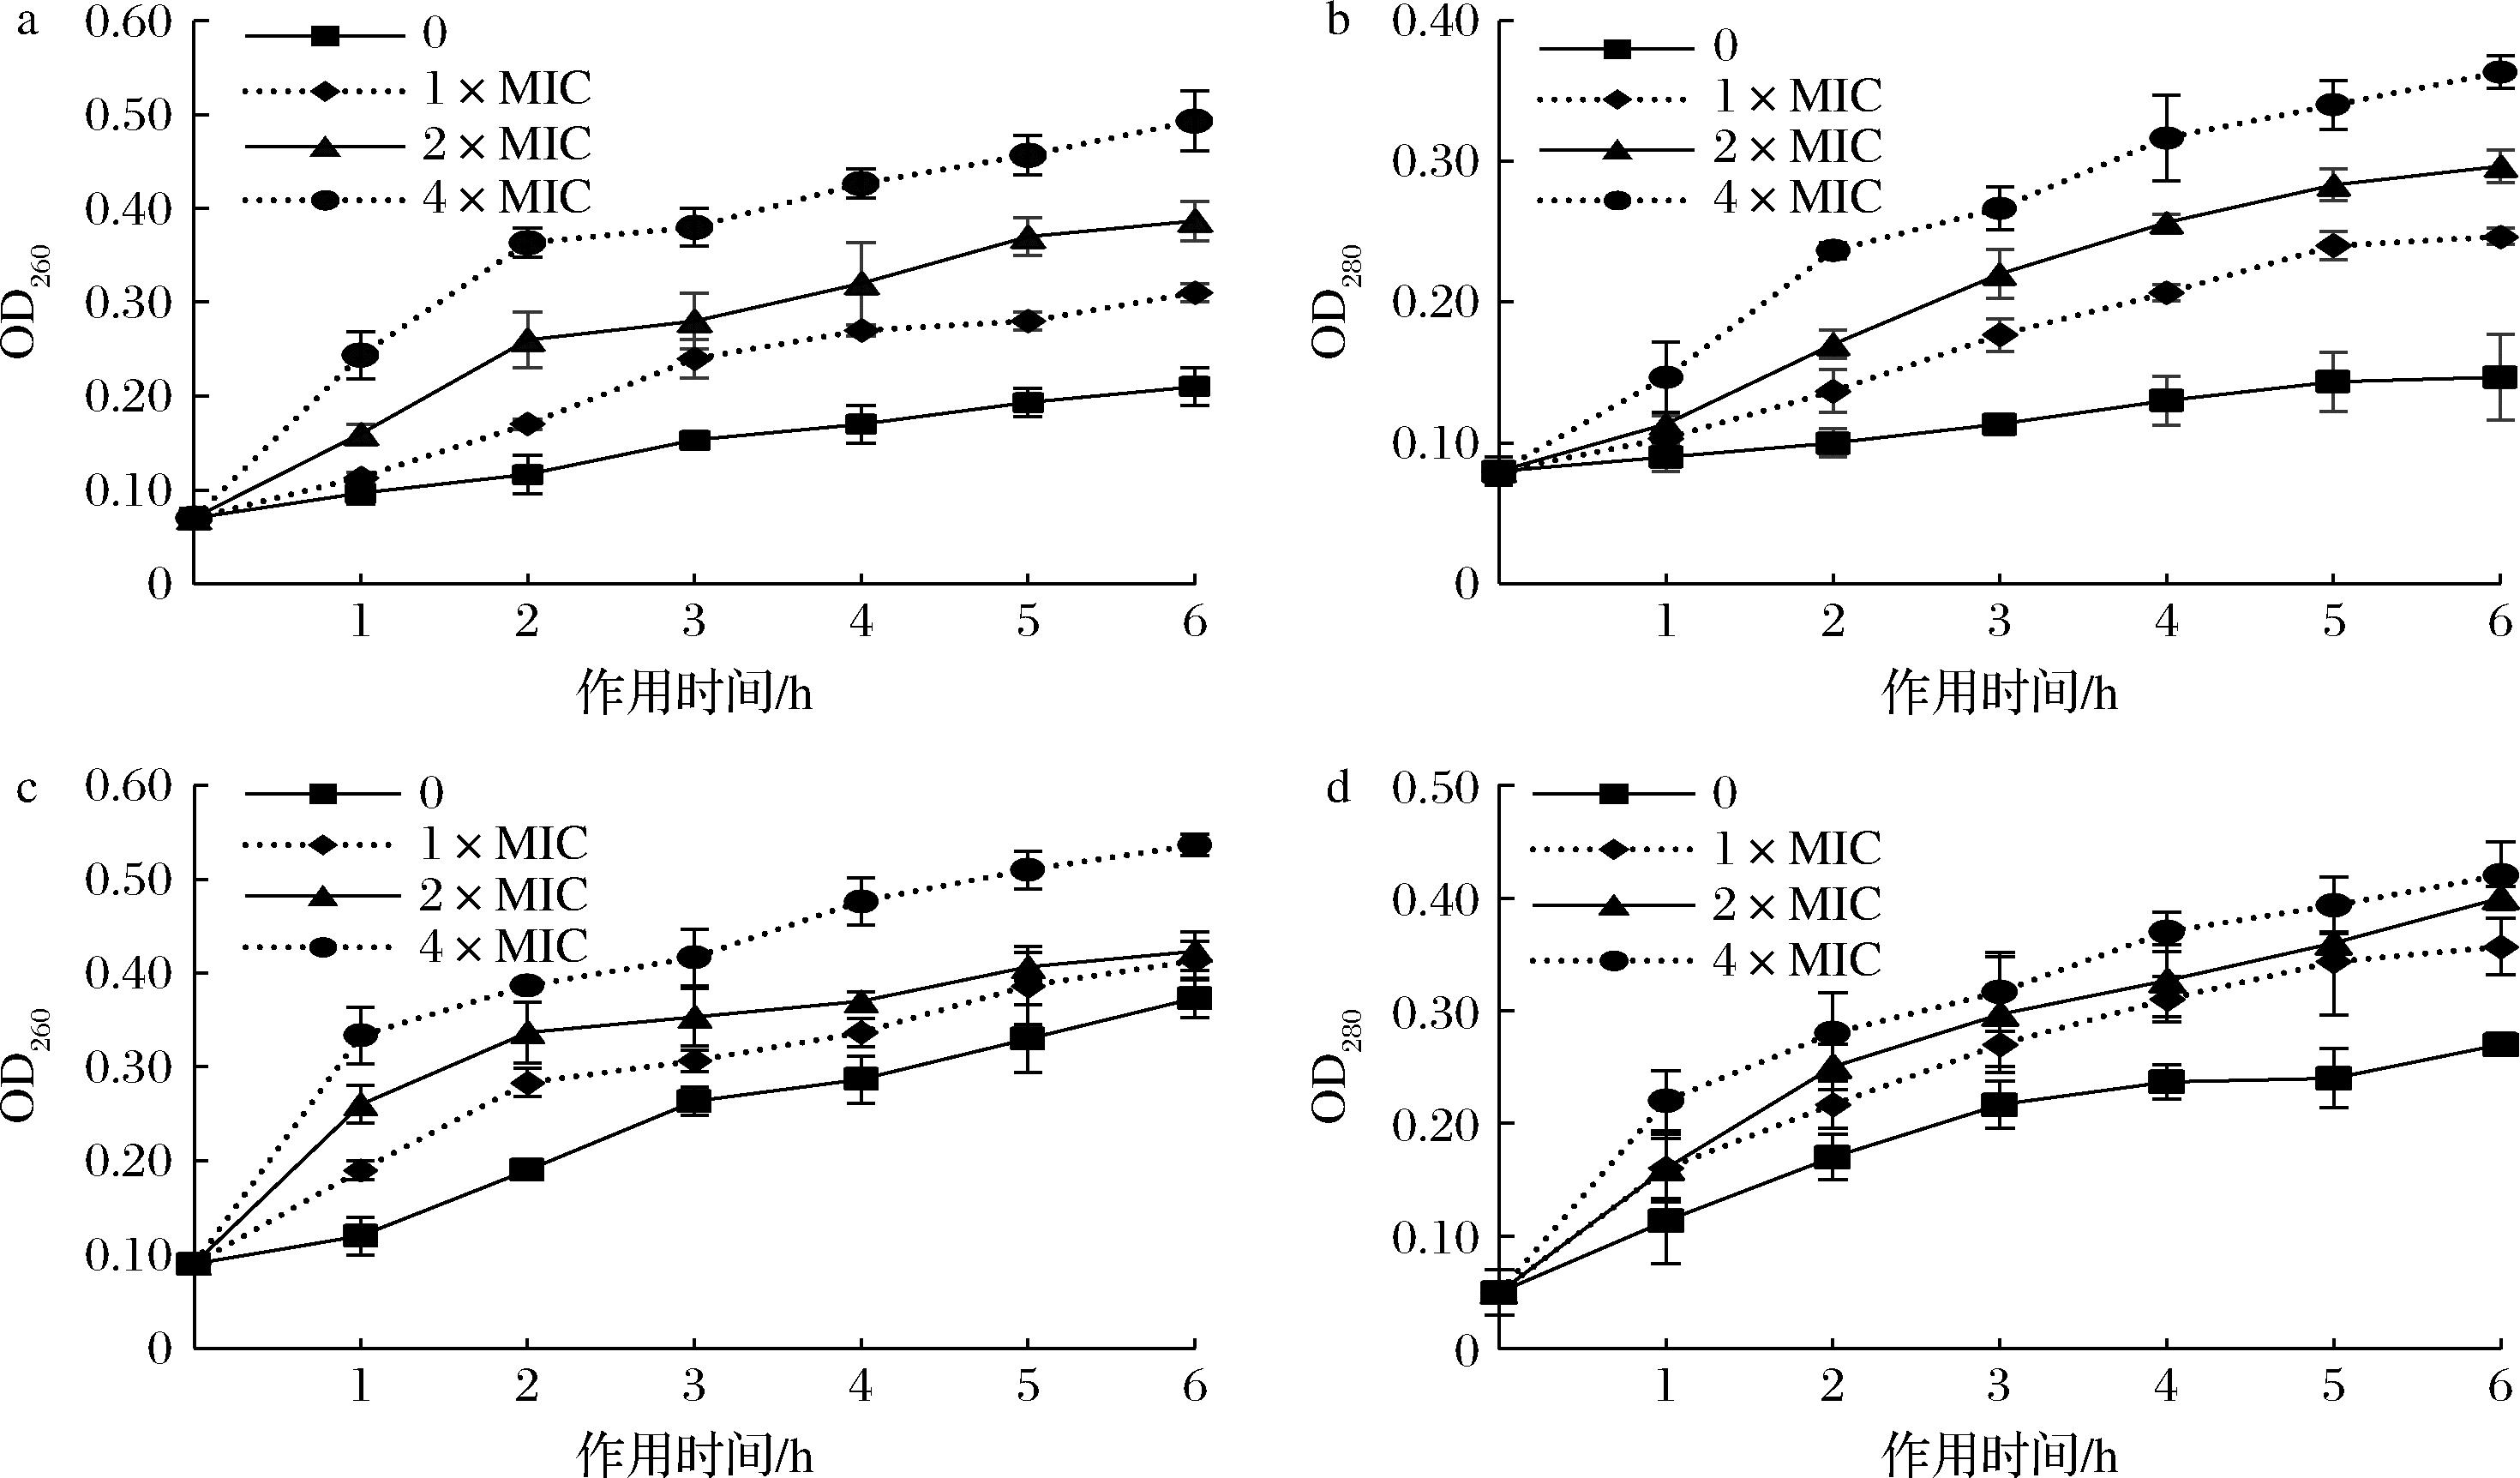
a-E.coli菌悬液的核酸含量;b-E.coli菌悬液中蛋白质含量;c-S.aureus菌悬液的核酸含量;d-S.aureus菌悬液中蛋白质含量
图4 抗菌肽CF-3GPS对E.coli和S.aureus细胞膜完整性的影响
Fig.4 Effects of antimicrobial peptide CF-3GPS on the membrane integrity of E.coli and S.aureus
图4-c与图4-d数据显示,在细胞培养6 h时,4×MIC组S.aureus菌悬液OD260为(0.54±0.01),对照组为(0.37±0.02),OD280为(0.42±0.03),对照组为(0.27±0.01)。2组数据均表明,在CF-3GPS的作用下,S.aureus菌体的核酸和蛋白质泄露明显。后续研究中,可开展细菌细胞膜结合能力分析实验,精准验证抗菌肽与细菌细胞膜的结合有效性及作用强度。但现有菌悬液中核酸及蛋白质泄露浓度数据,已能从侧面反映抗菌肽对细菌细胞膜的破坏效应。这与周玲玲[31]、张继英[32]通过胞内物质泄露情况间接表征膜损伤的研究结论相一致。
2.3.3 抗菌肽CF-3GPS对E.coli和S.aureus细胞壁通透性的影响
图5结果显示,经抗菌肽CF-3GPS处理后,E.coli和S.aureus的细胞壁通透性均发生改变,且菌悬液中胞内磷酸酶的释放量随抗菌肽浓度的梯度升高呈显著上升趋势,呈现典型的浓度依赖性效应。由图5-a可知,当CF-3GPS浓度达到4×MIC时,E.coli体系中磷酸酶含量为(3.80±0.30)U/μL,而阳性对照组磷酸酶含量为(4.37±0.15)U/μL,二者数值有显著差异(P<0.05),表明该浓度下CF-3GPS可有效破坏E.coli细胞壁完整性,导致胞内磷酸酶大量释放。E.coli细胞壁通透性与金属抗菌肽SIF4浓度呈正相关,高浓度组与对照组已出现显著差异[33],这与本研究中CF-3GPS对E.coli细胞壁的影响趋势一致,印证了抗菌肽“浓度-通透性”关联的普遍性规律。
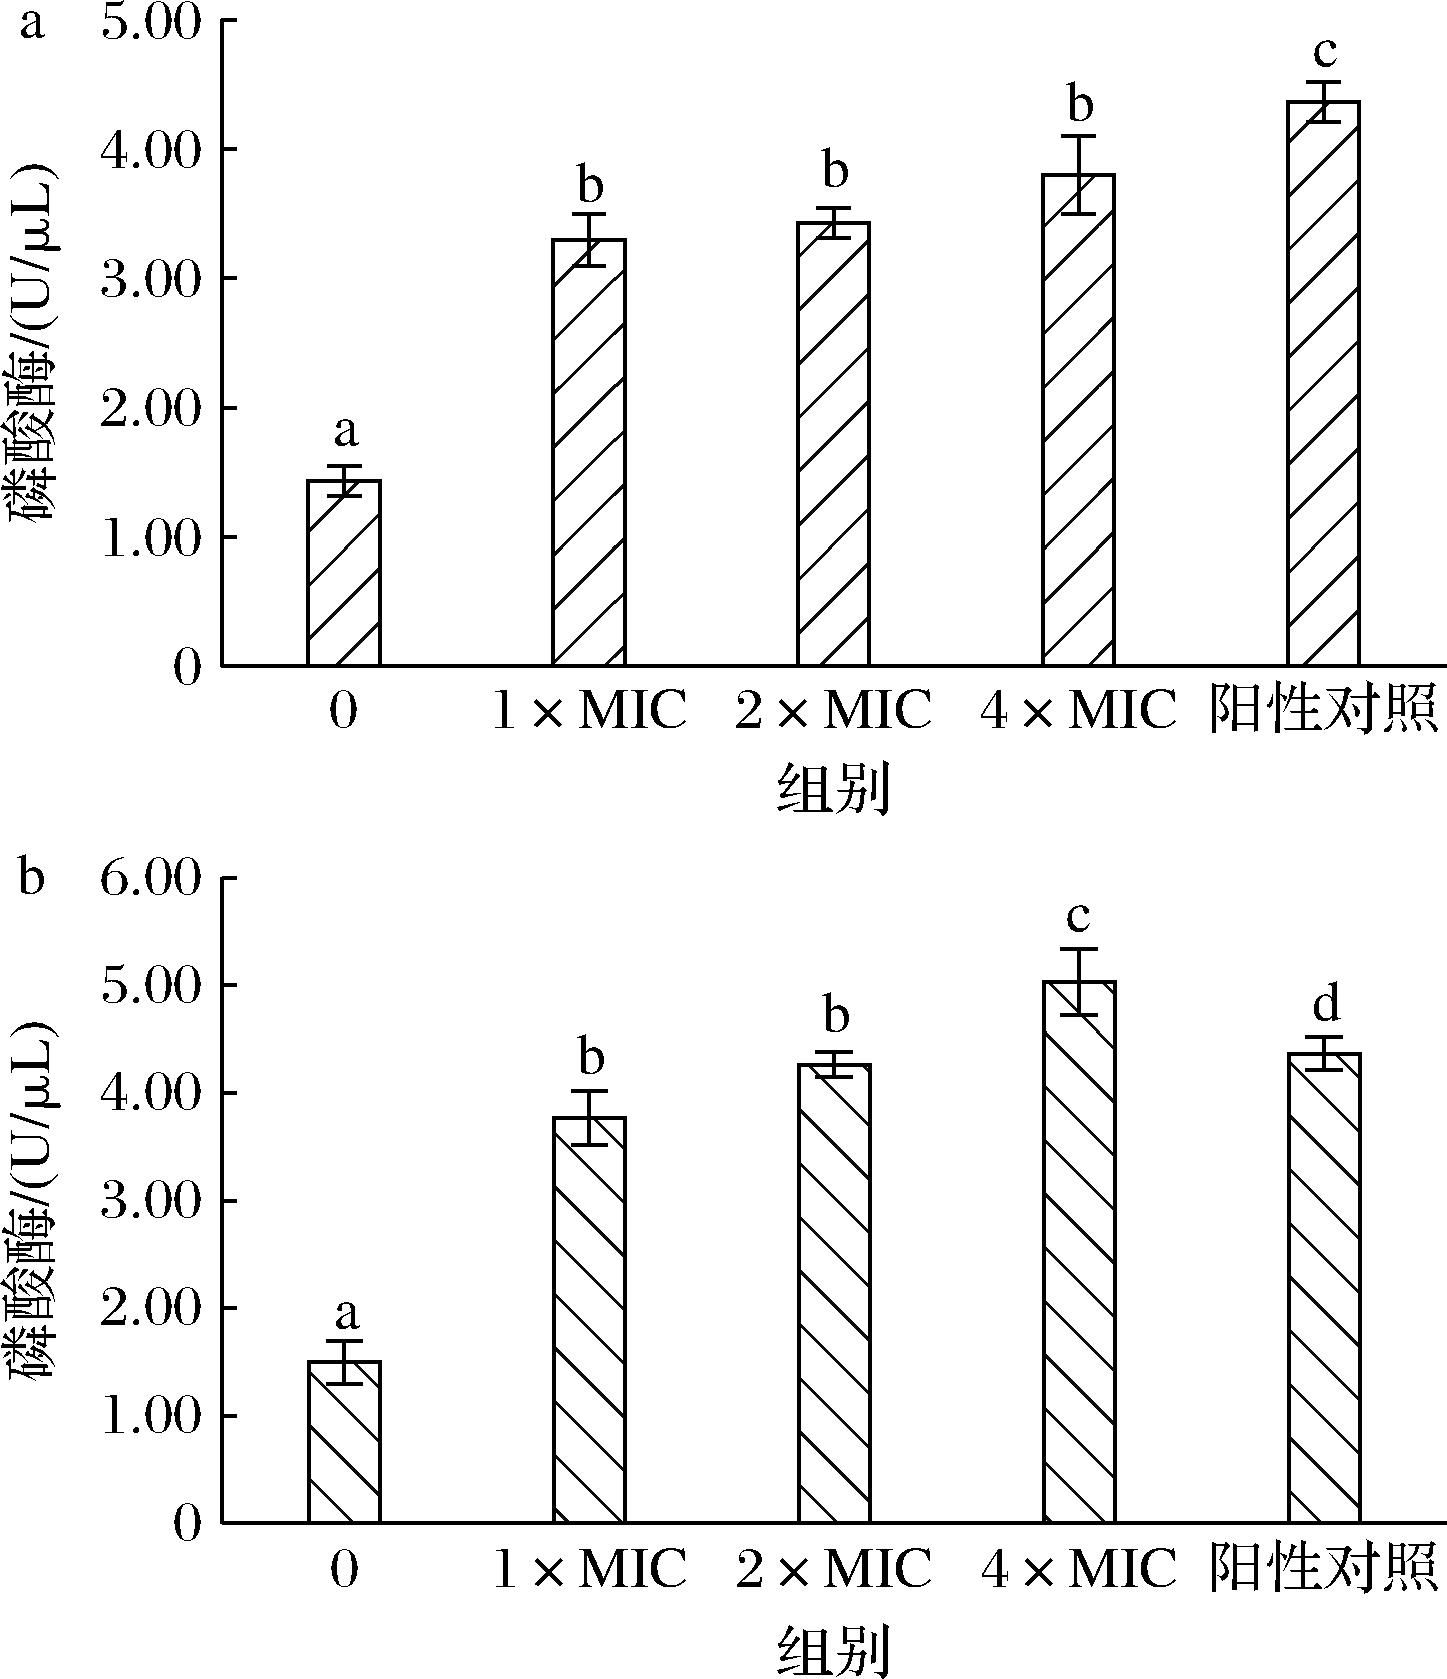
a-E.coli菌悬液;b-S.aureus菌悬液
图5 抗菌肽CF-3GPS对E.coli和S.aureus细胞壁通透性的影响
Fig.5 Effects of antimicrobial peptide CF-3GPS on the cell wall permeability of E.coli and S.aureus
注:不同小写字母表示组间差异显著(P<0.05),阳性对照为0.3% TritonX-100。
图5-b结果显示,CF-3GPS浓度的变化对S.aureus体系中磷酸酶含量的影响有显著差异,当浓度升至4×MIC时,S.aureus体系中磷酸酶含量达(5.03±0.31)U/μL,高于阳性对照组的(4.37±0.15)U/μL(P<0.05),说明CF-3GPS对S.aureus细胞壁的破坏作用更强。磷酸酶多定位于S.aureus胞壁及膜周间隙,其释放量可作为胞壁完整性受损的可靠标志物[34-35]。本研究结果与黄连提取物[36]、荔枝果皮多糖[37]的作用规律一致,均通过剂量依赖性破坏S.aureus细胞壁,导致磷酸酶释放量增加,伴随核酸、蛋白泄漏等现象,这与SEM观察的菌体结构变化对应。
3 结论
本研究基于前期研究基础,将鲫鱼鱼鳞抗菌肽粗酶液经超滤、Sephadex G-25凝胶色谱层析对抗菌肽液分离纯化,经LC-MS/MS抗菌肽序列分析并比对现有蛋白质数据库。合成得到对E.coli和S.aureus有较好抑菌效果的抗菌肽,命名为CF-3GPS。该肽段为为具有抑菌活性的阳离子肽,且来源于抗菌性较强的α-螺旋结构的胶原蛋白。CF-3GPS对E.coli和S.aureus的MIC分别为0.125、0.25 mg/mL。利用SEM观察结合细胞膜完整性和细胞壁通透性分析发现,CF-3GPS主要通过靶向破坏菌体细胞壁与细胞膜结构完整性,导致胞内核酸、蛋白质、磷酸酶等内容物泄露,致使菌体死亡,最终发挥抑菌作用。CF-3GPS展现出良好的抑菌应用潜力,后续将分别分析该抗菌肽在水产品贮藏过程中的抑菌特性,从而探索其在食品保鲜中的应用。
[1] 刘庆慧, 刘从力, 王采理. 鱼鳞营养成分的分析及对高脂饲料大鼠血脂水平的影响[J]. 中国水产科学, 2000, 7(4):56-59.Liu Q H, Liu C L, Wang C L. Scale nutrient composition and effect on serum lipids in experimental hypercholesterolemic rats[J]. Journal of Fishery Sciences of China, 2000, 7(4):56-59.
[2] 黄家宝, 邓旗, 薛梦凡, 等. 不同方法提取红鳍笛鲷鱼鳞胶原蛋白的结构和理化特性研究[J]. 食品与发酵工业, 2024, 50(9):210-218.Huang J B, Deng Q, Xue M F, et al. Characterization of collagens from scale of Lutjanus erythropterus by different extraction methods[J]. Food and Fermentation Industries, 2024, 50(9):210-218.
[3] 李海蓝, 陈亚楠, 刘文博, 等. 鱼类低值副产物制备抗菌肽研究进展[J]. 食品研究与开发, 2023, 44(23):191-197.Li H L, Chen Y N, Liu W B, et al. Reviews on preparation of antimicrobial peptides from fish low-valued by-products[J]. Food Research and Development, 2023, 44(23):191-197.
[4] Tyor A K, Kumari S. Biochemical characterization and antibacterial properties of fish skin mucus of fresh water fish, Hypophthalmichthys nobilis[J]. International Journal of Pharmacy and Pharmaceutical Sciences, 2016, 8(6): 132-136.
[5] 杨宁, 李金香, 冷敦鹏, 等. 抗菌肽的研究现状及在水产养殖中的应用前景[J]. 山东畜牧兽医, 2025, 46(5):116-119.Yang N, Li J X, Leng D P, et al. Research status and application prospect of antimicrobial peptides in aquaculture[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2025, 46(5):116-119.
[6] 段晓琳, 樊燕, 汪金林, 等. 鲟鱼表皮粘液抗菌肽的分离鉴定及抑菌活性分析[J]. 食品工业科技, 2023, 44(18):67-75.Duan X L, Fan Y, Wang J L, et al. Isolation, identification and antimicrobial activity analysis of antimicrobial peptides from epidermis mucus of sturgeon[J]. Science and Technology of Food Industry, 2023, 44(18):67-75.
[7] 王雪燕, 陈瑛, 张嘉敏, 等. 草鱼鱼鳞抗菌肽与肉桂精油联合抑菌作用及机理[J]. 食品科学, 2020, 41(23):100-106.Wang X Y, Chen Y, Zhang J M, et al. Combined antimicrobial effect and mechanism of antimicrobial peptide from grass carp scale and cinnamon essential oil[J]. Food Science, 2020, 41(23):100-106.
[8] 董毓卿, 齐瑾, 田野, 等. 草鱼鱼鳞抗菌肽制备及其抗菌活性研究[J]. 现代食品, 2025(2):110-114.Dong Y Q, Qi J, Tian Y, et al. Preparation and antibacterial activity of antimicrobial peptide from grass carp scale[J]. Modern Food, 2025(2):110-114.
[9] 顾晨涛, 黄洒, 王雪燕, 等. 鲫鱼鱼鳞抗菌多肽的制备纯化及其抑菌活性[J]. 食品科学, 2019, 40(22):193-198.Gu C T, Huang S, Wang X Y, et al. Preparation, purification and antimicrobial activity of antimicrobial peptide from crucian carp scales[J]. Food Science, 2019, 40(22):193-198.
[10] 施永清, 王巧巧, 吴丹丽, 等. 响应面试验优化双酶酶解法制备鱼鳞抗菌肽工艺及其抑菌性能分析[J]. 食品科学, 2018, 39(6):155-161.Shi Y Q, Wang Q Q, Wu D L, et al. Optimization of preparation of antimicrobial peptides by two-step enzymatic hydrolysis of fish scales using response surface methodology and antimicrobial activity of purified antimicrobial peptide[J]. Food Science, 2018, 39(6):155-161.
[11] 蒋慧亮, 吴平, 刘萍, 等. 超声波辅助酶解法提取鲫鱼鱼鳞抗菌肽工艺优化[J]. 食品安全质量检测学报, 2026, 17(1):287-294.Jiang H L, Wu P, Liu P, et al. Optimization of the extraction process of antibacterial peptides from Carassius auratus scales by ultrasound-assisted enzymatic hydrolysis[J]. Journal of Food Safety and Quality, 2026, 17(1):287-294.
[12] 张涛, 马杰, 年国芳, 等. 苦杏仁抑菌肽的筛选富集及结构鉴定[J]. 食品工业科技, 2024, 45(10):66-76.Zhang T, Ma J, Nian G F, et al. Screening, enrichment and structural identification of bitter almond antibacterial peptides[J]. Science and Technology of Food Industry, 2024, 45(10):66-76.
[13] Chi H, Holo H. Synergistic antimicrobial activity between the broad spectrum bacteriocin garvicin KS and nisin, farnesol and polymyxin B against gram-positive and gram-negative bacteria[J]. Current Microbiology, 2018, 75(3):272-277.
[14] 韩帅, 孙洁雯, 刘玉平, 等. 8种单烷基酚类香料对大肠杆菌的抑制机理[J]. 中国食品学报, 2023, 23(11):66-73.Han S, Sun J W, Liu Y P, et al. The inhibition mechanism of eight monoalkyl phenol flavor compounds against Escherichia coli[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(11):66-73.
[15] Shaw J E, Alattia J R, Verity J E, et al. Mechanisms of antimicrobial peptide action: Studies of indolicidin assembly at model membrane interfaces by in situ atomic force microscopy[J]. Journal of Structural Biology, 2006, 154(1):42-58.
[16] Deslouches B, Phadke S M, Lazarevic V, et al. De novo generation of cationic antimicrobial peptides: Influence of length and tryptophan substitution on antimicrobial activity[J]. Antimicrobial Agents and Chemotherapy, 2005, 49(1):316-322.
[17] 杨晨远, 于子川, 秦迪, 等. 抗菌肽的结构分析、抗菌机制及改造应用的研究进展[J]. 微生物学报, 2024, 64(7):2242-2259.Yang C Y, Yu Z C, Qin D, et al. Research progress in structures, mechanisms, and modification of antimicrobial peptides[J]. Acta Microbiologica Sinica, 2024, 64(7):2242-2259.
[18] 罗晓, 蔡欣阳, 吴慧艳, 等. 抗菌肽作用机制研究进展[J]. 微生物学通报, 2026, 53(1):35-50.Luo X, Cai X Y, Wu H Y, et al. Research advances in the mechanisms of action of antimicrobial peptides[J]. Microbiology China, 2026, 53(1):35-50. [19] 王碧超. 胶原基抗菌多肽的制备及其性能研究[D]. 北京: 北京化工大学, 2021.Wang B C. Preparation and performance study of collagen-based antibacterial polypeptides[D]. Beijing:Beijing University of Chemical Technology, 2021.
[20] Erdem Büyükkiraz M, Kesmen Z. Antimicrobial peptides (AMPs): A promising class of antimicrobial compounds[J]. Journal of Applied Microbiology, 2022, 132(3):1573-1596.
[21] Lei J, Sun L C, Huang S Y, et al. The antimicrobial peptides and their potential clinical applications[J]. American Journal of Translational Research, 2019, 11(7):3919-3931.
[22] 王铭遥, 郑明静, 任中阳, 等. 凡纳滨对虾抗菌肽的筛选及与DNA的结合机制[J]. 中国食品学报, 2023, 23(7):140-151.Wang M Y, Zheng M J, Ren Z Y, et al. Antimicrobial peptides screened from Penaeus vannamei shrimp and investigation of their DNA binding mechanism[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(7):140-151.
[23] 盖雪蕾. 南极磷虾抗菌肽的挖掘及活性研究[D]. 济南: 齐鲁工业大学, 2023. Gai X L. Study on the excavation and activity of antimicrobial peptides from Antarctic krill [D]. Jinan: Qilu University of Technology, 2023.
[24] Chee P Y, Mang M, Lau E S, et al. Epinecidin-1, an antimicrobial peptide derived from grouper (Epinephelus coioides): Pharmacological activities and applications[J]. Frontiers in Microbiology, 2019, 10:2631.
[25] 范学楠, 林蓉, 金日天, 等. 一种源自人α-2-巨球蛋白的抗菌肽A2M3及其对金黄色葡萄球菌的抑菌机制[J]. 微生物学报, 2024, 64(3):938-952.Fan X N, Lin R, Jin R T, et al. A novel antimicrobial peptide A2M3 derived from human alpha-2-macroglobulin inhibits Staphylococcus aureus[J]. Acta Microbiologica Sinica, 2024, 64(3):938-952.
[26] 李钰芳, 杨昆, 顾韦维, 等. 乳源抗菌肽BCp12对金黄色葡萄球菌多靶点抑菌机制[J]. 食品科学, 2021, 42(23):34-41.Li Y F, Yang K, Gu W W, et al. Multi-target antibacterial mechanism of milk-derived antimicrobial peptide BCp12 against Staphylococcus aureus[J]. Food Science, 2021, 42(23):34-41.
[27] Ji S Q, An F Y, Zhang T W, et al. Antimicrobial peptides: An alternative to traditional antibiotics[J]. European Journal of Medicinal Chemistry, 2024, 265:116072.
[28] 李玉珍, 肖怀秋, 王斌, 等. 抗菌肽的抑菌机制及其在食品防腐保鲜中的应用[J]. 食品科学, 2025, 46(15):415-425.Li Y Z, Xiao H Q, Wang B, et al. Mechanism of action of antibacterial peptides and their application in food preservation[J]. Food Science, 2025, 46(15):415-425.
[29] 肖怀秋, 李玉珍, 林亲录, 等. 金属抗菌肽SIF4对金黄色葡萄球菌细胞通透性的影响机制[J]. 食品与生物技术学报, 2023, 42(2):97-103.Xiao H Q, Li Y Z, Lin Q L, et al. Mechanism of metal antimicrobial peptide SIF4 against Staphylococcus aureus cell permeability[J]. Journal of Food Science and Biotechnology, 2023, 42(2):97-103.
[30] 王巧巧. 鲫鱼鱼鳞抗菌肽的制备、抑菌机理及应用研究[D]. 杭州: 浙江工商大学, 2017.Wang Q Q. Preparation, antibacterial mechanism and application research of antimicrobial peptides from carp scales[D]. Hangzhou: Zhejiang Gongshang University, 2017.
[31] 周玲玲.新抗菌肽LL-1的生物学特性和抗大肠杆菌的机制研究[D].太谷: 山西农业大学,2023.Zhou L L. Biological characteristics of a novel antimicrobial peptide LL-1 and its antibacterial mechanism against Escherichia coli[D]. Taigu: Shanxi Agricultural University, 2023.
[32] 张继英.厚朴酚对茶轮斑病病原菌Neopestalotiopsis ellipsospora抑菌活性及其抑菌机理初步研究[D].贵阳: 贵州大学, 2025.Zhang J Y. Preliminary study on the antifungal activity and mechanism of magnolol against Neopestalotiopsis ellipsospora, the pathogen of tea gray blight[D]. Guiyang: Guizhou University, 2025.
[33] 李玉珍, 肖怀秋, 刘淼, 等. 金抗肽SIF4对大肠杆菌基于细胞壁靶点的非细胞质膜损伤抑菌机理[J]. 食品与生物技术学报, 2023, 42(6):78-83.Li Y Z, Xiao H Q, Liu M, et al. Non-cytoplasmic membrane damage antimicrobial mechanism of metal antimicrobial peptide SIF4 against Escherichia coli based on cell wall target[J]. Journal of Food Science and Biotechnology, 2023, 42(6):78-83.
[34] 李军. 丁香精油对金黄色葡萄球菌的抑菌及毒力调控机制研究[D]. 镇江: 江苏大学, 2023. Li J. Antibacterial and virulence-regulating mechanisms of clove essential oil against Staphylococcus aureus[D]. Zhenjiang: Jiangsu University, 2023.
[35] 任婷, 刘晓影, 黄怡婷, 等. 抗菌肽Andricin 01对金黄色葡萄球菌生物被膜形成的抑制作用[J]. 食品与发酵工业, 2026, 52(6):246-253.Ren T, Liu X Y, Huang Y T, et al. Inhibitory effect of antimicrobial peptide Andricin 01 on biofilm formation of Staphylococcus aureus[J]. Food and Fermentation Industries, 2026, 52(6):246-253.
[36] Lu Y C, Qin L Y, Mao Y H, et al. Antibacterial activity of a polysaccharide isolated from litchi (Litchi chinensis Sonn.) pericarp against Staphylococcus aureus and the mechanism investigation[J]. International Journal of Biological Macromolecules, 2024, 279:134788.
[37] 周瑾, 梁海运, 孙佳慧, 等. 黄连提取物对金黄色葡萄球菌的抑菌活性及作用机理[J]. 中国农业科技导报, 2025, 27(3):143-152.Zhou J, Liang H Y, Sun J H, et al. Bacteriostatic activity and mechanism of action of rhizoma coptidis extracts on Staphylococcus aureus[J]. Journal of Agricultural Science and Technology, 2025, 27(3):143-152.