L-色氨酸作为一种关键的必需氨基酸,在工业、食品以及营养保健等诸多领域有着广泛的应用[1-2]。在饲料工业范畴内,作为营养添加剂,它主要平衡动物日粮氨基酸的构成,提升饲料利用率以及畜禽的生长性能[3];在医药领域,其作为神经递质5-羟色胺的合成前体,被用于制备抗抑郁、抗焦虑药物以及可改善睡眠的保健产品[4];在食品工业领域,它同样可用作营养强化剂。因此,提升L-色氨酸的工业生产产量具有重要的经济和社会意义。
目前,L-色氨酸的工业化生产主要依赖微生物发酵方式[5]。其中大肠杆菌(Escherichia coli)因遗传背景清晰、代谢调控网络完善及工程操作成熟,已成为L-色氨酸工业生产中应用最为广泛的宿主之一[2]。然而,大肠杆菌内部高度耦联的代谢网络也对L-色氨酸的高效合成构成了多重限制。一方面,色氨酸生物合成途径较为冗长且关键限速步骤受到严格的反馈调控,例如高浓度色氨酸对3-脱氧-D-阿拉伯糖庚酮糖-7-磷酸合酶(3-deoxy-D-arabino-heptulosonic acid 7-phosphate synthase,DAHPS)及邻氨基苯甲酸合酶(anthranilate synthase,AS)均具有强烈的反馈抑制作用,从而限制了碳代谢流向目标产物的通量。另一方面,中心代谢途径中磷酸烯醇式丙酮酸(phosphoenolpyruvate,PEP)和4-磷酸赤藓糖(erythrose-4-phosphate,E4P)等关键前体的供给能力有限,且部分碳流易被分流至乙酸等副产物合成或者其他芳香族氨基酸的合成途径[6]。此外,在高产条件下,色氨酸在胞内的积累不仅会对细胞生长产生不利影响,还可能进一步加剧反馈抑制,并增加下游分离提取的难度。
针对上述代谢瓶颈问题,近年来研究人员主要通过非理性诱变育种与理性代谢工程2类策略对大肠杆菌进行系统改造,以构建L-色氨酸高产菌株[7-8]。在非理性诱变育种方面,诱变结合高通量筛选仍是获得优良生产菌株的重要手段之一。叶慧敏等[9]采用常压室温等离子体(atmospheric and room temperature plasma,ARTP)诱变结合高通量筛选策略,获得一株L-色氨酸高产突变株,其摇瓶发酵产量达到1.99 g/L,较出发菌株提高41.77%;Gao等[10]采用ARTP诱变技术,并利用L-色氨酸特异性核糖开关结合黄色荧光蛋白生物传感器,通过流式细胞分选系统建立高通量筛选体系,构建突变体文库并获得高产突变株GT3938,其L-色氨酸产量较出发菌株G01提高1.94倍。然而,随机诱变通常伴随多位点未知突变,在遗传机制解析及定向优化方面仍存在一定局限。与之相比,基于系统代谢调控机制的理性代谢工程改造在生产性能稳定性及遗传可控性方面更具优势。Guo等[11]通过启动子工程协同调控前体E4P、PEP及L-丝氨酸的供给水平,并通过强化L-色氨酸外排以降低胞内反馈抑制及代谢毒性效应,最终工程菌株在5 L发酵罐中L-色氨酸产量达到52.1 g/L,糖酸转化率为0.171 g/g,生产强度达到1.45 g/(L·h);吴亚东等[12]进一步从多层级代谢调控角度开展系统优化,通过敲除编码色氨酸操纵子阻遏蛋白的trpR基因,解除其对L-色氨酸生物合成相关基因的转录抑制,引入抗反馈抑制(feed-back resistance,fbr)突变体AroGfbr和TrpEfbr增强合成通量,同时强化中心碳代谢前体供给并优化转运及辅因子供应系统,该菌株在50 L发酵罐中经约45 h发酵L-色氨酸产量达到57.2 g/L,糖酸转化率为0.215 g/g。总体而言,传统诱变育种在工业菌株筛选中仍具有一定应用价值,而基于系统代谢调控的理性工程策略在改造效率、遗传稳定性及可预测性方面表现出更为稳定的技术优势。因此,通过多靶点协同调控开展系统代谢工程菌株构建,已逐步成为当前L-色氨酸工业菌株构建与性能提升的主流技术发展方向。
基于上述背景,本研究以工业生产菌株E.coli Trp为出发菌,借助CRISPR/Cas9遗传改造工具,系统实施多维度协同代谢工程改造(图1):1)削弱竞争支路途径:敲除副产物乙酸(poxB、tdcD)、乳酸(dld、ldhA)[13]及丙氨酸(alaA、avtA)[14]的合成相关基因;2)优化中心代谢途径:过表达xfpK[15]以强化前体物PEP和E4P的供应,过表达aroGfbr解除芳香族氨基酸对DAHP合成酶的反馈抑制[10,16];3)解除转录调控限制:在trpL位点[17]引入并过表达L-色氨酸操纵子(trpEDCBA)[13];4)增强产物外排能力:过表达转运蛋白YddG[18]以促进L-色氨酸向胞外转运。通过上述系统改造,实现碳代谢流向L-色氨酸合成途径的高效定向分配。
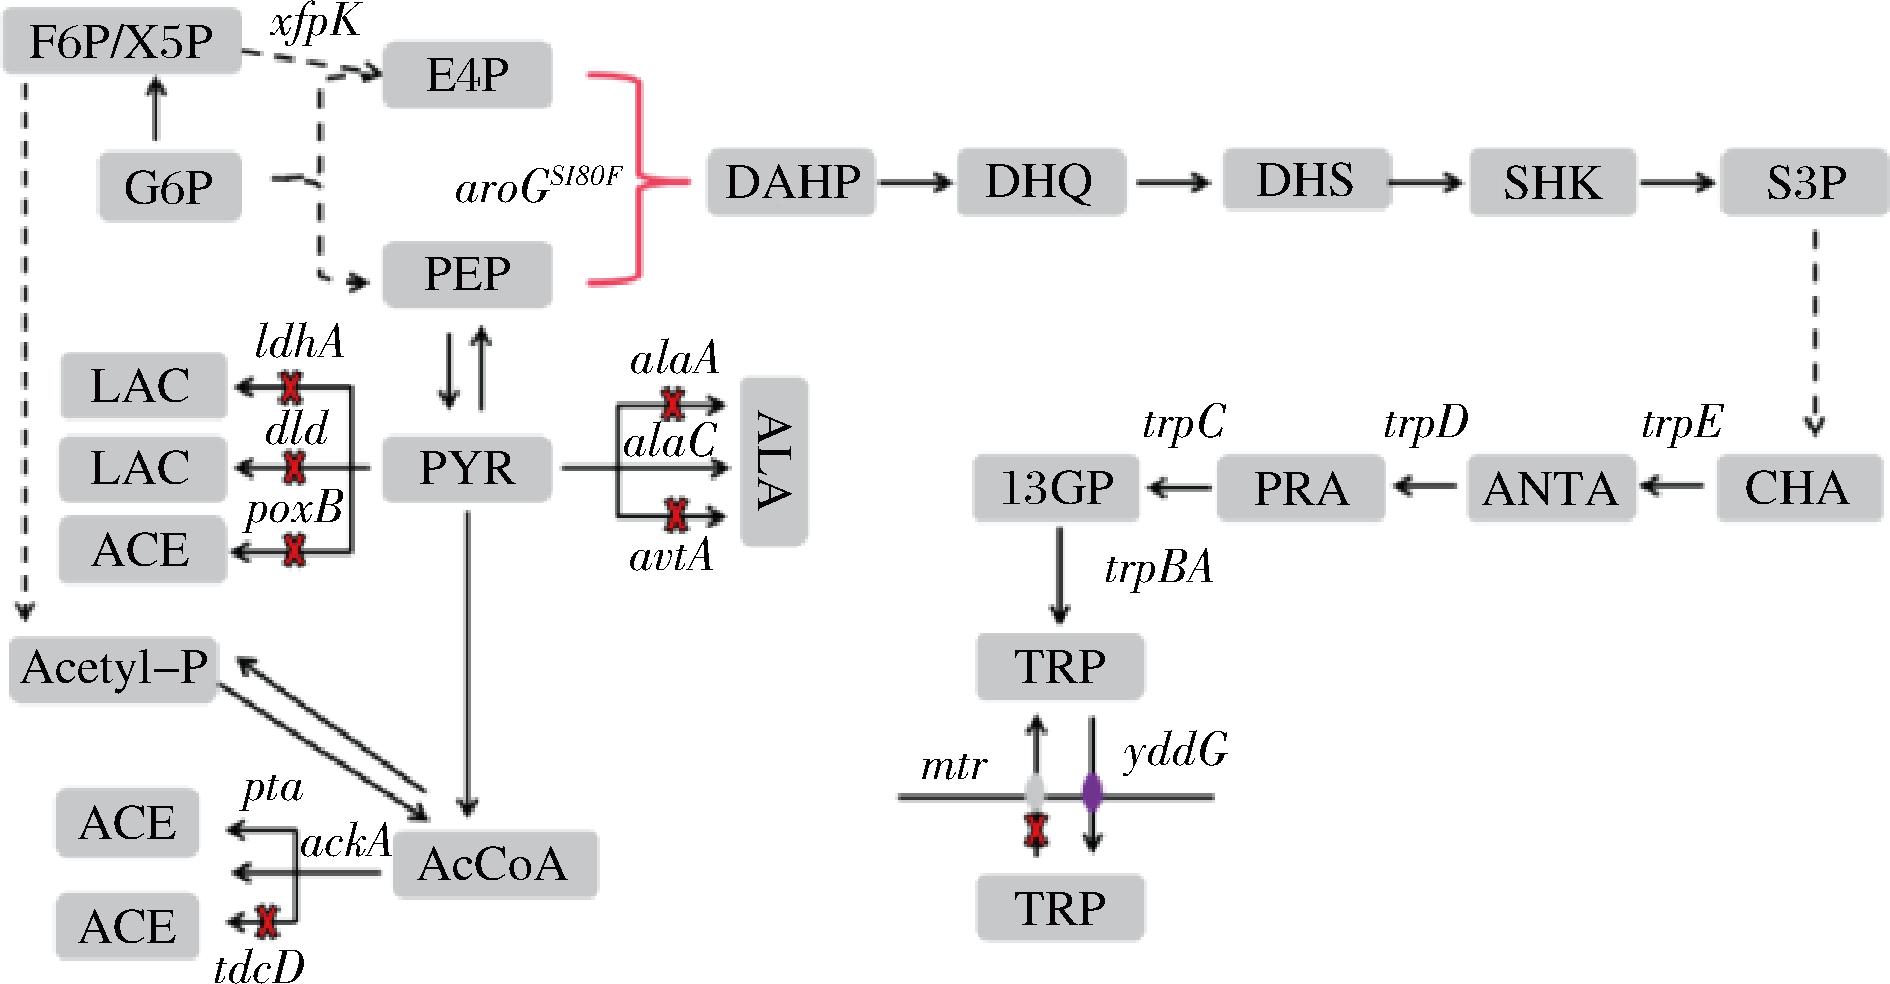
图1 大肠杆菌中色氨酸的合成途径
Fig.1 The L-tryptophan biosynthetic pathway involved in the E.coli strain
基于上述策略,本研究成功构建的工程菌株Trp14在50 L发酵罐中实现了(60.03±2.10) g/L的L-色氨酸产量和(0.237±0.002) g/g的糖酸转化率,整体发酵性能显著优于出发菌株。上述结果验证了多靶点协同代谢工程策略在该工业菌株中的有效性与可放大性,为L-色氨酸的工业化生产提供了具有实际应用潜力的工程菌株与工艺基础。
1 材料与方法
1.1 材料
1.1.1 菌株和质粒
本研究使用的菌株和质粒具体见电子版增强出版附表1(https://doi.org/10.13995/j.cnki.11-1802/ts.045705,下同)。
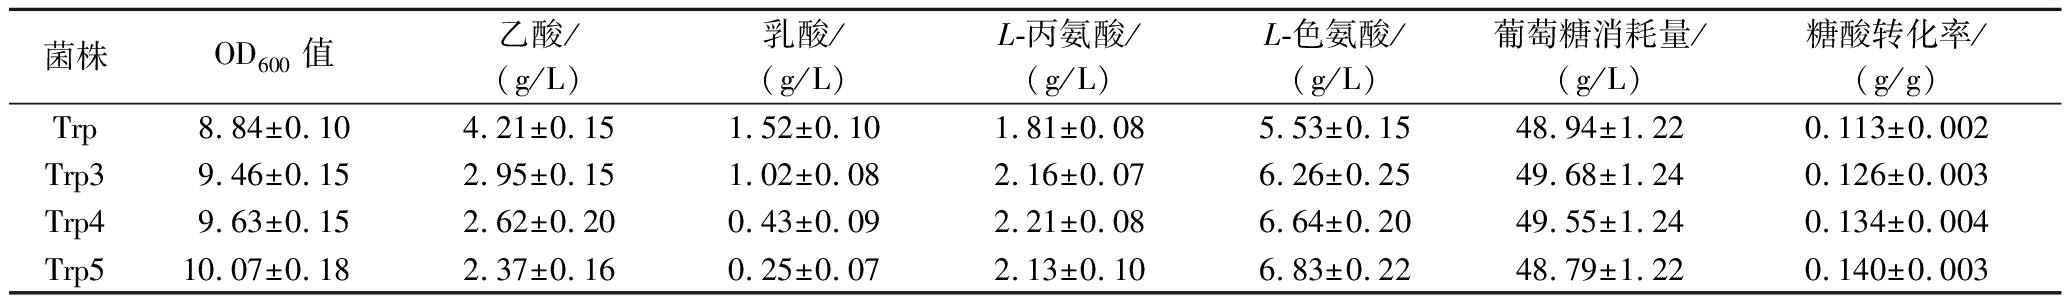
表1 摇瓶条件下不同E.coli工程菌株的生长特性、副产物积累及L-色氨酸合成性能比较
Table 1 Comparison of cell growth, byproduct accumulation, and L-tryptophan synthesis among different engineered E.coli strains
菌株OD600值乙酸/(g/L)乳酸/(g/L)L-丙氨酸/(g/L)L-色氨酸/(g/L)葡萄糖消耗量/(g/L)糖酸转化率/(g/g)Trp8.84±0.104.21±0.151.52±0.101.81±0.085.53±0.1548.94±1.220.113±0.002Trp39.46±0.152.95±0.151.02±0.082.16±0.076.26±0.2549.68±1.240.126±0.003Trp49.63±0.152.62±0.200.43±0.092.21±0.086.64±0.2049.55±1.240.134±0.004Trp510.07±0.182.37±0.160.25±0.072.13±0.106.83±0.2248.79±1.220.140±0.003
注:葡萄糖消耗量由初始葡萄糖浓度与发酵终点残余葡萄糖浓度差值计算获得。
1.1.2 培养基
本研究所用的培养基在Ding等[13]报道的基础上进行优化得到,具体组成如下:
LB培养基(g/L):胰蛋白胨10.0,酵母提取物5.0,NaCl 10.0。固体培养基中额外添加琼脂20.0。
SOB培养基(g/L):胰蛋白胨20.0,酵母提取物5.0,NaCl 0.6,KCl 0.2,MgCl2 1.0(灭菌后加入)。
种子培养基(g/L):K2HPO4 24.0,KH2PO4 9.6,酵母粉15.0,L-蛋氨酸1.5,柠檬酸三钠二水合物1.3,(NH4)2SO4 5.0,MgSO4 1.0,葡萄糖30.0,四环素50.0 μg/mL,pH值(7.1±0.1)。
发酵培养基(g/L):葡萄糖8.0,酵母浸粉(安琪酵母FM902)3.5,L-蛋氨酸1.1,(NH4)2SO4 1.4,柠檬酸2.0,KH2PO4 8.0,MgSO4 2.0,微量元素液1.0 mL/L,使用NaOH溶液调节pH值至7.0。
微量元素配方:FeSO4·7H2O 75.6 g/L,CoCl2·6H2O 4.0 g/L,CuSO4·5H2O 0.6 g/L,ZnSO4·7H2O 6.4 g/L,Na2SO4 20 g/L,MnSO4·H2O 4.5 g/L,维生素B3 1.5 mg/L,维生素B5 1.5 mg/L,维生素B12 2.0 mg/L,溶于5 mmol/L H2SO4中。
1.1.3 主要试剂和仪器
KAPA热启动HiFi高保真DNA聚合酶,罗氏诊断产品(上海)有限公司;Takara LA taq酶,宝日医生物技术(北京)有限公司;无缝克隆试剂盒,碧云天生物技术(北京)有限公司;胶回收试剂盒,Omega公司;质粒小提试剂盒及细菌基因组DNA提取试剂盒,天根生化科技有限公司;PEP ELISA检测试剂盒,上海科艾博生物技术有限公司;E4P酶联免疫分析试剂盒,上海雅吉杨生物科技有限公司。
Bio-Rad MicroPulser电转仪,伯乐生命医学产品(上海)有限公司;ZQZY-CF8V振荡培养箱,上海知楚仪器有限公司;T-6M紫外可见分光光度计,南京菲勒仪器(北京)有限公司;G-16高速低温离心机,赛多利斯科学仪器有限公司;SBA-40D生物传感分析仪,山东省科学院生物研究所;Agilent C18色谱柱(250 mm×4.6 mm,5 μm),安捷伦科技(中国)有限公司;Aminex HPX-87H色谱柱(7.8 mm×300 mm,8 μm),伯乐实验室有限公司。
1.1.4 引物
实验所使用的引物由苏州金唯智生物科技有限公司合成,具体见附表2。
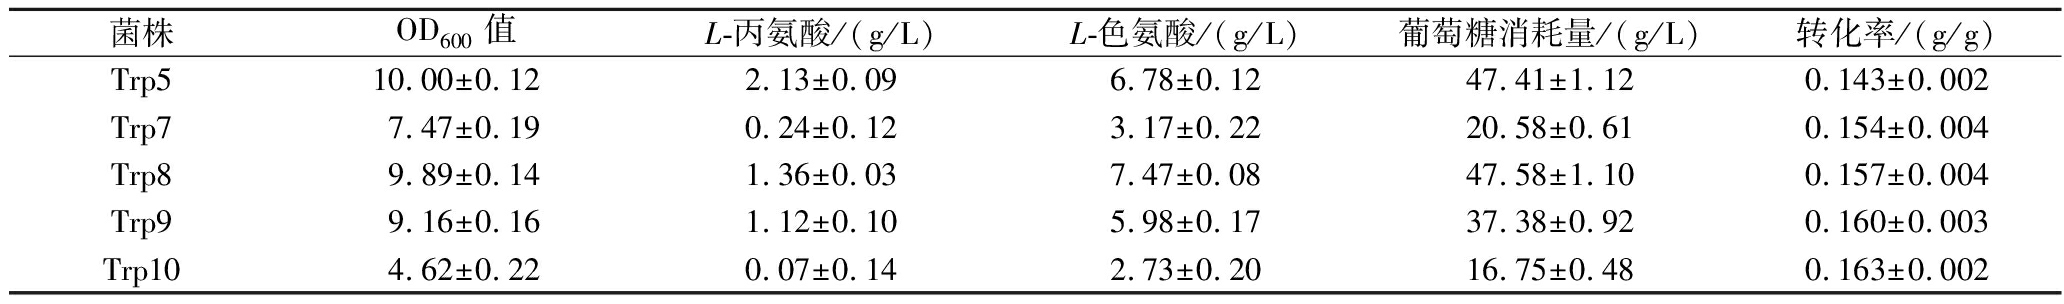
表2 丙氨酸转氨酶相关基因改造对工程菌摇瓶发酵性能的影响
Table 2 Effects of alanine transaminase-related gene modification in different engineered strains on fermentation performance
菌株OD600值L-丙氨酸/(g/L)L-色氨酸/(g/L)葡萄糖消耗量/(g/L)转化率/(g/g)Trp510.00±0.122.13±0.096.78±0.1247.41±1.120.143±0.002Trp77.47±0.190.24±0.123.17±0.2220.58±0.610.154±0.004Trp89.89±0.141.36±0.037.47±0.0847.58±1.100.157±0.004Trp99.16±0.161.12±0.105.98±0.1737.38±0.920.160±0.003Trp104.62±0.220.07±0.142.73±0.2016.75±0.480.163±0.002
1.2 CRISPR/Cas9基因编辑体系在工业菌株中的应用
1.2.1 色氨酸产生菌的转化
从-80 ℃甘油保藏管中吸取菌株,接种于含10 mL LB培养基的50 mL离心管中,在30 ℃、245 r/min条件下振荡培养过夜。取过夜培养液按1%(体积分数)接种至含100 mL LB培养基的250 mL三角瓶中,培养至OD600值为0.5~0.6后,冰浴30 min,并在4 ℃,5 000 r/min离心5 min,弃去上清液后,用预冷的10%(体积分数)甘油重悬菌体,重复离心与重悬步骤1次。最终用预冷的10%甘油重悬菌体并定容至1.0 mL。
电转化前,将冷冻的感受态细胞冰水浴20 min。使用预冷的2 mm电转杯,将约20 ng质粒加入到200 μL感受态细胞中,混匀后进行电击,电转参数设定为2.5 kV。电击结束后立即向电转杯中加入800 μL室温SOB培养基,将菌液转移至1.5 mL离心管中,在30 ℃、200 r/min条件下振荡复壮1 h。复壮后的菌液经梯度稀释后涂布于含壮观霉素的LB琼脂平板上,于30 ℃倒置培养16~20 h,用于后续转化子筛选与验证。
1.2.2 重组菌株的构建
1.2.2.1 关键基因筛选与改造策略设计
基于L-色氨酸合成途径的代谢网络特征,对影响色氨酸合成效率及副产物形成的关键基因进行了系统筛选,并据此制定相应的代谢工程改造方案。为削弱竞争代谢支路并降低副产物积累,选择参与乙酸(poxB、tdcD)、乳酸(ldhA、dld)和丙氨酸(alaA、avtA、alaC)合成的相关基因进行敲除;为增强芳香族氨基酸合成前体供给能力,采用组成型启动子PJ23100驱动xfpK基因表达,以提高PEP和E4P的供给水平;利用组成型启动子PJ23119过表达抗反馈抑制突变体aroGfbr,以解除苯丙氨酸对DAHP合成酶的反馈抑制,增加莽草酸途径的碳流通量;针对色氨酸合成途径的转录调控限制,在trpL位点引入组成型启动子PJ23100驱动的trpEDCBA表达模块,以解除转录衰减调控并增强下游结构基因的表达;最后使用PJ23119启动子强化L-色氨酸外排蛋白基因yddG的表达,以提高产物向细胞外转运的效率。
1.2.2.2 基因组编辑
为实现E.coli Trp菌株的多基因敲除与过表达改造,本研究采用CRISPR/Cas9基因编辑体系[19]进行多轮基因组编辑。首先,将携带Cas9蛋白表达元件的pCas9质粒转化至E.coli Trp感受态细胞中,获得编辑宿主菌株。随后,针对每个靶基因设计对应sgRNA,并将sgRNA表达框及目标基因上下游同源臂整合至pGRB载体中,构建相应的基因编辑质粒。以ldhA基因敲除为例,分别使用相应的引物对扩增其上下同源臂片段,同时使用相应的引物对扩增载体骨架。通过无缝克隆试剂盒将上述片段组装,获得编辑质粒pGRB-ΔldhA。将20 ng pGRB-ΔldhA质粒转化至含pCas9质粒的E.coli Trp感受态细胞中,转化子涂布于含氨苄青霉素和壮观霉素的LB琼脂平板上,在30 ℃条件下培养48 h。挑选单菌落进行菌落PCR验证,筛选获得正确编辑的重组菌株。采用相同的CRISPR/Cas9基因编辑策略,完成其他目标基因的敲除或过表达构建。
1.3 重组菌株发酵
1.3.1 菌体活化
LB培养基经高压灭菌后,冷却至约45 ℃,于无菌条件下加入四环素,制备含抗生素的LB琼脂平板及斜面培养基。菌株经平板划线复苏后,挑取单菌落接种至斜面培养基进行一代活化,在35 ℃条件下培养14~16 h;随后进行二代活化,在相同条件下培养12~14 h,用于后续发酵实验。
1.3.2 摇瓶培养
种子培养:将种子培养基中的葡萄糖质量浓度调整至6 g/L,取二代活化后的斜面菌体使用10 mL无菌生理盐水进行洗脱并充分混匀,取1 mL菌悬液接种至含50 mL种子培养基的500 mL三角瓶中,在35 ℃、250 r/min振荡培养7~8 h,菌体生长至OD600值为4.5~5.5。
摇瓶发酵:将发酵培养基初始葡萄糖质量浓度调整至50 g/L,按照10%(体积分数)的接种量将种子液接种至含25 mL发酵培养基的250 mL三角瓶中,在35 ℃、230 r/min的条件下振荡培养约43 h。
1.3.3 分批补料发酵
种子罐培养:将1.3.2 节中培养好的种子液按 0.5% 接种至含10 L种子培养基的30 L发酵罐中,培养温度控制在35 ℃,初始搅拌速度设为350 r/min,溶解氧(dissolved oxygen,DO)自然下降后通过调节搅拌转速将DO控制在20%~50%,当菌体生长至OD600 值为11~13时,达到移种标准。
发酵罐培养:将种子液按20%的接种量转接至含有25 L发酵培养基的50 L发酵罐中,培养温度维持在35 ℃,初始搅拌速度为300 r/min,通气量设定为0.8 L·L-1·min-1,发酵过程通过流加25%的氨水调节pH,并结合菌体生长状态实施分阶段控制策略:OD600<7时,pH值控制在7.0;7≤OD600≤20时,pH值控制在6.8;20
1.4 检测方法
葡萄糖浓度检测:采用SBA-40D生物传感分析仪进行测定。
L-色氨酸浓度检测:采用Agilent C18色谱柱进行分离。流动相为V(0.4% KH2PO4水溶液)∶V(甲醇)=8∶2,流速1.0 mL/min;柱温40 ℃;检测波长210 nm。
L-丙氨酸浓度检测:使用RP-HPLC法测定[21]。
有机酸浓度测定:使用Aminex HPX-87H色谱柱进行HPLC分析。以5 mmol/L稀硫酸作为流动相,流速0.6 mL/min,柱温52 ℃,在210 nm波长下进行紫外检测和定量分析。
细胞内代谢物检测:PEP测定采用PEP ELISA检测试剂盒;E4P测定采用E4P酶联免疫分析试剂盒[13]。
2 结果与分析
2.1 阻断色氨酸的竞争支路合成途径
在高糖发酵条件下,工业菌株常伴随乙酸、乳酸及丙氨酸等副产物的积累,导致碳源利用效率下降。基于此,本研究选用E.coli Trp工业生产菌株作为底盘,对相关竞争代谢通路进行了分步削弱,以降低副产物积累并提升L-色氨酸的产量与转化效率。
2.1.1 乙酸与乳酸合成途径的阻断
在上述竞争代谢支路中,乙酸与乳酸合成途径是发酵过程中最为常见的碳流泄漏通路,其产物积累会降低碳源向L-色氨酸合成途径的有效分配,并对细胞生长和发酵性能产生不利影响。因此,优先对乙酸和乳酸合成途径进行削弱[15,22]。为减少乙酸生成,对菌株E.coli Trp中的丙酮酸氧化酶基因poxB与丙酸激酶基因tdcD进行敲除;为降低乳酸生成,则进一步敲除了乳酸脱氢酶基因ldhA[23]及醌依赖型乳酸脱氢酶基因dld[13]。
构建的工程菌株在摇瓶水平进行了发酵验证,其结果如表1和附表3所示。与出发菌株E.coli Trp相比,各突变株的细胞生物量(OD600)整体保持稳定,部分菌株出现一定程度提高。其中,Trp5的OD600值达到10.07±0.18,较对照菌株提高约13.91%,表明上述改造未对细胞生长造成负面影响,反而促进了菌体积累。在副产物生成方面,Trp5的乙酸和乳酸积累水平均显著降低,其乙酸和乳酸质量浓度分别为(2.37±0.16) g/L和(0.25±0.07) g/L,较出发菌株分别降低43.71%和83.55%。随着竞争副产物合成通路的削弱,Trp5的L-色氨酸产量也较出发菌株提高了23.51%,显示出碳流向目标产物方向的有效重分配。同时,糖酸转化率由(0.113±0.002) g/g提升至(0.140±0.003) g/g,增幅约为23.89%。
对不同工程菌株的综合性能进行比较可以发现,随着乙酸和乳酸积累水平的降低,菌株整体发酵性能呈现改善趋势。其中Trp3、Trp4以及Trp5表现较为稳定,而Trp5在副产物控制、L-色氨酸产量及糖酸转化率等方面均表现最优,并保持了良好的生长状态。上述结果表明,在不引起明显生长负担的前提下,适度削弱乙酸和乳酸等竞争支路,有助于提高碳源向L-色氨酸合成途径的分配效率,从而为后续代谢强化改造奠定基础。
2.1.2 丙氨酸合成途径的敲低
如表1所示,在合成目标产物L-色氨酸的同时,菌株仍伴随较高水平的L-丙氨酸积累。为了降低副产物L-丙氨酸的积累并且促使碳代谢流导向色氨酸合成途径,在Trp5工程菌的基础上分别敲除了alaA、alaC和avtA等丙氨酸转氨酶相关基因,构建了Trp6-Trp10系列工程菌株。
如表2和附表4所示,丙氨酸转氨酶相关基因的缺失均在不同程度上降低了丙氨酸的积累,其中,单基因缺失突变株Trp6-1(ΔalaA)与Trp6-2(ΔalaC)的丙氨酸含量分别降低至(1.78±0.05) g/L以及(1.59±0.08) g/L,较Trp5工程菌分别降低了16.43%和25.35%(附表4)。相比之下,双基因以及三基因缺失的突变株的削减效果更为显著,其中Trp7和Trp10的丙氨酸含量分别为(0.24±0.12) g/L 和(0.07±0.14) g/L,较Trp5降幅达到88.73%与96.71%。然而,随着丙氨酸合成途径被大幅削弱,Trp7和Trp10的生长均受到明显抑制(表2),表明过度抑制该支路会破坏细胞代谢平衡。相比之下,单基因敲除株以及部分双基因敲除株的生长基本不受影响,说明在一定范围内削弱丙氨酸合成不会对菌体生长造成显著负面影响。在生长保持稳定的前提下,Trp6-1、Trp6-2及Trp8的L-色氨酸产量均高于出发菌株Trp5,其中Trp8的色氨酸产量达到(7.47±0.08) g/L,较Trp5提升幅度为10.18%(表2和附表4)。相较之下,Trp7、Trp9和Trp10的色氨酸产量都分别下降至(3.17±0.22)、(5.98±0.17) g/L和(2.73±0.20) g/L,主要原因在于其细胞生长和整体代谢活性受到明显抑制。尽管Trp9和Trp10的糖酸转化率分别达到(0.160±0.003) g/g和(0.163±0.002) g/g,较Trp5提高11.89%和13.98%,但由于生物量积累不足,其总体产物生成能力受限,因此并不具备工业应用价值。
综上所述,在保证菌体生长稳定的前提下,适度削弱丙氨酸合成通路有助于降低副产物积累并提高L-色氨酸产量及糖酸转化率。这一结果表明,在代谢工程改造过程中,在副产物削减与细胞代谢稳定性之间寻求合理平衡,以实现色氨酸合成效率的最优化。
2.2 中心代谢强化与前体供应提升
在竞争支路得到有效削弱后,进一步通过解除关键酶的反馈抑制并强化中心代谢途径,以提升芳香族氨基酸合成前体的供给能力。在细胞中心代谢网络中,PEP和E4P等关键碳源前体[24]在DAHP合酶的催化下缩合生成DAHP,进入莽草酸途径并进一步转化为色氨酸、苯丙氨酸及酪氨酸等芳香族氨基酸[25-26]。然而,该酶同时受到苯丙氨酸、酪氨酸及色氨酸的多重反馈抑制,限制了碳流向莽草酸途径的分配。基于此,本研究从解除DAHP合成酶反馈抑制及增强前体供给2个层面,对中心代谢途径进行针对性优化。
首先,在菌株Trp8的基础上引入抗反馈抑制突变体aroGS180F,构建工程菌株Trp11,该改造有效削弱了苯丙氨酸对DAHP合成酶的反馈抑制,促进PEP与E4P朝向莽草酸途径的定向流动(图2-a)。摇瓶发酵结果显示,Trp11的L-色氨酸产量提升至(8.12±0.09) g/L,糖酸转化率提高至(0.167±0.002) g/g,表明解除反馈抑制可显著增强芳香族氨基酸合成通量。在此基础上,为进一步增强E4P的供给能力,将来源于青春双歧杆菌(Bifidobacterium adolescentis)的xfpK基因(编码木酮糖-5-磷酸磷酸裂解酶)整合至Trp11的mtr位点[27],并由Ptrc启动子驱动表达,构建了引入磷酸裂解酶(phosphoketolase,PK)途径的工程菌株Trp12。该策略在强化E4P前体供给的同时,mtr位点功能的部分削弱可能在一定程度上降低外源L-色氨酸的跨膜摄取,有助于维持较低的胞内瞬时色氨酸水平,从而进一步缓解反馈抑制效应。在上述改造的协同作用下,Trp12的L-色氨酸产量提高至(8.77±0.14) g/L,糖酸转化率达到(0.181±0.002) g/g,较Trp8分别提升17.40%和15.29%。
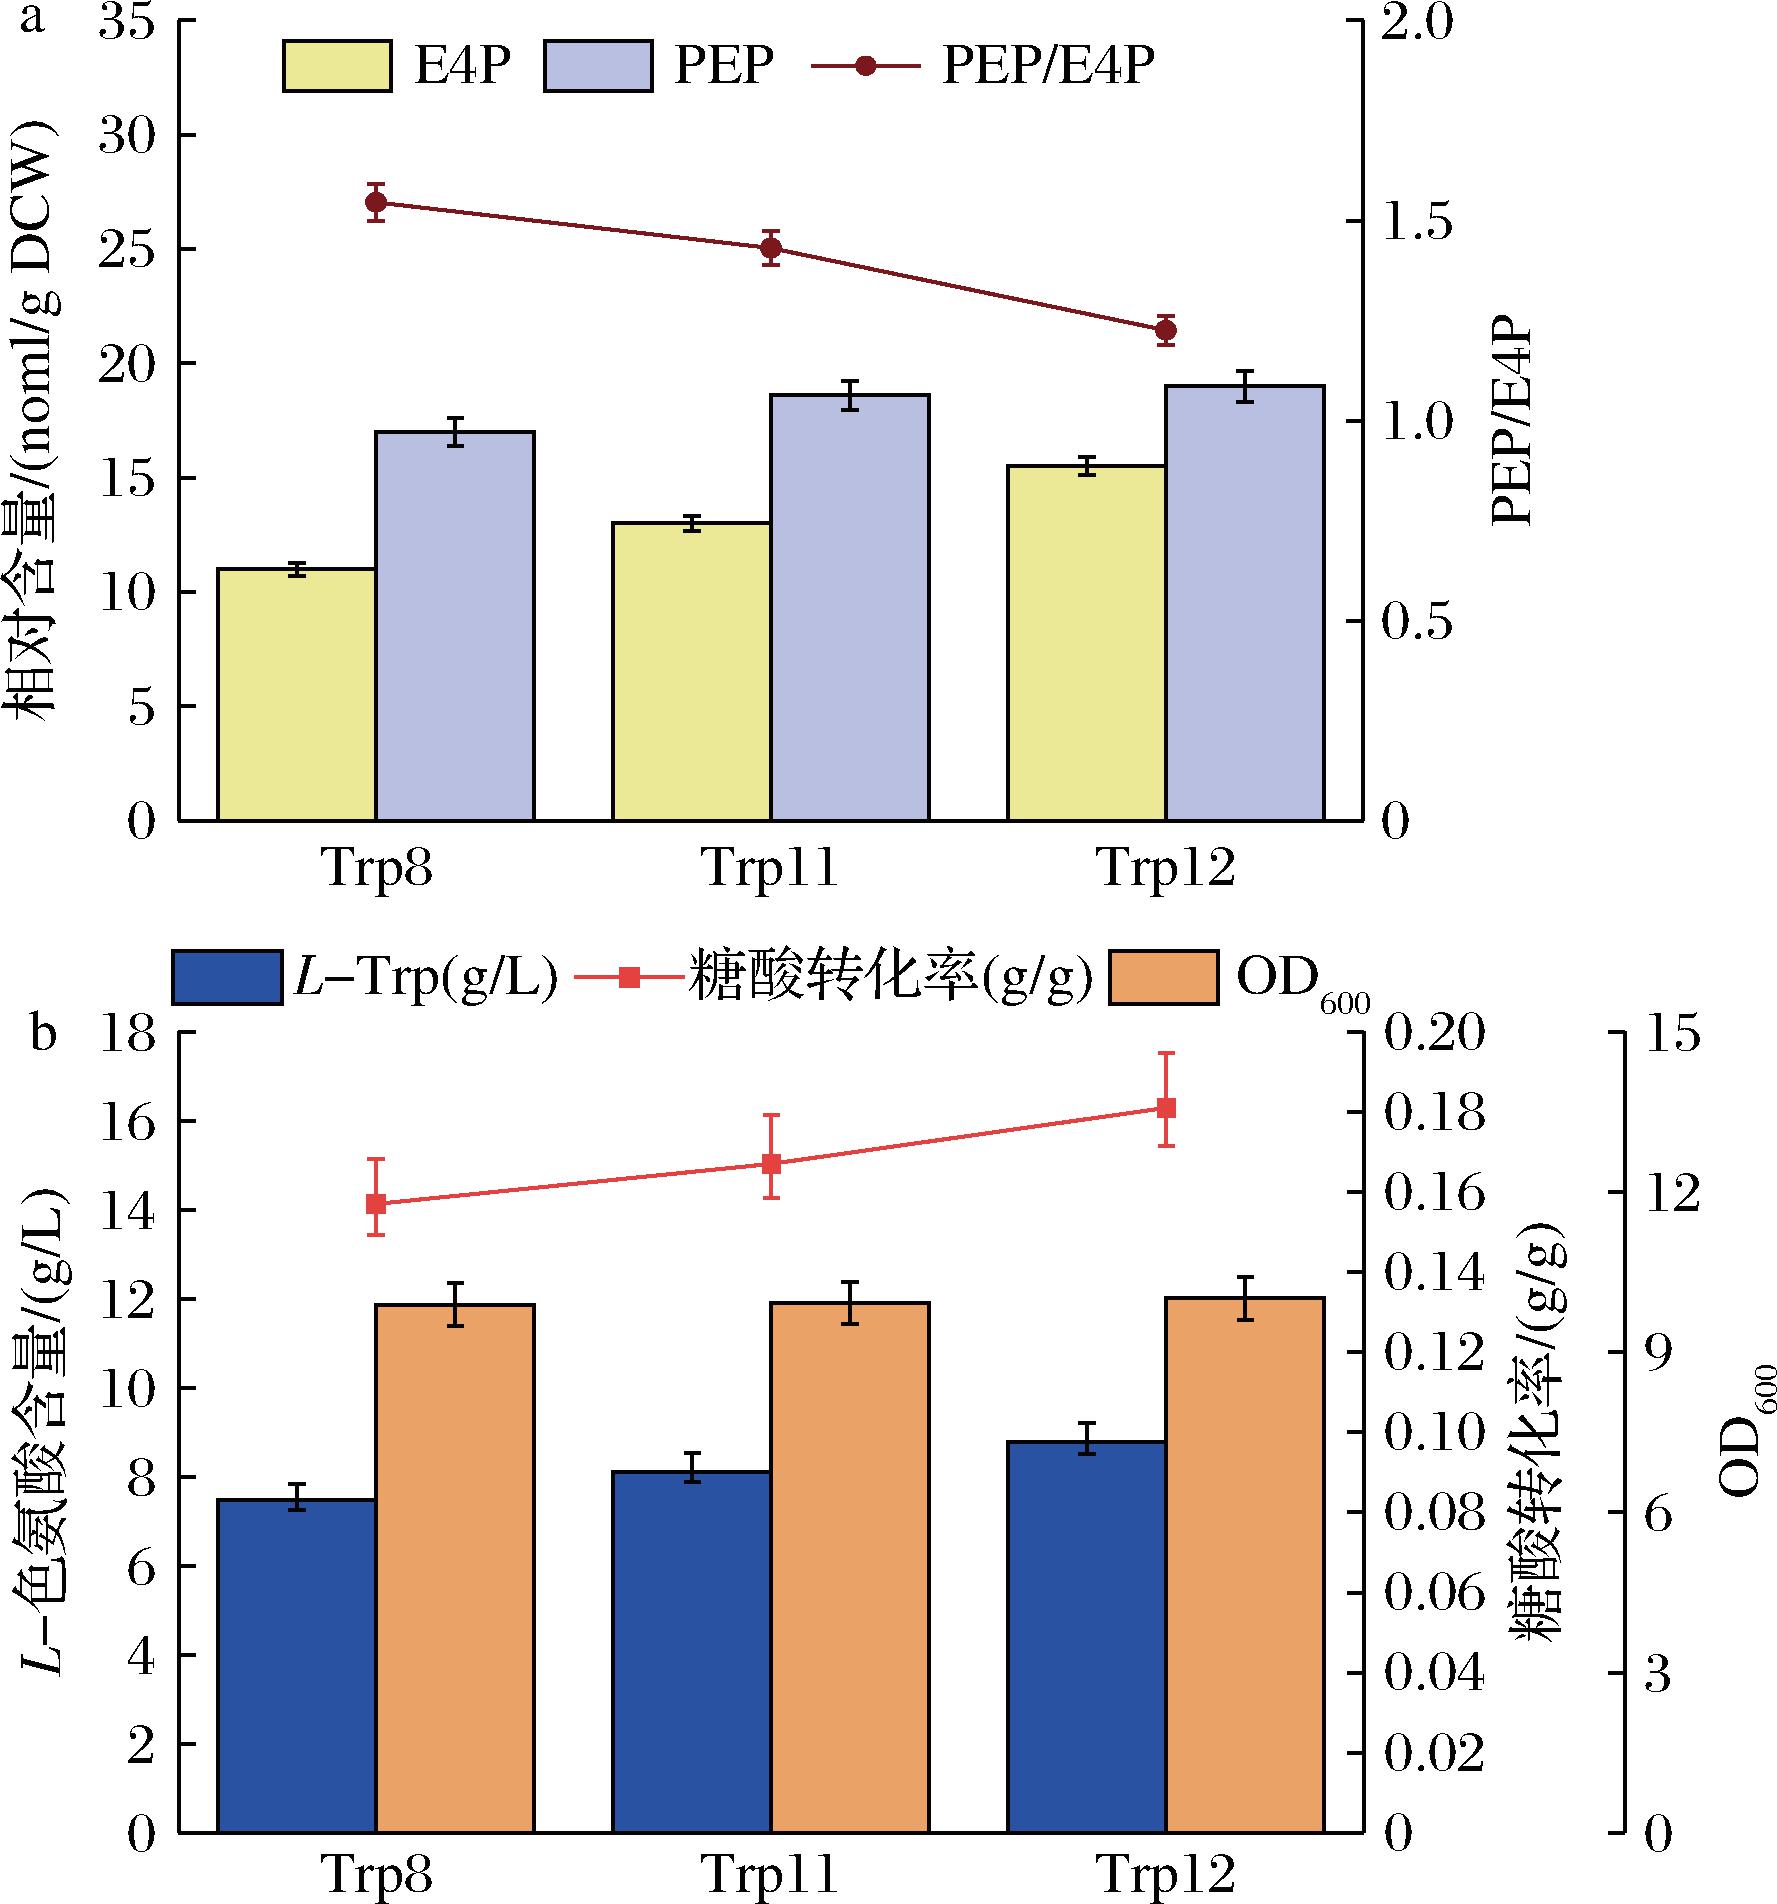
a-Trp8、Trp11和Trp12菌株胞内PEP和E4P的相对含量及PEP/E4P比值;b-Trp8、Trp11和Trp12菌株的L-色氨酸含量、OD600值和糖酸转化率
图2 中心代谢途径强化对工程菌L-色氨酸合成的影响
Fig.2 Effects of the optimization of central carbon pathway on L-tryptophan synthesis in engineered strain
2.3 合成途径解抑制与外排系统增强
在前体供给能力得到强化的基础上,进一步通过解除合成通路调控并增强产物外排能力,以释放L-色氨酸合成潜力。
2.3.1 解除trpL衰减调控以增强trp操纵子表达
在大肠杆菌中,trp操纵子(trpEDCBA)的转录受到trpL前导区的衰减调控。该调控方式通过前导肽翻译与转录过程的耦联,响应胞内色氨酸水平变化,从而调节下游结构基因的表达[28-29]。此外,trp操纵子还受到TrpR的转录阻遏作用,使其在高色氨酸条件下整体表达水平显著降低。
在此基础上,本研究在Trp12菌株的trpL位点引入组成型强启动子PJ23100,构建由其驱动的trpEDCBA表达系统,获得工程菌株Trp13,从而绕过trpL介导的转录衰减调控,实现trp操纵子的持续表达。摇瓶发酵结果(图3)显示,Trp13的L-色氨酸产量提高至(9.76±0.13) g/L,较Trp12提升约11.29%,糖酸转化率提升至(0.197±0.003) g/g,提高约8.84%,而菌体生长(OD600)未出现明显变化。该结果表明,在前体供给充足的背景下,解除trpL衰减调控有助于提高trp操纵子的表达水平,从而增强分支酸向L-色氨酸合成方向的代谢通量,促进L-色氨酸的进一步积累。
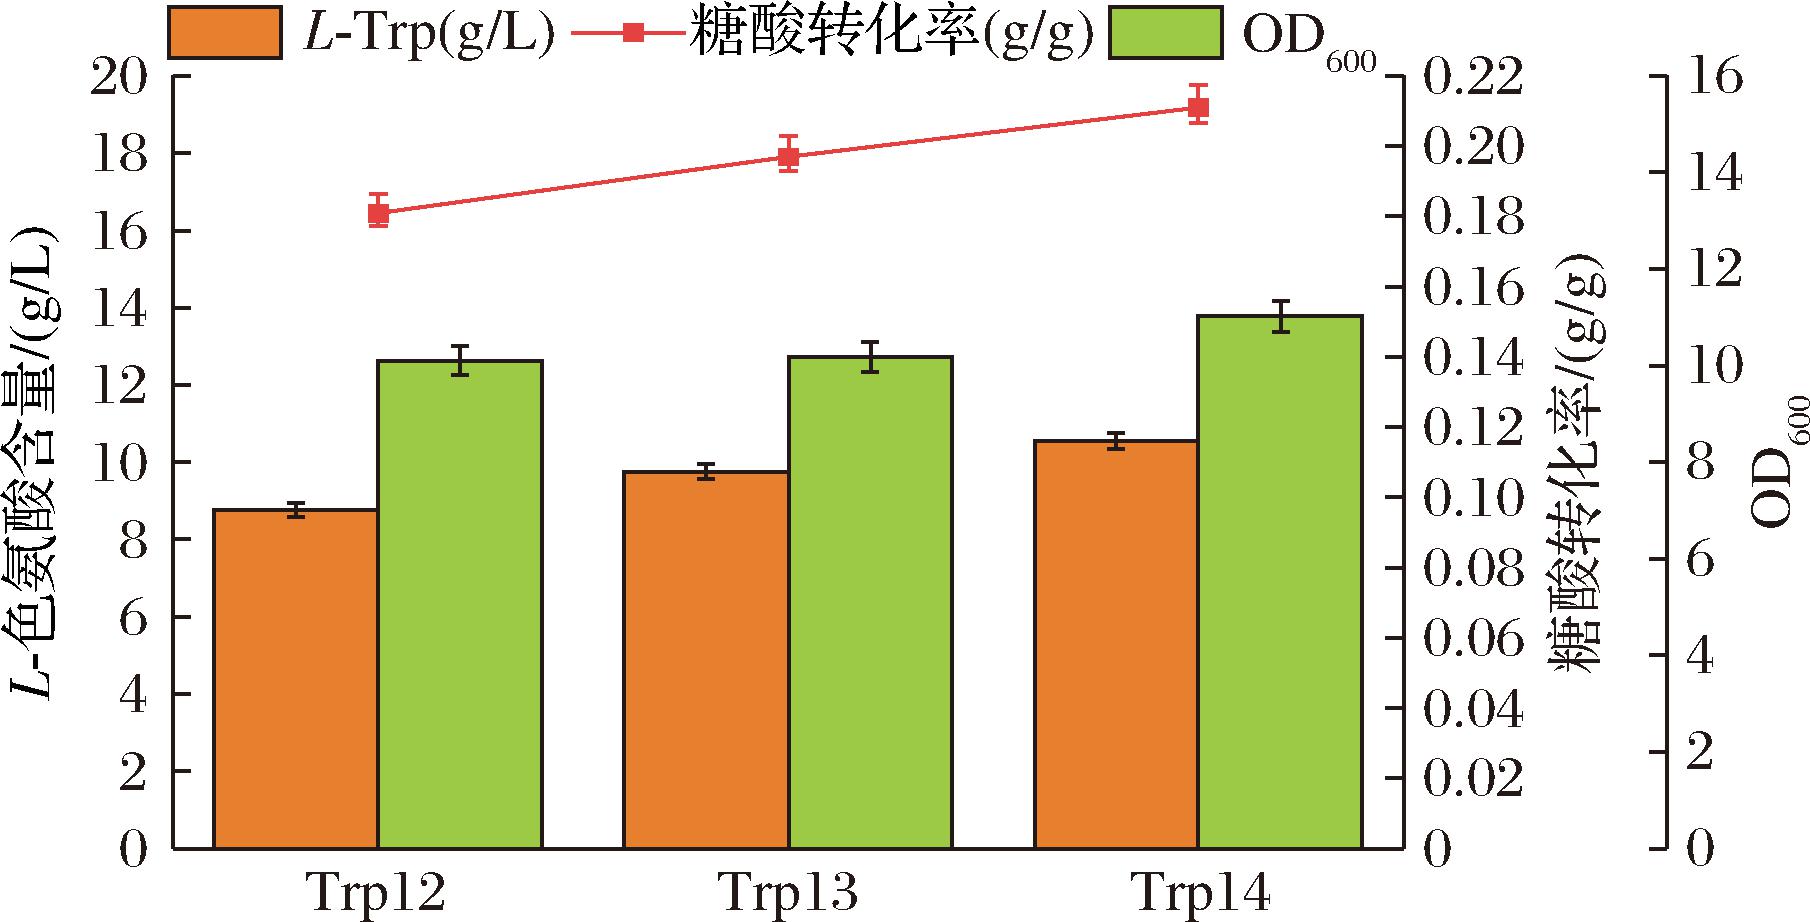
图3 trp操纵子解抑制及yddG外排增强对L-色氨酸合成性能的影响
Fig.3 Effects of trp operator de-repression and yddG efflux optimization on L-tryptophan biosynthesis
2.3.2 增强yddG介导的色氨酸外排以缓解胞内反馈抑制
在完成竞争支路削弱、前体供给增强及合成通路解抑制等改造后,工程菌中色氨酸合成通量显著提高,发酵过程中胞内L-色氨酸的积累水平随之上升。已有研究表明,L-色氨酸在胞内过量积累可能引发渗透压升高、生长受限及反馈抑制等不利效应,从而限制通路的持续高效运行。因此,在合成能力显著增强的背景下,同步提升产物外排能力,对于维持代谢通量稳定具有重要作用。
YddG被报道为大肠杆菌中参与芳香族氨基酸外排的转运蛋白,其表达增强有助于将胞内合成的L-色氨酸及时转运至胞外,从而缓解产物积累带来的代谢压力。基于此,本研究在Trp13菌株的中性位点yjiV[16]处整合由组成型启动子PJ23119驱动的yddG表达元件,以增强L-色氨酸的外排能力,获得工程菌株Trp14。摇瓶发酵结果(图3)显示,Trp14的L-色氨酸产量进一步提高至(10.55±0.11) g/L,糖酸转化率达到(0.211±0.003) g/g,均较Trp13有所提升。同时,Trp14的菌体生长(OD600)略有提高,表明外排能力的增强在一定程度上缓解了胞内代谢负担,有利于菌体生长及L-色氨酸的持续积累。
2.4 工程菌Trp14在50 L罐中的补料分批发酵性能
前述研究通过对竞争支路阻断、关键酶反馈抑制解除以及产物外排能力增强等多层次代谢工程改造,显著强化了工程菌株Trp14的L-色氨酸合成通量。然而,上述遗传改造在提高目标产物合成能力的同时,也相应改变了细胞的代谢负荷、能量需求及碳氮代谢分配格局。若仍沿用出发菌株的原有发酵工艺条件,往往难以充分释放工程菌株的生产潜力,甚至可能导致生长受限或代谢失衡。因此,有必要结合工程菌株新的代谢特征,对补料策略及关键过程参数进行针对性优化。
在碳源供给方面,为避免高浓度葡萄糖引发溢流代谢及代谢抑制,初始葡萄糖质量浓度控制在10.0 g/L以内,并在初糖基本耗尽后启动补料,整个发酵过程中残糖质量浓度维持在0.5 g/L以下。在氮源供给方面,考虑到L-色氨酸合成对芳香族氨基酸通路通量的依赖,需要在碳骨架供给(PEP/E4P)与氨基供体供给之间保持协调,采用pH与OD600关联的控制策略,根据菌体生长状态将pH值由7.0分阶段下调至6.5。在溶氧控制方面,于高密度培养阶段提高搅拌转速与通气量[≥1.0 L/(L·min)],并实施分阶段DO控制策略:生长期维持在30%~40%,高密度阶段控制在30%~35%,产物积累期稳定在25%~35%。
在上述优化工艺条件下,将工程菌株E.coli Trp14应用于50 L发酵罐补料分批发酵,并以出发菌株E.coli Trp作为对照,发酵周期为48 h。如图4所示,发酵初期(0~4 h),2株菌均处于环境适应阶段,生长速率相近,但Trp14的耗糖速率明显高于对照菌株,在约2.5 h时残糖质量浓度降至1.0 g/L以下并开始补料。在L-色氨酸合成方面,发酵前8 h内2株菌的产物生成速率基本一致;12 h之后,Trp14的L-色氨酸合成速率明显加快,产量持续上升,最终达到(60.03±2.10)g/L,约为对照菌株的1.4倍。整个发酵过程中,Trp14的残糖浓度始终维持在较低水平,其糖酸转化率最高达到(0.237±0.002) g/g,较对照菌株提高53.13%,显示出更高的碳源利用效率及向目标产物的代谢通量分配能力。综上所述,在50 L发酵罐补料分批条件下,工程菌株Trp14表现出较高的生物量水平和稳定的L-色氨酸合成能力,验证了前期代谢工程改造与发酵工艺优化在放大条件下的协同效果。
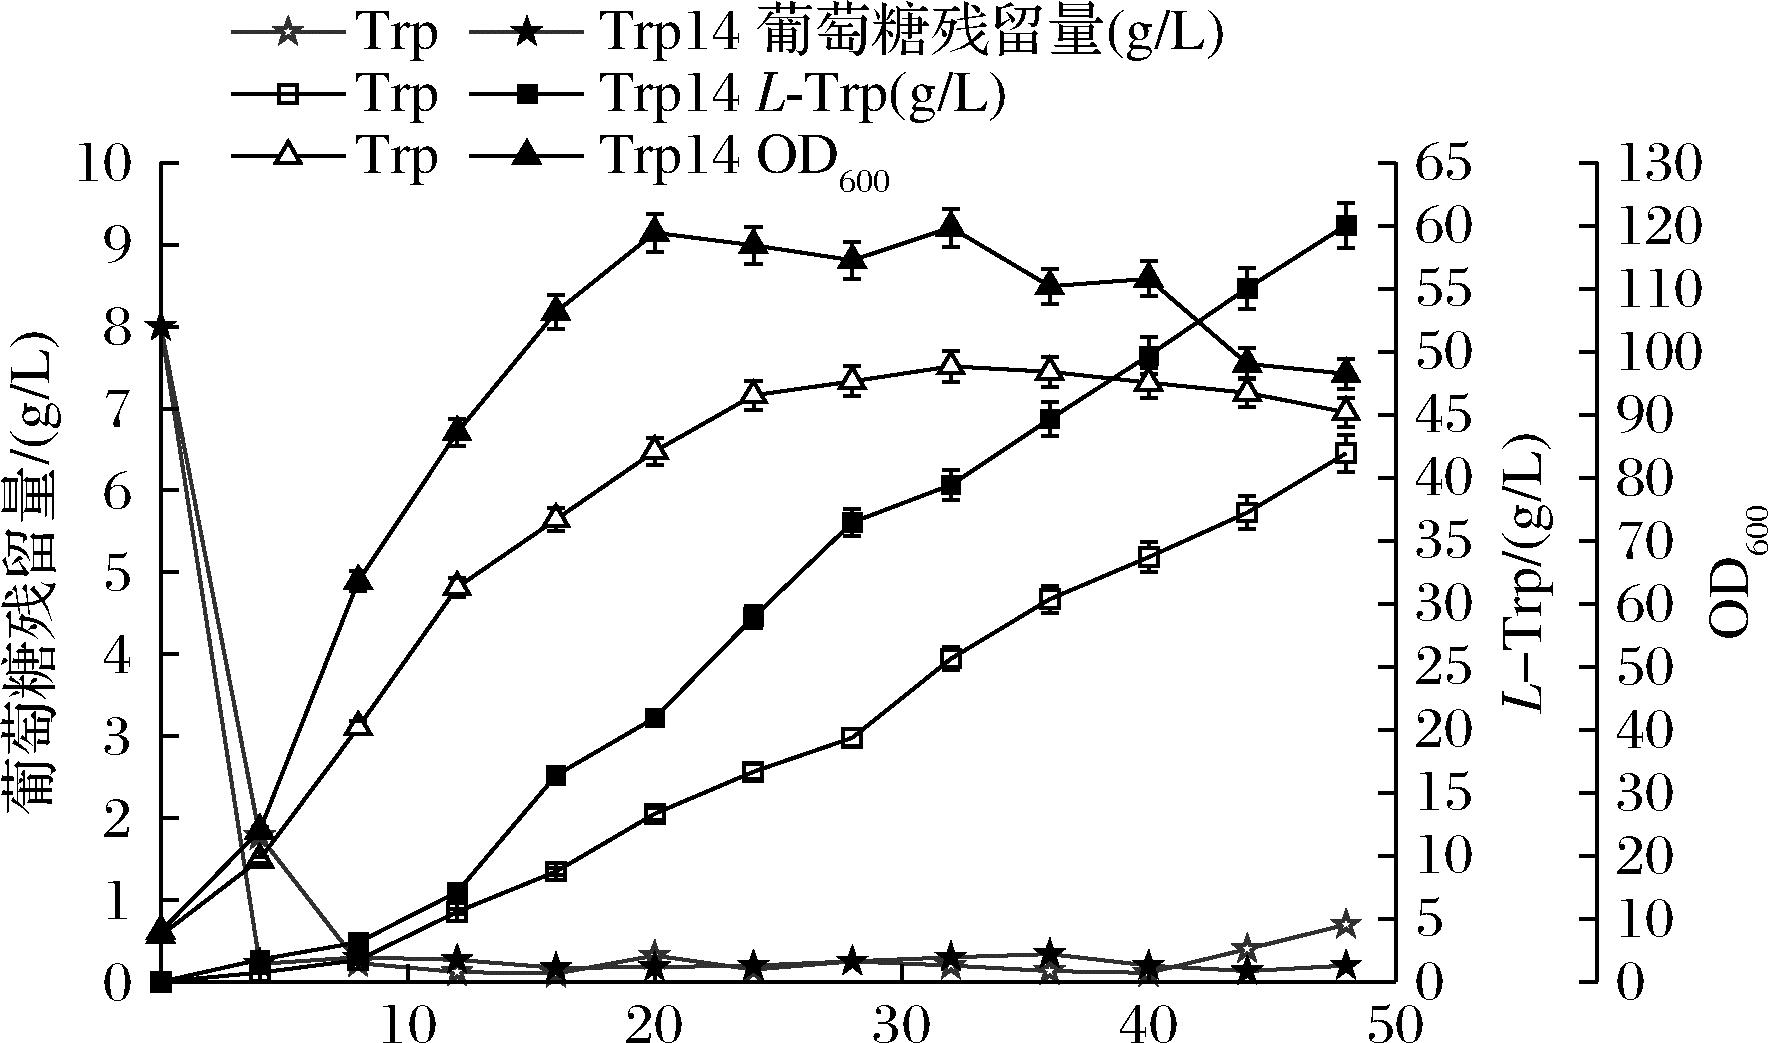
图4 Trp14与对照菌株在50 L发酵罐分批补料培养中的生长、底物消耗及L-色氨酸生成的对比
Fig.4 Comparison of cell growth, substrate consumption, and L-tryptophan production of Trp14 and the control strain during fed-batch fermentation in 50 L bioreactor
3 总结与讨论
L-色氨酸的微生物合成受多层级代谢调控网络的协同制约,主要体现在中心碳代谢与竞争支路之间的碳流分配、关键限速节点的反馈抑制以及高产条件下胞内产物积累引发的代谢胁迫等方面。本研究结果表明,通过多维度重构代谢网络,在强化合成通量的同时可有利于维持细胞生理稳态,从而为工程菌株在高密度发酵及放大生产条件下实现稳定、高效生产提供支撑。
本研究以工业生产菌株E.coli Trp为底盘,系统实施了竞争支路削弱、中心代谢强化、合成通路解抑制及产物外排增强等多层次代谢工程改造,构建了L-色氨酸高产工程菌Trp14。在50 L发酵罐补料分批条件下,该菌株的L-色氨酸产量达到(60.03±2.10) g/L,糖酸转化率达到(0.237±0.002) g/g,均显著优于出发菌株,表明多靶点协同代谢工程策略在该工业菌株中具有良好的有效性与稳定性。
在代谢网络调控层面,通过削弱乙酸、乳酸及丙氨酸等竞争副产物合成途径,显著减少了碳源在非目标支路中的分散,在不影响甚至一定程度促进细胞生长的前提下,提高了碳源利用效率。该结果表明,对副产物通路进行适度的削弱,有助于在维持代谢网络稳定性的同时实现碳流向目标产物合成方向的有效重定向。
在中心代谢优化方面,引入抗反馈抑制突变体aroGS180F并高表达xfpK,有效增强了PEP与E4P等关键前体的供给能力,缓解了莽草酸途径的通量瓶颈,从而提高了碳流向色氨酸合成通路的分配比例。该策略与竞争支路削弱形成协同效应,为下游合成通路的持续高效运行提供了稳定的物质基础。
在合成通路调控与产物转运方面,通过解除trpL介导的转录衰减并增强trpEDCBA操纵子表达,提高了色氨酸合成酶在高产条件下的表达水平;同时,在yjiV中性位点整合yddG外排模块,增强了色氨酸向胞外的转运能力,降低了胞内产物积累引发的反馈抑制与代谢胁迫。上述结果表明,通路解抑制与外排增强的协同调控,是实现高产与高转化率并存的重要保障。
在放大发酵验证中,工程菌株Trp14在50 L规模下表现出良好的生长特性与代谢稳定性。基于DO-stat原理设计的补料策略,使发酵过程中残糖水平始终维持在较低范围,有效避免了溢流代谢及副产物积累,确保了碳源向目标产物的高效转化。与出发菌株相比,Trp14在高密度培养条件下仍能保持较高的色氨酸合成速率和糖酸转化效率,显示出良好的工艺放大适应性。
综上所述,本研究构建了一条以工业菌株为对象的“基因编辑工具-多靶点代谢调控-50 L放大发酵验证”一体化改造路径,不仅获得了一株具有良好工业应用潜力的L-色氨酸高产菌株Trp14,也为其他氨基酸及重要代谢产物的理性设计与规模化构建提供了可借鉴的工程化思路。
[1] Ren X R, Wei Y, Zhao H L, et al.A comprehensive review and comparison of L-tryptophan biosynthesis in Saccharomyces cerevisiae and Escherichia coli[J].Frontiers in Bioengineering and Biotechnology, 2023, 11:1261832.
[2] Shen G T, Liu Y Q, Ji N X, et al.Advances in fermentative production of L-tryptophan:A review[J].Chinese Journal of Biotechnology, 2024, 40(3):621-643.
[3] Xie K L, Feng X J, Zhu S Q, et al.Effects of tryptophan supplementation in diets with different protein levels on the production performance of broilers[J].Animals (Basel), 2024, 14(13):1838.
[4] Adekunle H, Balogun O.Tryptophan and HTP supplementation in the treatment of cognitive and mood disorders:A systematic review and meta-analysis[J].Journal of Obstetrics and Gynaecology Research, 2024.DOI:10.21203/rs.3.rs-5033259/v1.
[5] Yin L H, Zhou Y N, Ding N N, et al.Recent advances in metabolic engineering for the biosynthesis of phosphoenol pyruvate-oxaloacetate-pyruvate-derived amino acids[J].Molecules, 2024, 29(12):2893.
[6] Li H H, Zhang J M, Gao J X, et al.Advances in the microbial biosynthesis of L-tryptophan and its derivatives[J].BioDesign Research, 2025, 7(4):100046.
[7] Wan T X, Ding D Q, Chen J Q, et al.Optimizing L-tryptophan production in Escherichia coli through redox balancing and metabolomics analysis[J].Journal of Microbiology and Biotechnology, 2025, 35:e2508025.
[8] Yang S, Zhou S Y, Liang Q F, et al.Engineering Escherichia coli for efficient production of L-tryptophan[J].Applied Biochemistry and Biotechnology, 2025, 197(6):4096-4108.
[9] 叶慧敏, 杜军, 唐玉景, 等.基于常压室温等离子体诱变和高通量筛选选育L-色氨酸高产菌株[J].生物工程学报, 2024, 40(9):3201-3215.Ye H M, Du J, Tang Y J, et al.Breeding of L-tryptophan high-yield strain by ARTP mutagenesis and high-throughput screening[J].Chinese Journal of Biotechnology, 2024, 40(9):3201-3215.
[10] Gao Z H, Wu F L, Zhang Z D, et al.Improvement of L-tryptophan production in Escherichia coli using biosensor-based, high-throughput screening and metabolic engineering[J].Fermentation, 2025, 11(5).DOI:10.3390/fermentation11050267.
[11] Guo L, Ding S, Liu Y D, et al.Enhancing tryptophan production by balancing precursors in Escherichia coli[J].Biotechnology and Bioengineering, 2022, 119(3):983-993.
[12] 吴亚东, 杨艳, 王静, 等.系统代谢工程改造大肠杆菌高产L-色氨酸[J].食品与发酵工业, 2026,52(14):48-56.Wu Y D, Yang Y, Wang J, et al.Systematic metabolic engineering of Escherichia coli for enhanced L-tryptophan production[J].Food and Fermentation Industries, 2026,52(14):48-56.
[13] Ding S, Chen X L, Gao C, et al.Modular engineering of Escherichia coli for high-level production of L-tryptophan][J].Chinese Journal of Biotechnology, 2023, 39(6):2359-2374.
[14] 孟帅帅, 黄钦耿, 吴松刚, 等.丙氨酸转氨酶修饰对大肠杆菌L-色氨酸合成的影响[J].生物技术通报, 2020, 36(1):66-72.Meng S S, Huang Q G, Wu S G, et al.Effects of modification of alanine aminotransferase on synthesis of L-tryptophan in Escherichia coli[J].Biotechnology Bulletin, 2020, 36(1):66-72.
[15] Xiong B, Zhu Y D, Tian D G, et al.Flux redistribution of central carbon metabolism for efficient production of L-tryptophan in Escherichia coli[J].Biotechnology and Bioengineering, 2021, 118(3):1393-1404.
[16] Liu Y, Yasawong M, Yu B.Metabolic engineering of Escherichia coli for biosynthesis of beta-nicotinamide mononucleotide from nicotinamide[J].Microbial Biotechnology, 2021, 14(6):2581-2591.
[17] Tröndle J, Trachtmann N, Sprenger G A, et al.Fed-batch production of L-tryptophan from glycerol using recombinant Escherichia coli[J].Biotechnology and Bioengineering, 2018, 115(12):2881-2892.
[18] Wang J L, Ma W J, Zhou J W, et al.Microbial chassis design and engineering for production of amino acids used in food industry[J].Systems Microbiology and Biomanufacturing, 2023, 3(1):28-48.
[19] Li Y F, Lin Z Q, Huang C, et al.Metabolic engineering of Escherichia coli using CRISPR-Cas9 meditated genome editing[J].Metabolic Engineering, 2015, 31:13-21.
[20] 朱晓雯, 王泽建, 黎亮, 等.大肠杆菌发酵产L-色氨酸培养基及补料优化[J].食品工业科技, 2020, 41(2):146-153.Zhu X W, Wang Z J, Li L, et al.Optimization of medium and feeding process for L-tryptophan production fermented by Escherichia coli[J].Science and Technology of Food Industry, 2020, 41(2):146-153.
[21] Zhao R J, Huang B L, Lu G, et al.A practical method for amino acid analysis by LC-MS using precolumn derivatization with urea[J].International Journal of Molecular Sciences, 2023, 24(8):7332.
[22] Chowdhury N B, Schroeder W L, Monteiro L, et al.MGem:Revisiting bacterial overflow metabolism[J].mBio, 2025, 16(10):e01193-e01125.
[23] Toyoda K, Inui M.The ldhA gene encoding fermentative l-lactate dehydrogenase in Corynebacterium glutamicum is positively regulated by the global regulator GlxR[J].Microorganisms, 2021, 9(3):550.
[24] Shende V V, Bauman K D, Moore B S.The shikimate pathway:Gateway to metabolic diversity[J].Natural Product Reports, 2024, 41(4):604-648.
[25] Li Z, Wang H Y, Ding D Q, et al.Metabolic engineering of Escherichia coli for production of chemicals derived from the shikimate pathway[J].Journal of Industrial Microbiology &Biotechnology, 2020, 47(6-7):525-535.
[26] Wang S W, Liu D L, Bilal M, et al.Uncovering the role of PhzC as DAHP synthase in shikimate pathway of Pseudomonas chlororaphis HT66[J].Biology (Basel), 2022, 11(1):86.
[27] 赵志军, 陈晟, 吴丹, 等.大肠杆菌色氨酸转运系统多基因敲除对色氨酸生产的影响[J].生物工程学报, 2011, 27(12):1765-1772.Zhao Z J, Chen S, Wu D, et al.Effect of mufti-gene knockout of L-tryptophan transport system on L-tryptophan production in Escherichia coli[J].Chinese Journal of Biotechnology, 2011, 27(12):1765-1772.
[28] Roesser J R, Yanofsky C.The effects of leader peptide sequence and length on attenuation control of the trp operon of E.coli[J].Nucleic Acids Research, 1991, 19(4):795-800.
[29] Evguenieva-Hackenberg E.Riboregulation in bacteria:From general principles to novel mechanisms of the trp attenuator and its sRNA and peptide products[J].Wiley Interdisciplinary Reviews:RNA, 2022, 13(3):e1696.