生菜(Lactuca sativa L)学名叶用莴苣,属菊科(Compositae)莴苣属(Lactuca),是一年生或二年生草本作物,起源于欧洲地中海沿岸和西亚一带,经野生种驯化得到[1]。生菜作为全球广泛消费的叶菜类蔬菜,因其富含维生素、矿物质和抗氧化物质而备受青睐[2]。然而,采后生菜代谢活动活跃,贮藏过程中易因呼吸作用、水分流失、酶促褐变及微生物侵染导致黄化、腐烂和营养品质下降,显著缩短货架期[3-4]。近年来,代谢组学技术因其能够全面解析生物体内小分子代谢物的动态变化,逐渐成为研究果蔬采后生理机制的重要手段。GC-MS技术凭借其高灵敏度、高分辨率和广泛覆盖挥发性及半挥发性代谢物的能力,被广泛应用于蔬菜代谢组学研究,为揭示贮藏过程中品质变化的分子基础提供了重要工具[5-6]。
已有研究表明,不同贮藏条件(如温度、湿度及预处理方式)显著影响生菜的生理代谢[7-8]。例如,冰温贮藏(-0.5 ℃)通过抑制呼吸速率、延缓叶绿素降解及提高抗氧化酶(如过氧化氢酶和抗坏血酸过氧化物酶)活性,有效维持生菜的感官品质和营养含量[3];真空预冷结合钙处理生菜可减少水分损失并减缓维生素C的氧化,进一步延长贮藏期[4];等离子活化水喷淋处理后的生菜在贮藏前期可以有效降低其表面菌落总数,进而在贮藏期间较好地维持生菜品质[9]。尽管如此,关于这些条件如何通过调节代谢途径(如黄酮类化合物的合成、酚酸衍生物的积累)来影响生菜品质的机制,仍有待通过代谢组学技术进行更深入的探究。
近年来,基于GC-MS技术的代谢组学研究在众多食品的采后处理领域取得了重要进展[10-12]。例如,燕麦风味物质的鉴定揭示了酯类和萜类代谢物的关键作用[5],而马铃薯加工过程中挥发性成分的变化则关联到氨基酸和糖类代谢途径的调控[13]。值得注意的是,已有学者将结球生菜置于动态气调环境中,通过GC-MS分析其挥发性成分。结果表明,在伤害和非伤害条件下,氯代十八烷、4-丙基甲苯、4-乙基甲苯、1,2,4-三甲基苯、乙酸十一酯、丁酸癸酯、己二酸单乙酯、己酸己酯、二苯乙烯、二烯丙基二硫醚等成分的变化可能与CO2伤害有关[14]。然而,关于贮藏时间对这些代谢途径动态平衡的影响,以及如何进一步调控生菜品质的衰变过程,目前仍需开展更深入的研究。
鉴于此,本研究拟通过基于GC-MS的代谢组学技术,系统分析不同贮藏时间下生菜代谢物的动态变化,结合多元统计分析和KEGG通路富集,揭示关键差异代谢物及其调控网络。该研究的结果将为生菜采后保鲜技术的优化提供理论支持与靶点,例如通过调控关键代谢物(如腐胺)的水平或干预核心代谢通路(如氨基酸代谢、糖代谢)来延缓品质劣变,同时也将为叶菜类蔬菜贮藏代谢调控的分子机制认知增添新的见解,以推动精准贮藏策略的发展。
1 材料与方法
1.1 实验材料与仪器
实验选用美国大速生生菜品种(寿光市山成农业科技有限公司),采用水培法培育。种子经体积分数75%酒精消毒后,以蒸馏水充分冲洗,40 ℃浸种催芽6 h,随后转移至智能培养箱[温度(22±1) ℃、湿度(60±5)%、光周期12 h/d、光照强度6 000 lx]中培养,30 d后取处于成熟期的生菜植株,经蒸馏水冲洗3次,吸干表面水分后于4 ℃冰箱中进行低温贮藏。低温贮藏时间分别为24、48、72 h,设0 h为对照。每个贮藏时间点设3次生物学重复,每次重复取样5株,样品于液氮迅速冷冻后置于-80 ℃保存,用于代谢物提取。
7890A~5975C型GC-MS系统,美国安捷伦科技公司;Reeko-Auto EVA全自动氮吹浓缩仪;睿科集团(厦门)股份有限公司 ;SB-5200DTDN超声波清洗机;宁波新芝生物科技股份有限公司;Centrifuge 5920R冷冻离心机,德国Eppendorf SE公司。
1.2 实验方法
1.2.1 代谢物提取
参照贲蓓蓓等[15]的两步衍生法提取代谢物,包括衍生化反应与纯化步骤。
1.2.2 GC-MS测定
GC条件:HP-5MS毛细管柱(30 m×0.25 mm,0.25 μm);载气为高纯氦气(99.999%),PTV模式进样1 μL;程序升温:60 ℃(1 min)→10 ℃/min升至270 ℃(35 min),总时长58 min,流速1.0 mL/min。
MS条件:EI离子源(70 eV),离子源温度230 ℃,接口温度250 ℃,四极杆温度150 ℃;全扫描模式(m/z 50~500),扫描周期0.5 s,溶剂延迟6 min。
1.3 数据分析
原始质谱数据经MassHunter10.0软件进行特征峰提取,Excel标准化处理后,采用SIMCA-P17.0软件完成多元统计分析。差异代谢物筛选采用正交偏最小二乘判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA)结合单变量方差分析,标准为投影变量重要性(variable importance in projection,VIP)>1.0且P<0.05。KEGG通路富集分析通过MetaboAnalyst 6.0平台完成。
2 结果与分析
2.1 不同贮藏时间生菜小分子代谢物动态变化
成熟期生菜在低温贮藏过程中,其小分子代谢物的组成与含量呈现出明显的时序性变化(表1)。在贮藏24 h后,共鉴定出39种小分子代谢物,其中氨基酸类物质有9种,占总代谢物种类的23.07%;糖类衍生物为8种,占比20.51%;有机酸类为7种,占比17.94%。这3类主要代谢物合计占总数的61.52%,其余38.46%为其他类型的小分子代谢物。这一阶段的代谢物组成反映了低温胁迫24 h成熟期生菜的生理响应特征,氨基酸和糖类衍生物作为重要的渗透调节物质和能量来源,在低温适应中可能发挥关键作用。随着贮藏时间延长至48 h,代谢物种类总数仍为39种,但其构成比例发生了一定变化。氨基酸类物质增加至10种,占比上升至25.64%;糖类衍生物减少至7种,占比相应降至17.94%;有机酸类物质维持在7种,占比17.94%;其他代谢物比例保持不变,仍为38.46%。这一变化趋势表明,随着低温胁迫时间的延长,成熟期生菜的氮代谢活动可能增强,氨基酸的积累有助于维持细胞在低温环境下的生理平衡。当贮藏时间进一步延长至72 h,代谢物组成出现更为显著的变化,种类总数增至40种。其中,糖类衍生物与氨基酸类物质均占21.95%,各有9种;有机酸类物质增加至8种,占比提升至20%;其他代谢物比例下降至34.14%,共14种。这一阶段的代谢特征表明,72 h低温贮藏促使成熟期生菜的代谢网络发生重构,有机酸类物质的显著增加可能反映了能量代谢途径的调整,而糖类与氨基酸比例的重新平衡则体现了植物对持续低温环境的适应机制。从整体变化趋势来看,随着低温贮藏时间的延长,成熟期生菜的小分子代谢物组成呈现出明显的动态调整特征。氨基酸类物质在贮藏中期达到峰值后略有回落,糖类衍生物呈现先降后稳的变化趋势,有机酸类物质则持续积累,在贮藏后期占比显著提高。这些变化规律揭示了成熟期生菜在低温胁迫下代谢重编程的时序性特征,为理解采后生菜低温适应机制提供了重要的代谢组学依据。
表1 不同贮藏时间下筛选的代谢物
Table 1 Metabolites screened at different storage times
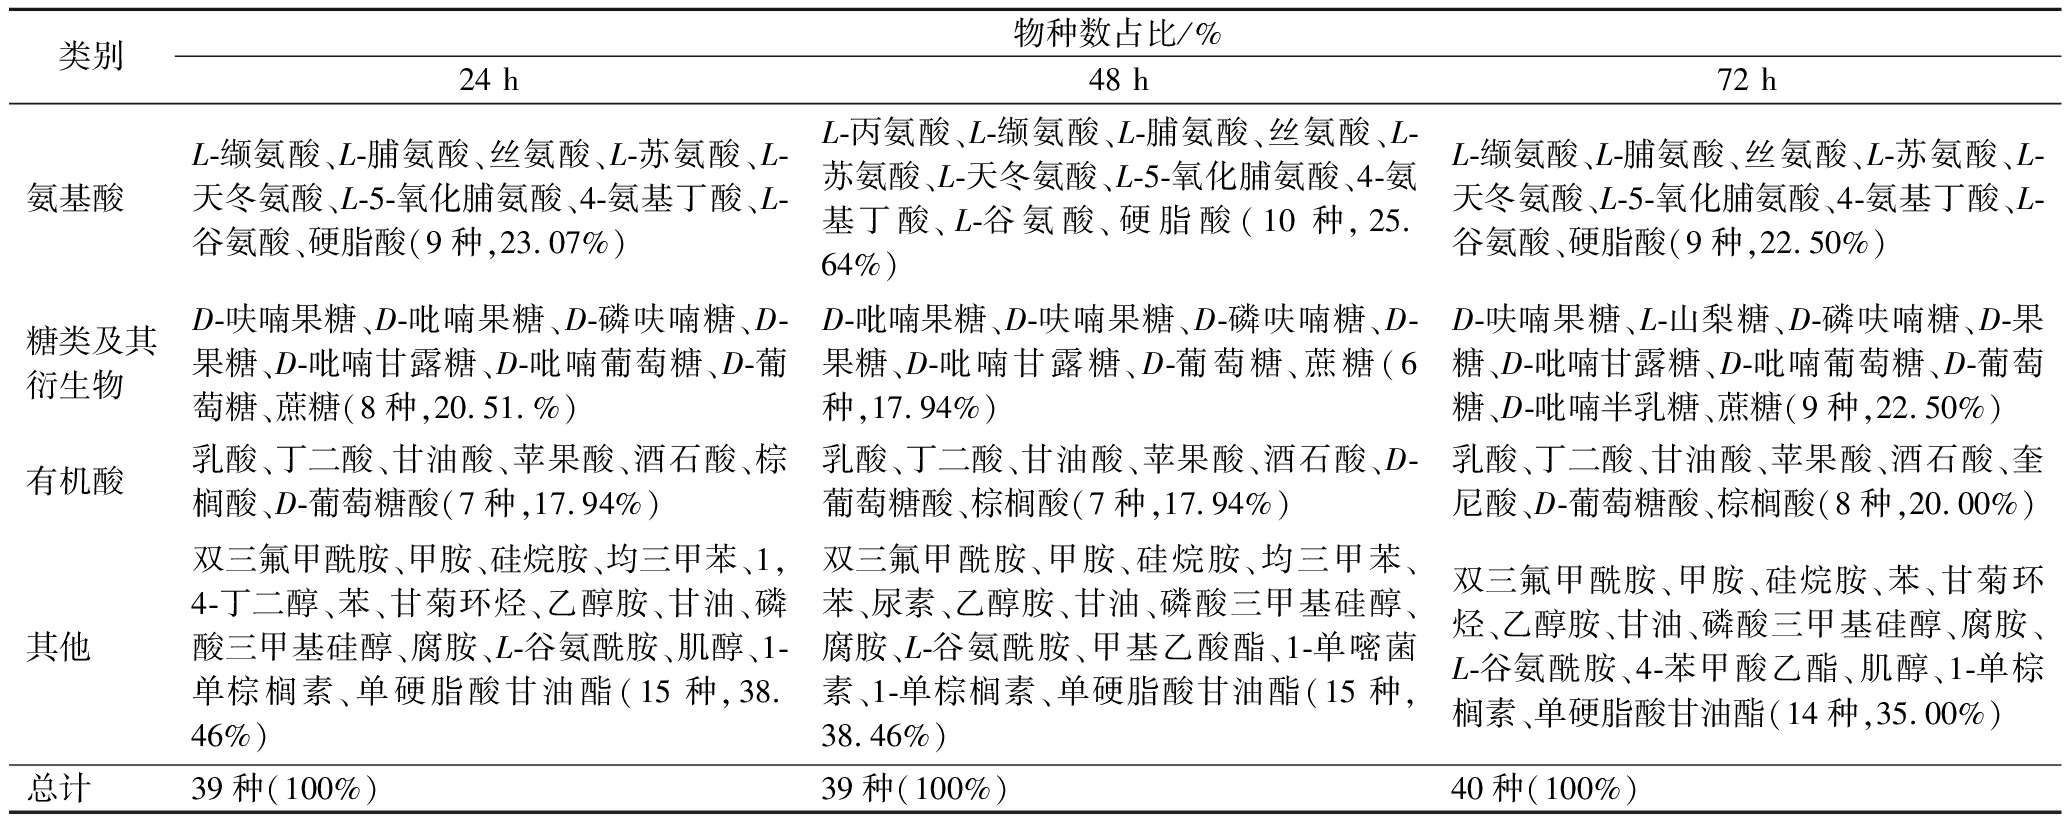
类别物种数占比/%24 h48 h72 h氨基酸L-缬氨酸、L-脯氨酸、丝氨酸、L-苏氨酸、L-天冬氨酸、L-5-氧化脯氨酸、4-氨基丁酸、L-谷氨酸、硬脂酸(9种,23.07%)L-丙氨酸、L-缬氨酸、L-脯氨酸、丝氨酸、L-苏氨酸、L-天冬氨酸、L-5-氧化脯氨酸、4-氨基丁酸、L-谷氨酸、硬脂酸(10种,25.64%)L-缬氨酸、L-脯氨酸、丝氨酸、L-苏氨酸、L-天冬氨酸、L-5-氧化脯氨酸、4-氨基丁酸、L-谷氨酸、硬脂酸(9种,22.50%)糖类及其衍生物D-呋喃果糖、D-吡喃果糖、D-磷呋喃糖、D-果糖、D-吡喃甘露糖、D-吡喃葡萄糖、D-葡萄糖、蔗糖(8种,20.51.%)D-吡喃果糖、D-呋喃果糖、D-磷呋喃糖、D-果糖、D-吡喃甘露糖、D-葡萄糖、蔗糖(6种,17.94%)D-呋喃果糖、L-山梨糖、D-磷呋喃糖、D-果糖、D-吡喃甘露糖、D-吡喃葡萄糖、D-葡萄糖、D-吡喃半乳糖、蔗糖(9种,22.50%)有机酸乳酸、丁二酸、甘油酸、苹果酸、酒石酸、棕榈酸、D-葡萄糖酸(7种,17.94%)乳酸、丁二酸、甘油酸、苹果酸、酒石酸、D-葡萄糖酸、棕榈酸(7种,17.94%)乳酸、丁二酸、甘油酸、苹果酸、酒石酸、奎尼酸、D-葡萄糖酸、棕榈酸(8种,20.00%)其他双三氟甲酰胺、甲胺、硅烷胺、均三甲苯、1,4-丁二醇、苯、甘菊环烃、乙醇胺、甘油、磷酸三甲基硅醇、腐胺、L-谷氨酰胺、肌醇、1-单棕榈素、单硬脂酸甘油酯(15种,38.46%)双三氟甲酰胺、甲胺、硅烷胺、均三甲苯、苯、尿素、乙醇胺、甘油、磷酸三甲基硅醇、腐胺、L-谷氨酰胺、甲基乙酸酯、1-单嘧菌素、1-单棕榈素、单硬脂酸甘油酯(15种,38.46%)双三氟甲酰胺、甲胺、硅烷胺、苯、甘菊环烃、乙醇胺、甘油、磷酸三甲基硅醇、腐胺、L-谷氨酰胺、4-苯甲酸乙酯、肌醇、1-单棕榈素、单硬脂酸甘油酯(14种,35.00%)总计39种(100%)39种(100%)40种(100%)
2.2 不同贮藏时间下生菜小分子代谢物主成分分析
本研究采用SIMCA-P17.0软件对成熟期生菜在24、48及72 h低温贮藏条件下的代谢组学数据集进行了深入分析(图1)。分析结果显示,前2个主成分能够有效捕捉样本间的代谢差异特征,其中第一主成分的贡献率达到44.8%,可有效区分0 h与48 h贮藏组和24 h与72 h贮藏组样本;第二主成分的贡献率为28.2%,则使48 h与72 h贮藏组与0 h和24 h贮藏组样本产生明显分离。第一主成分与第二主成分的累计贡献率为73.0%,虽未达到80%,但在本研究中已能有效捕捉样本间的主要变异趋势。各处理组样本在主成分分析得分图(Score plot,展示样本在主成分空间中的投影位置)上的空间分布呈现出清晰的聚类特征,相同贮藏时间的样本点聚集紧密,显示出良好的组内重复性;而不同贮藏时间的样本则分布在相对独立的区域,彼此分离显著。这种分布模式充分证明了低温贮藏时间对成熟期生菜代谢物组成产生了系统性影响,各处理组间存在本质性的代谢差异。特别值得注意的是,样本点在主成分分析空间中的分布轨迹呈现出连续的时间梯度变化,从0~72 h的样本依次排列,反映出代谢变化的动态过程具有明显的时序性特征。累计贡献率达到73.0%的前2个主成分不仅充分捕捉了主要的代谢变异信息,而且清晰地揭示了不同贮藏时间点样本之间的代谢差异模式。这一分析结果为后续开展差异代谢物的筛选、代谢通路的解析以及生物标志物的发掘提供了可靠的统计学基础,同时也验证了代谢组学方法在研究生菜采后生理变化中的有效性和敏感性。
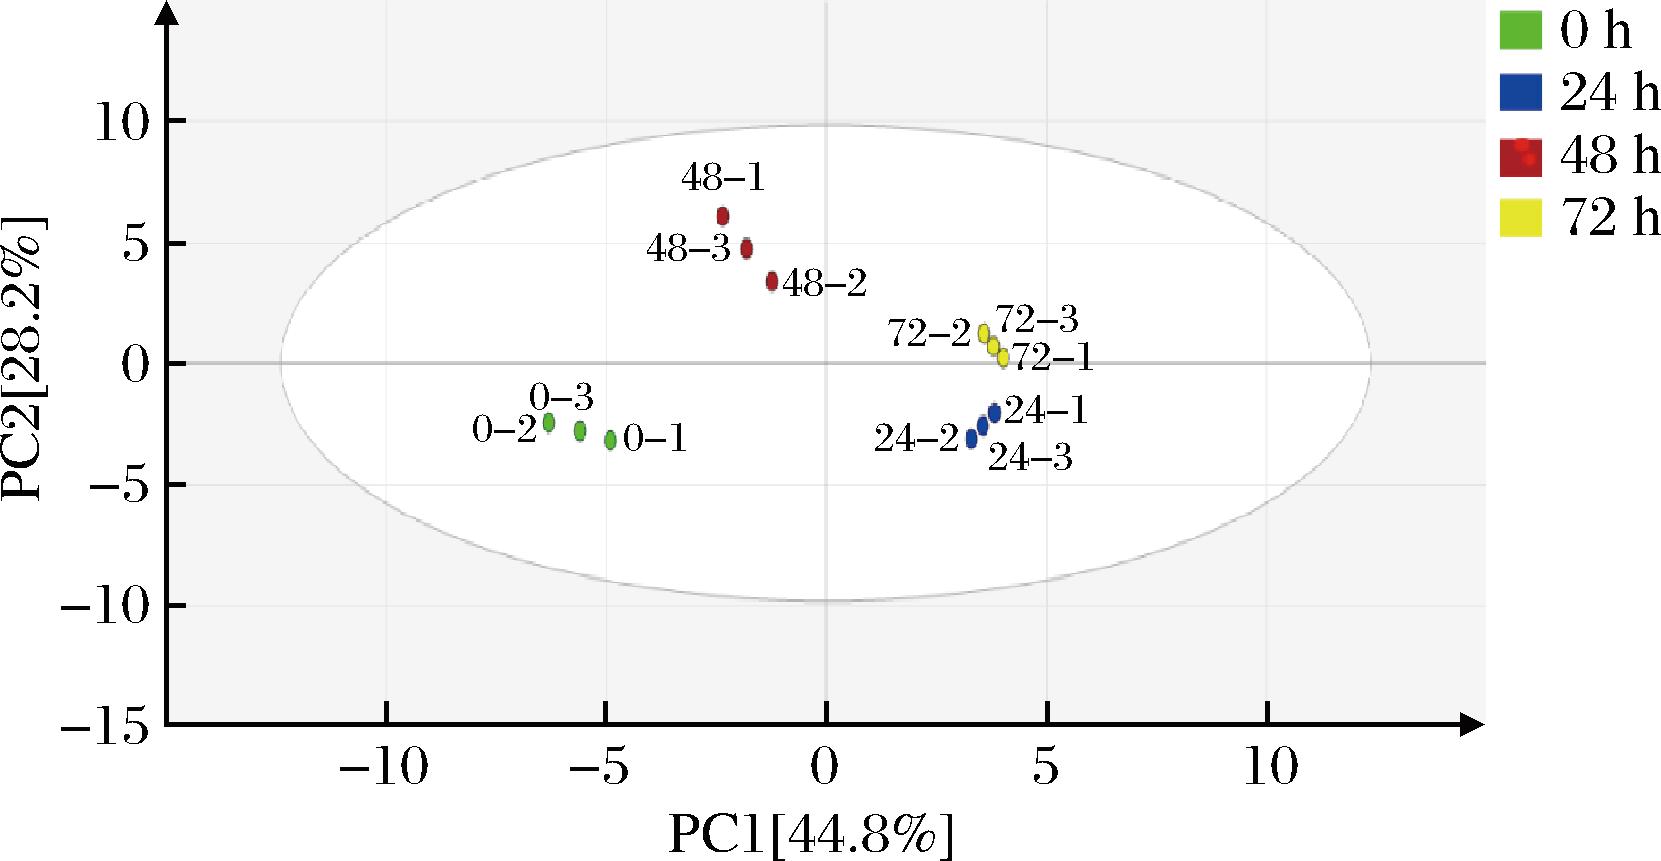
图1 不同贮藏时间下主成分分析得分图
Fig.1 Principal component analysis scoring map at different storage durations
2.3 不同贮藏时间下生菜的差异代谢物分析
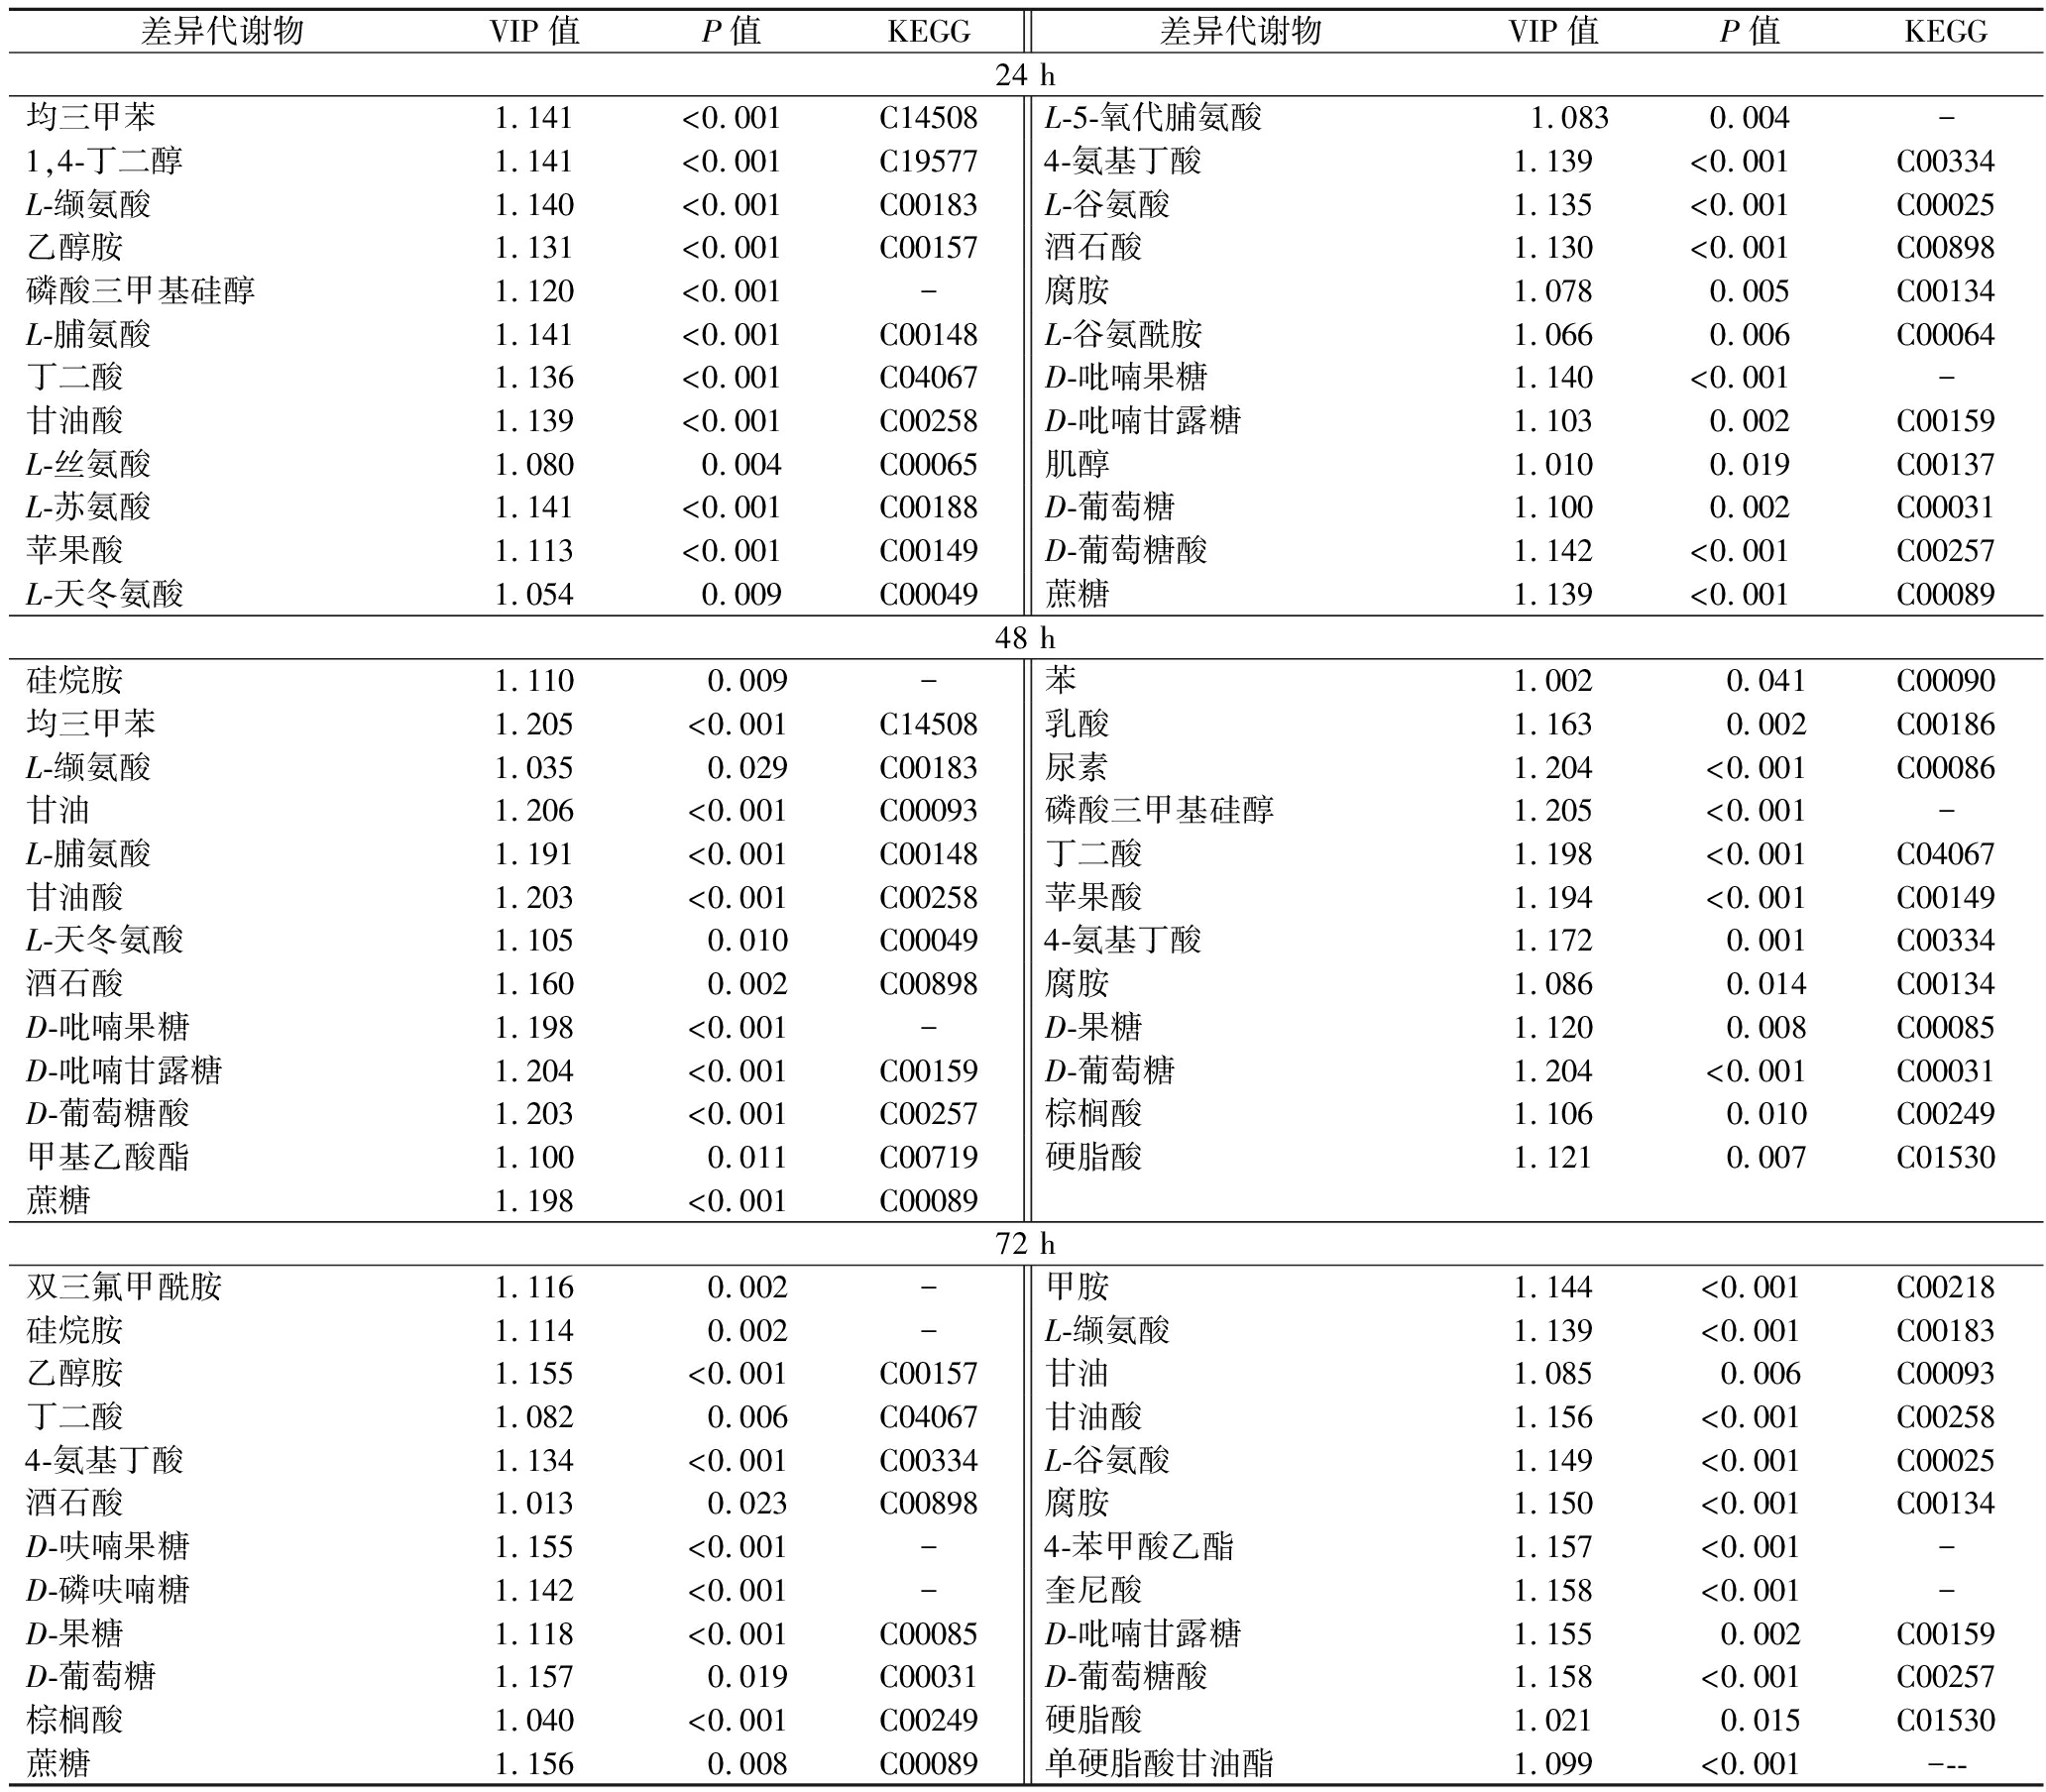
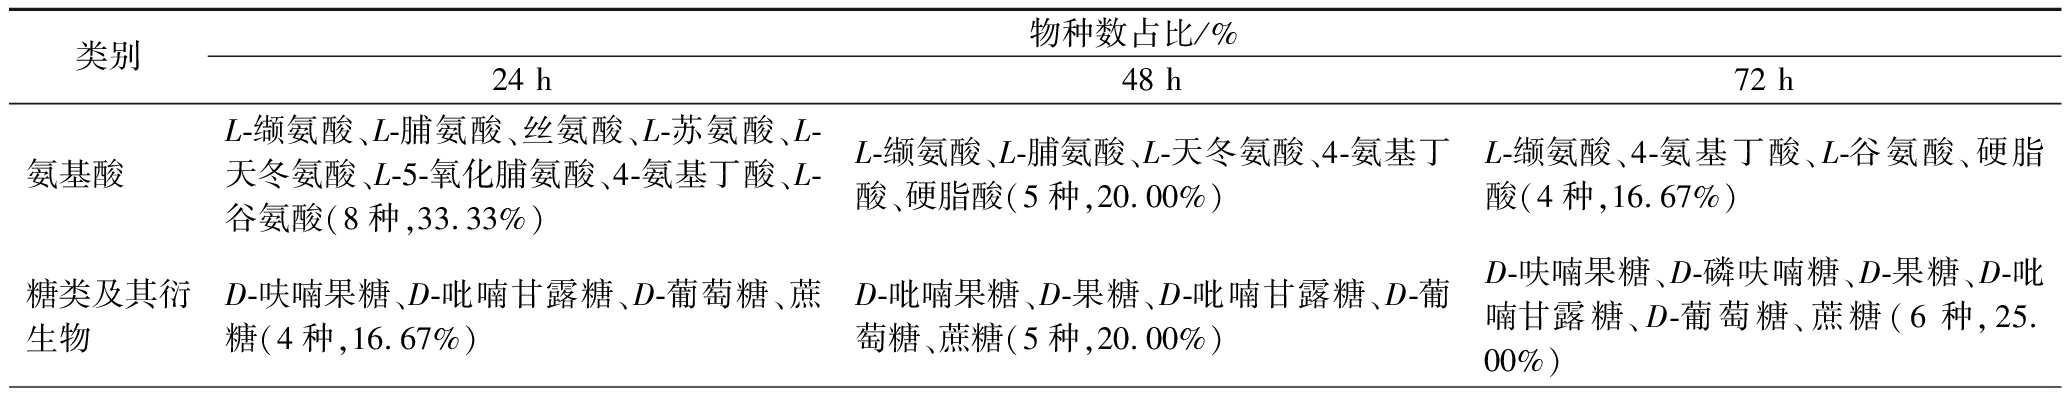
采用OPLS-DA结合单因量方差分析的统计策略,对成熟期生菜在低温贮藏过程中的代谢物进行系统筛选。设定VIP值(用于衡量代谢物在OPLS-DA模型中对组间区分贡献的指标)>1且P<0.05的双重标准,确保所筛选差异代谢物既具有组间区分能力又具备统计显著性。结果表明(表2、表3),3个贮藏时间点均鉴定出丰富的差异代谢物,其中24 h组筛选获得24种,48 h组25种,72 h组24种。从代谢物类别构成来看,24 h处理组的差异代谢物可归为6大类:氨基酸类(包括L-缬氨酸、L-脯氨酸等)占比最高,达33.33%;有机酸类(如丁二酸、苹果酸等)占20.83%;糖类(包括D-葡萄糖、蔗糖等)占16.67%;此外还包含胺类(12.5%)、醇类(12.5%)及其他类别(4.16%)。随着贮藏时间延长至48 h,代谢物分类体系更加细化,可分为7个类别。其中有机酸类占比显著提升至28%,成为最主要的差异代谢物类别;氨基酸类和糖类各占20%;同时还鉴定出酯类(8%)、胺类(4%)等组分。至72 h贮藏阶段,代谢物构成呈现新的特征格局,形成有机酸与糖类双主导模式,二者各占25%;胺类物质比例显著上升至20.8%;氨基酸类占比调整为16.67%;酯类与其他类别各占8.34%。这种代谢物类别构成的动态变化,也清晰地反映了成熟期生菜在低温胁迫下代谢网络的时序性重构过程。
表2 不同贮藏时间下筛选的差异代谢物
Table 2 Differential metabolites selected at different storage times
差异代谢物VIP值P值KEGG差异代谢物VIP值P值KEGG24 h均三甲苯1.141<0.001C14508L-5-氧代脯氨酸 1.0830.004-1,4-丁二醇1.141<0.001C195774-氨基丁酸1.139<0.001C00334L-缬氨酸1.140<0.001C00183L-谷氨酸1.135<0.001C00025乙醇胺1.131<0.001C00157酒石酸1.130 <0.001C00898磷酸三甲基硅醇1.120<0.001-腐胺1.0780.005C00134L-脯氨酸1.141<0.001C00148L-谷氨酰胺1.0660.006C00064丁二酸1.136<0.001C04067D-吡喃果糖1.140<0.001-甘油酸1.139<0.001C00258D-吡喃甘露糖1.1030.002C00159L-丝氨酸1.0800.004C00065肌醇1.0100.019C00137L-苏氨酸1.141<0.001C00188D-葡萄糖1.1000.002C00031苹果酸1.113<0.001C00149D-葡萄糖酸1.142<0.001C00257L-天冬氨酸1.0540.009C00049蔗糖1.139<0.001C0008948 h硅烷胺1.110 0.009-苯1.002 0.041C00090均三甲苯1.205<0.001C14508乳酸1.1630.002C00186L-缬氨酸1.0350.029C00183尿素1.204<0.001C00086甘油1.206<0.001C00093磷酸三甲基硅醇1.205<0.001-L-脯氨酸1.191<0.001C00148丁二酸1.198<0.001C04067甘油酸1.203<0.001C00258苹果酸1.194<0.001C00149L-天冬氨酸1.1050.010C000494-氨基丁酸1.1720.001C00334酒石酸1.1600.002C00898腐胺1.0860.014C00134D-吡喃果糖1.198<0.001-D-果糖1.1200.008C00085D-吡喃甘露糖1.204<0.001C00159D-葡萄糖1.204<0.001C00031D-葡萄糖酸1.203<0.001C00257棕榈酸1.1060.010C00249甲基乙酸酯1.100 0.011C00719硬脂酸1.1210.007C01530蔗糖1.198<0.001C0008972 h双三氟甲酰胺1.116 0.002-甲胺1.144<0.001C00218硅烷胺1.1140.002-L-缬氨酸1.139<0.001C00183乙醇胺1.155<0.001C00157甘油1.0850.006C00093丁二酸1.0820.006C04067甘油酸1.156<0.001C002584-氨基丁酸1.134<0.001 C00334L-谷氨酸1.149<0.001C00025酒石酸1.0130.023C00898腐胺1.150<0.001C00134D-呋喃果糖1.155<0.001-4-苯甲酸乙酯1.157<0.001-D-磷呋喃糖1.142<0.001-奎尼酸1.158<0.001-D-果糖1.118<0.001C00085D-吡喃甘露糖1.1550.002C00159D-葡萄糖1.1570.019C00031D-葡萄糖酸1.158<0.001C00257棕榈酸1.040<0.001C00249硬脂酸1.0210.015C01530蔗糖1.1560.008C00089单硬脂酸甘油酯1.099<0.001---
注:-表示在KEGG数据库中没有对应的通路信息。
表3 不同贮藏时间下筛选的差异代谢物分类
Table 3 Categories of differentially expressed metabolites selected at different storage times
类别物种数占比/%24 h48 h72 h氨基酸L-缬氨酸、L-脯氨酸、丝氨酸、L-苏氨酸、L-天冬氨酸、L-5-氧化脯氨酸、4-氨基丁酸、L-谷氨酸(8种,33.33%)L-缬氨酸、L-脯氨酸、L-天冬氨酸、4-氨基丁酸、硬脂酸(5种,20.00%)L-缬氨酸、4-氨基丁酸、L-谷氨酸、硬脂酸(4种,16.67%)糖类及其衍生物D-呋喃果糖、D-吡喃甘露糖、D-葡萄糖、蔗糖(4种,16.67%)D-吡喃果糖、D-果糖、D-吡喃甘露糖、D-葡萄糖、蔗糖(5种,20.00%)D-呋喃果糖、D-磷呋喃糖、D-果糖、D-吡喃甘露糖、D-葡萄糖、蔗糖(6种,25.00%)
续表3
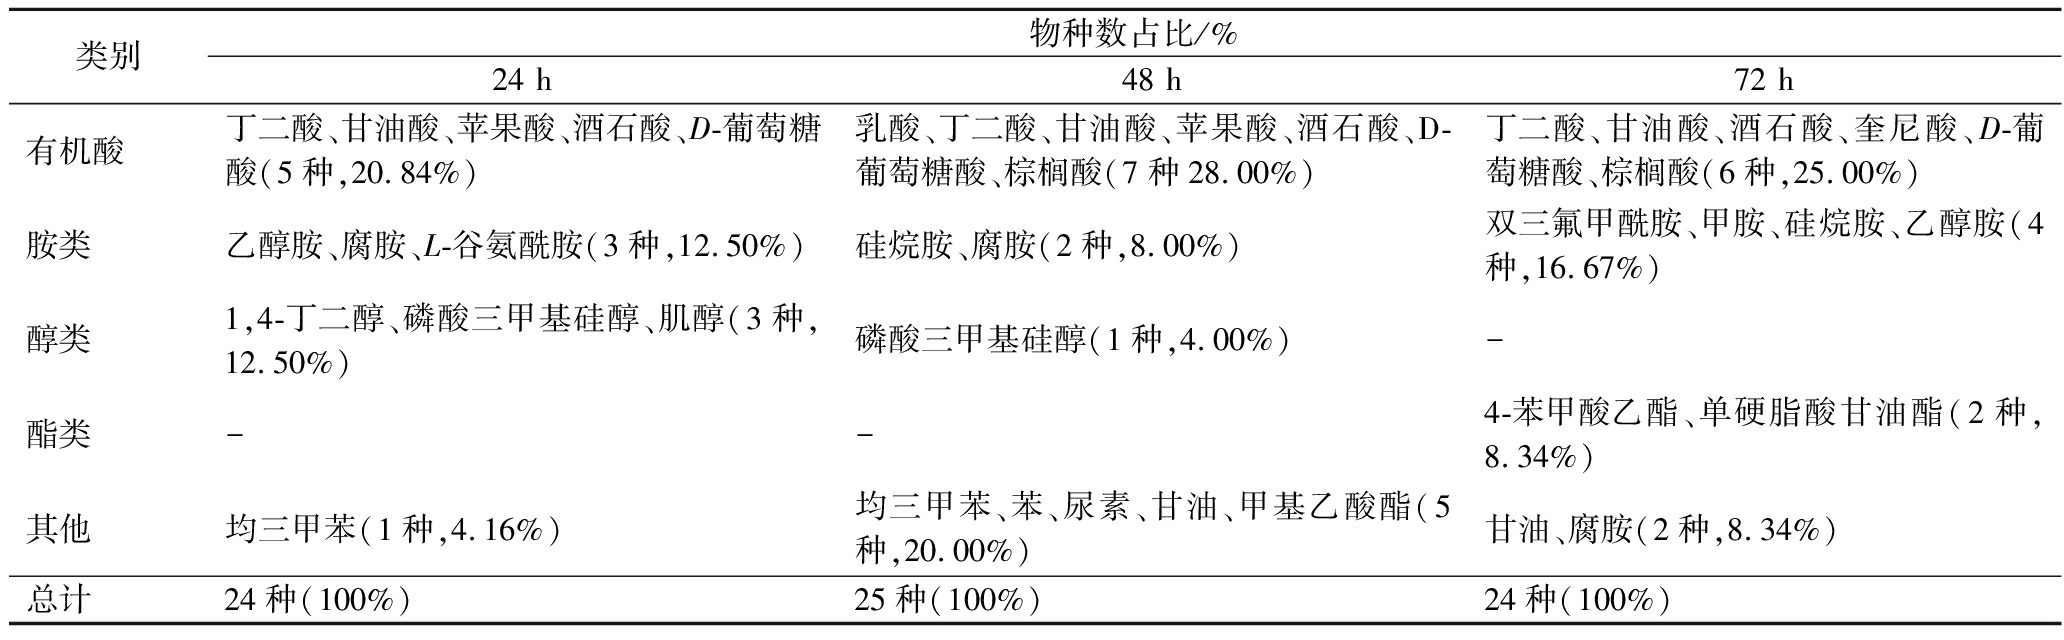
类别物种数占比/%24 h48 h72 h有机酸丁二酸、甘油酸、苹果酸、酒石酸、D-葡萄糖酸(5种,20.84%)乳酸、丁二酸、甘油酸、苹果酸、酒石酸、D-葡萄糖酸、棕榈酸(7种28.00%)丁二酸、甘油酸、酒石酸、奎尼酸、D-葡萄糖酸、棕榈酸(6种,25.00%)胺类乙醇胺、腐胺、L-谷氨酰胺(3种,12.50%)硅烷胺、腐胺(2种,8.00%)双三氟甲酰胺、甲胺、硅烷胺、乙醇胺(4种,16.67%)醇类1,4-丁二醇、磷酸三甲基硅醇、肌醇(3种,12.50%)磷酸三甲基硅醇(1种,4.00%)-酯类--4-苯甲酸乙酯、单硬脂酸甘油酯(2种,8.34%)其他均三甲苯(1种,4.16%)均三甲苯、苯、尿素、甘油、甲基乙酸酯(5种,20.00%)甘油、腐胺(2种,8.34%)总计24种(100%)25种(100%)24种(100%)
注:-表示在该类别下没有筛选出任何符合标准的差异代谢物。
2.4 不同贮藏时间下生菜差异代谢物聚类分析
为系统验证前期筛选所得差异代谢物的代表性及其动态变化规律,本研究从代谢产物与贮藏时间2个维度进行了层次聚类分析,并构建了聚类热图(图2)。热图横轴展示了不同贮藏时长(0~72 h)的样本,纵轴则系统排列了所有筛选得到的差异代谢物。图中颜色梯度直观反映了各代谢物的相对含量变化:红色区域表征物质在相应贮藏阶段显著富集,蓝色区域则显示含量明显降低。在贮藏24 h阶段,热图显示双三氟乙酰胺、甲胺等7种代谢物相较于对照组呈现显著积累特征。这些早期响应的代谢物主要涉及氮代谢和能量代谢途径,其快速积累反映出成熟期生菜在低温胁迫初期已启动特异性防御机制,代谢物组成发生显著重编程。这一阶段的代谢变化可能是植物对低温环境的初始应激反应,为后续更复杂的代谢调控奠定了基础。当贮藏时间延长至48 h,代谢谱系展现出更为丰富的多样性。热图分析表明,除已发现的脂类代谢物持续积累外,氨基酸类(如L-脯氨酸、L-缬氨酸)、有机酸类(如苹果酸、丁二酸)及糖类(如D-葡萄糖、蔗糖)等4大类共计16种物质均呈现明显累积趋势。这种多类别代谢物的同步变化证实此阶段存在更复杂的代谢调控网络,不同代谢途径之间可能形成了协同互作的响应机制,共同维持细胞在持续低温环境中的生理稳态。在贮藏72 h的末期阶段,代谢特征呈现出显著的特异性转变。热图显示,除部分持续性累积物质外,硅烷胺、尿素及5种氨基酸类物质表现出显著富集特征。这些晚期特异性积累的代谢物构成了独特的代谢指纹图谱,表明随着贮藏时间的延长,成熟期生菜已建立起一套适应长期低温胁迫的特异性代谢响应模式。这一代谢特征的时序性变化,不仅揭示了植物对低温胁迫的动态适应过程,也为深入研究采后贮藏品质变化的代谢机制提供了关键信息。
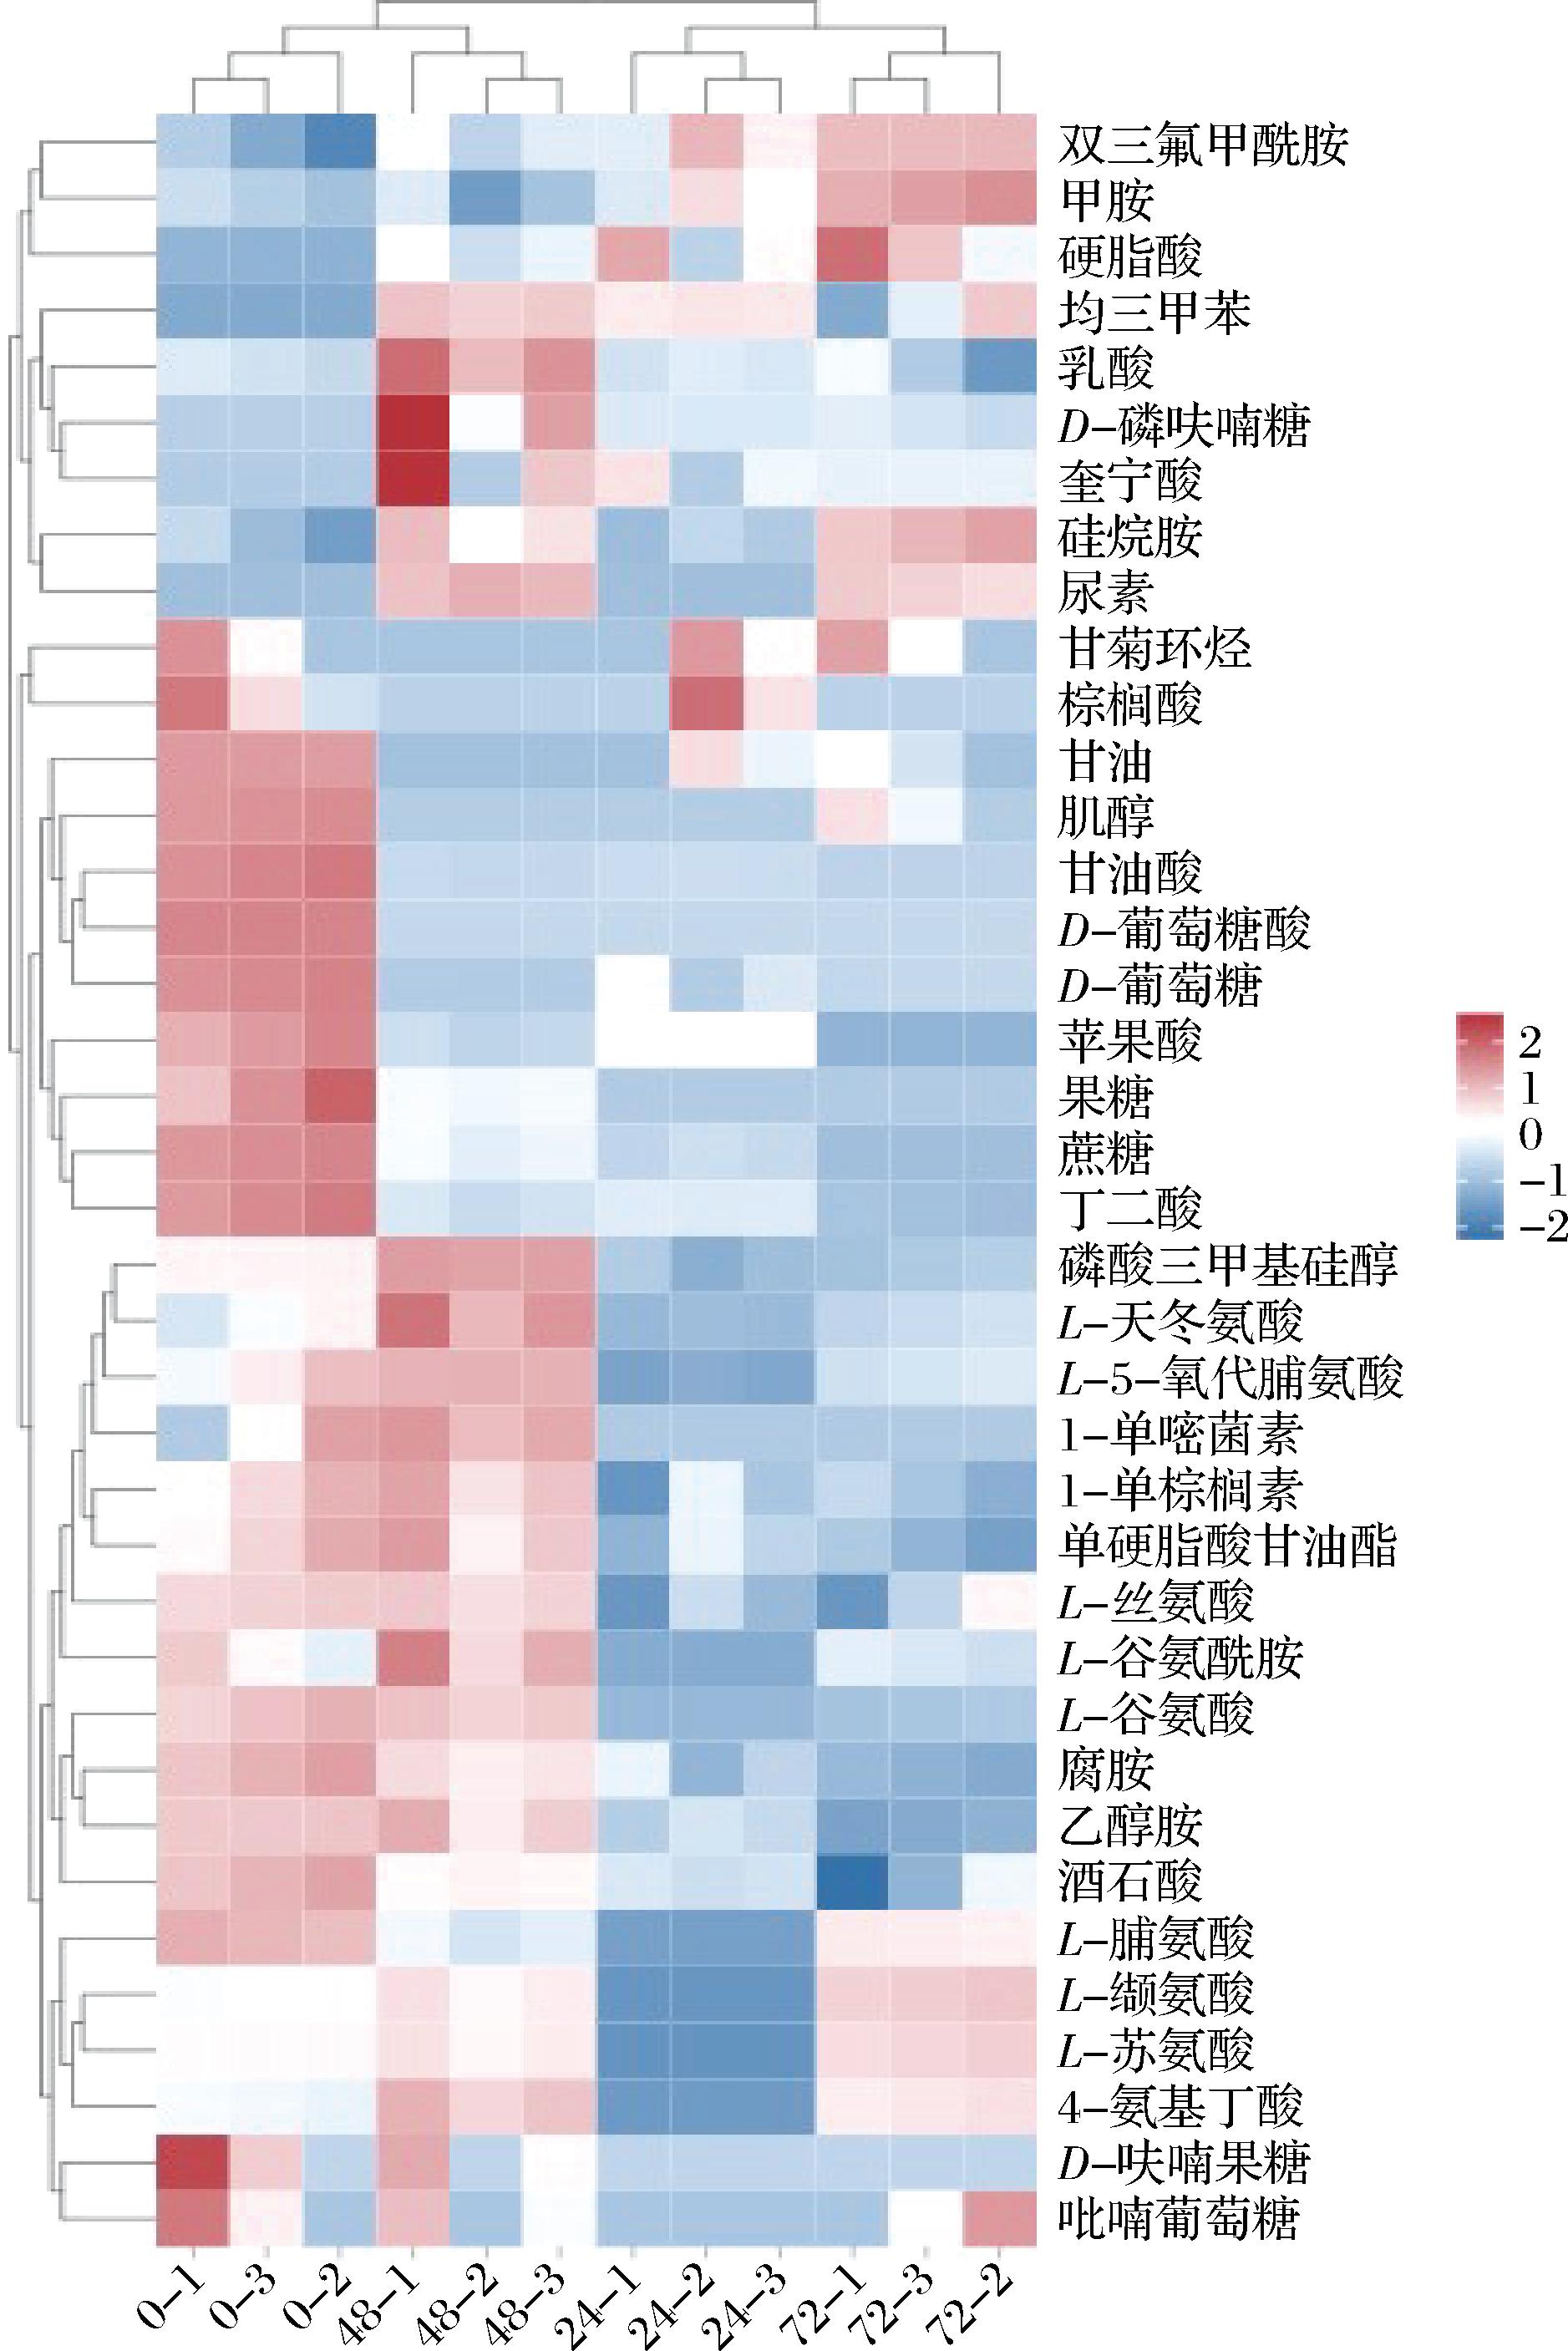
图2 不同贮藏时间下生菜差异代谢物聚类分析
Fig.2 Cluster analysis of differential metabolites in lettuce at different storage times
2.5 生菜贮藏时间代谢通路的时序演变特征
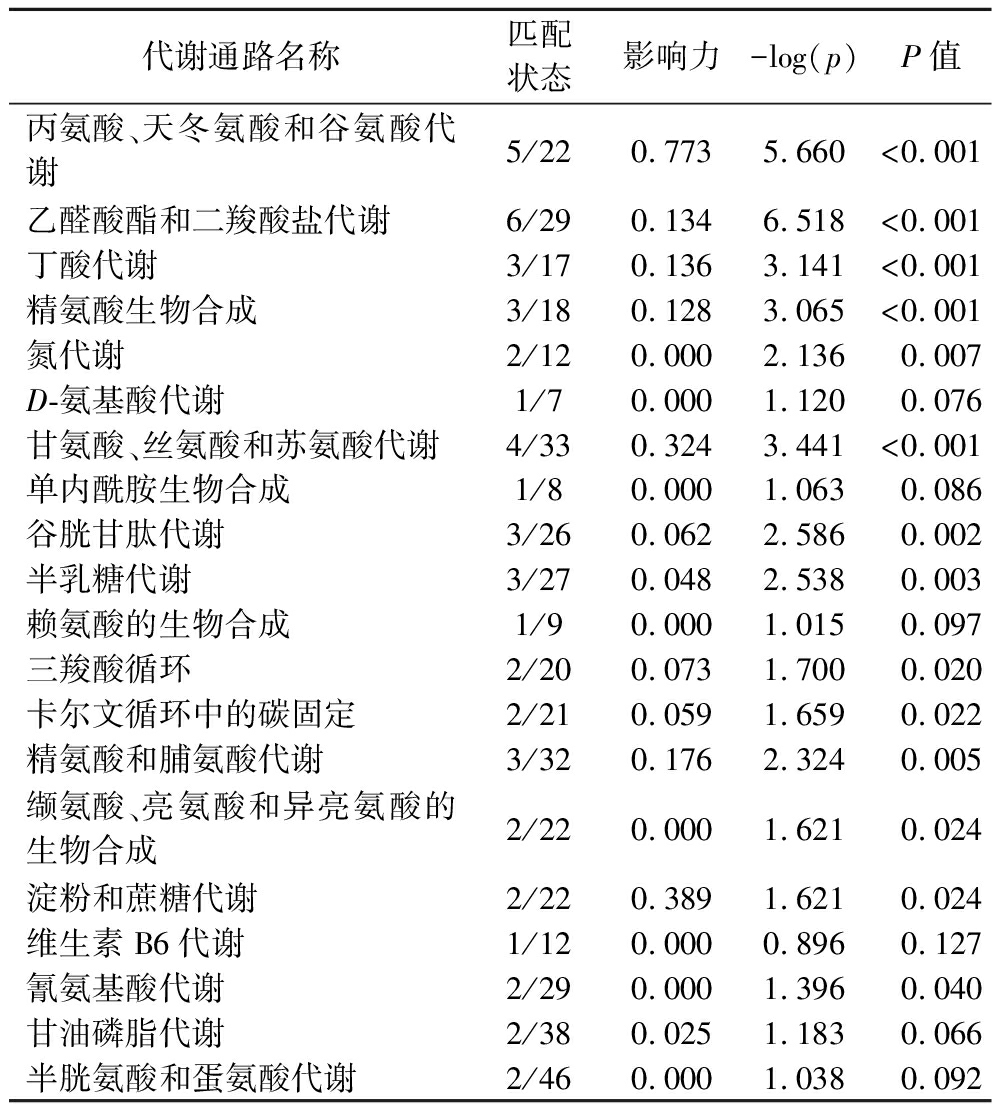
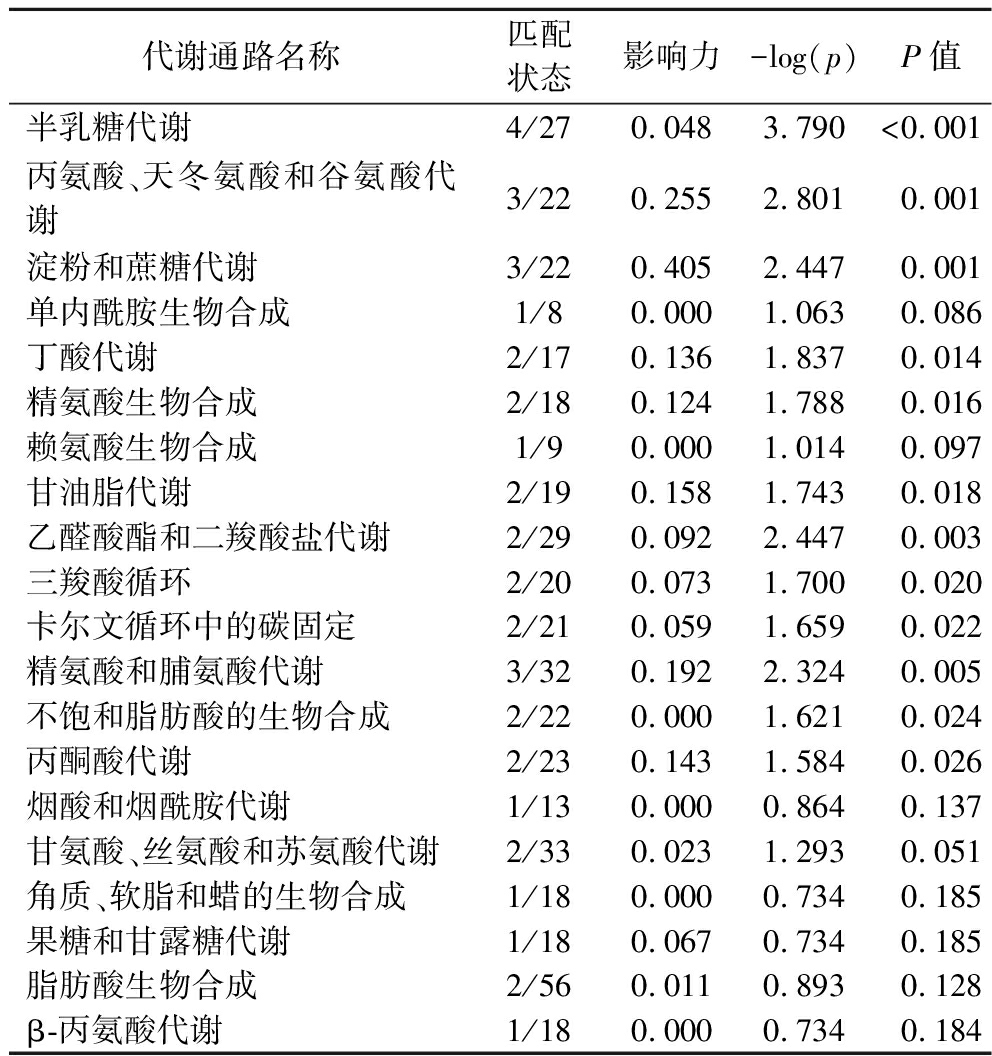
基于MetaboAnalyst 6.0与KEGG数据库的整合分析表明,成熟期生菜在低温贮藏过程中的代谢网络呈现明显的动态重构特性(图3)。在贮藏24 h阶段,从20条富集通路中筛选出14条显著通路(筛选标准:P<0.05或影响力>0.2),这些通路共同构成了早期低温应答的代谢基础(表4)。其中,丙氨酸、天冬氨酸和谷氨酸代谢(alanine, aspartate and glutamate metabolism,AAAG)轴成为此阶段的核心枢纽,涉及13种关键标志物,包括L-缬氨酸等氨基酸类物质及D-葡萄糖等糖类化合物,反映出植物在低温胁迫初期通过调整氨基酸和能量代谢来维持细胞稳态的适应策略。当贮藏时间延长至48 h,代谢重心显著向碳代谢方向偏移(表5)。淀粉与蔗糖代谢途径取代AAAG轴成为新的代谢枢纽,在12条关键通路中,糖代谢相关通路占比提升至58.3%,D-果糖等新型糖代谢物开始显现并积累。这一转变表明成熟期生菜为应对持续的低温环境,正在调整其能量供应策略,通过加强碳水化合物代谢来满足长期的生理需求。至72 h贮藏阶段,代谢体系形成9条精炼通路,AAAG代谢重新占据主导地位,甘油等7种物质构成了跨期稳定的核心代谢模块(表6)。特别值得注意的是,丁酸代谢、乙醛酸酯-二羧酸循环及精氨酸/脯氨酸代谢这3个关键通路构成了贯穿整个贮藏阶段的“稳态三角”,为成熟期生菜提供了持续的代谢支撑。与此同时,半乳糖代谢与甘油脂代谢呈现出此消彼长的动态平衡关系,反映出不同代谢途径之间的协同调控机制。这种从AAAG代谢到糖代谢,再回归AAAG代谢的周期性代谢轴心更替现象,清晰地揭示了成熟期生菜适应贮藏胁迫的代谢策略。这种策略既包含了应对短期胁迫的快速响应机制,也体现了适应长期胁迫的稳态维持能力,展现出植物代谢网络的高度可塑性和适应性。代谢通路的这种动态重构不仅保障了细胞在低温环境下的生存需求,也可能直接影响采后生菜的品质保持和贮藏寿命。

a-24 h处理下差异代谢气泡图;b-48 h处理下差异代谢气泡图;c-72 h处理下差异代谢气泡图;d-24 h处理下主要代谢路径;e-48 h处理下主要代谢路径;f-72 h处理下主要代谢路径
图3 不同贮藏时间处理下差异代谢气泡图及主要代谢路径
Fig.3 Differential metabolic bubble diagram and key metabolic pathways under different storage duration treatments
表4 24 h贮藏时间下成熟期生菜中代谢路径富集结果
Table 4 Enrichment results of metabolic pathways in mature lettuce seedlings after 24 h storage
代谢通路名称匹配状态影响力-log(p)P值丙氨酸、天冬氨酸和谷氨酸代谢5/220.7735.660<0.001乙醛酸酯和二羧酸盐代谢6/290.1346.518<0.001丁酸代谢3/170.1363.141<0.001精氨酸生物合成3/180.1283.065<0.001氮代谢2/120.0002.1360.007D-氨基酸代谢1/70.0001.1200.076甘氨酸、丝氨酸和苏氨酸代谢4/330.3243.441<0.001单内酰胺生物合成1/80.0001.0630.086谷胱甘肽代谢3/260.0622.5860.002半乳糖代谢3/270.0482.5380.003赖氨酸的生物合成1/90.0001.0150.097三羧酸循环2/200.0731.7000.020卡尔文循环中的碳固定2/210.0591.6590.022精氨酸和脯氨酸代谢3/320.1762.3240.005缬氨酸、亮氨酸和异亮氨酸的生物合成2/220.0001.6210.024淀粉和蔗糖代谢2/220.3891.6210.024维生素B6代谢1/120.0000.8960.127氰氨基酸代谢2/290.0001.3960.040甘油磷脂代谢2/380.0251.1830.066半胱氨酸和蛋氨酸代谢2/460.0001.0380.092
表5 48 h贮藏时间下成熟期生菜中代谢路径富集结果
Table 5 Enrichment results of metabolic pathways in mature lettuce seedlings after 48 h storage
代谢通路名称匹配状态影响力-log(p)P值半乳糖代谢4/270.0483.790<0.001丙氨酸、天冬氨酸和谷氨酸代谢3/220.2552.8010.001淀粉和蔗糖代谢3/220.4052.4470.001单内酰胺生物合成1/80.0001.0630.086丁酸代谢2/170.1361.8370.014精氨酸生物合成2/180.1241.7880.016赖氨酸生物合成1/90.0001.0140.097甘油脂代谢2/190.1581.7430.018乙醛酸酯和二羧酸盐代谢2/290.0922.4470.003三羧酸循环2/200.0731.7000.020卡尔文循环中的碳固定2/210.0591.6590.022精氨酸和脯氨酸代谢3/320.1922.3240.005不饱和脂肪酸的生物合成2/220.0001.6210.024丙酮酸代谢2/230.1431.5840.026烟酸和烟酰胺代谢1/130.0000.8640.137甘氨酸、丝氨酸和苏氨酸代谢2/330.0231.2930.051角质、软脂和蜡的生物合成1/180.0000.7340.185果糖和甘露糖代谢1/180.0670.7340.185脂肪酸生物合成2/560.0110.8930.128β-丙氨酸代谢1/180.0000.7340.184
表6 72 h贮藏时间下成熟期生菜中代谢路径富集结果
Table 6 Enrichment results of metabolic pathways in mature lettuce seedlings after 72 h storage
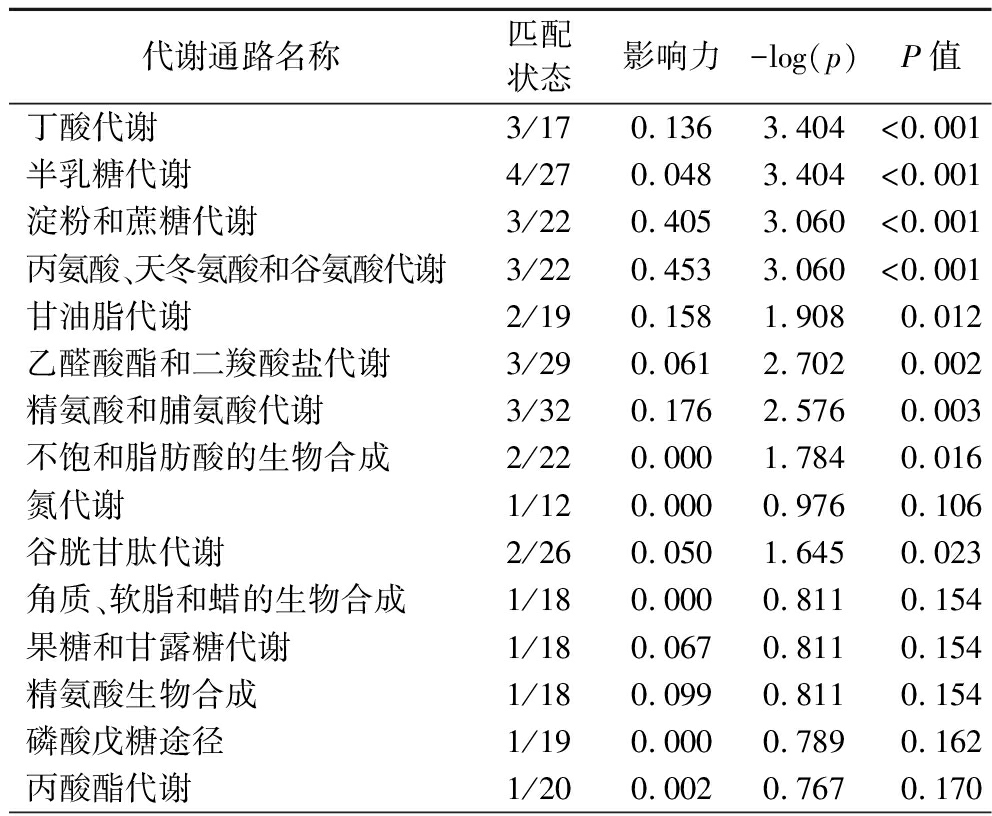
代谢通路名称匹配状态影响力-log(p)P值丁酸代谢3/170.1363.404<0.001半乳糖代谢4/270.0483.404<0.001淀粉和蔗糖代谢3/220.4053.060<0.001丙氨酸、天冬氨酸和谷氨酸代谢3/220.4533.060<0.001甘油脂代谢2/190.1581.9080.012乙醛酸酯和二羧酸盐代谢3/290.0612.7020.002精氨酸和脯氨酸代谢3/320.1762.5760.003不饱和脂肪酸的生物合成2/220.0001.7840.016氮代谢1/120.0000.9760.106谷胱甘肽代谢2/260.0501.6450.023角质、软脂和蜡的生物合成1/180.0000.8110.154果糖和甘露糖代谢1/180.0670.8110.154精氨酸生物合成1/180.0990.8110.154磷酸戊糖途径1/190.0000.7890.162丙酸酯代谢1/200.0020.7670.170
续表6
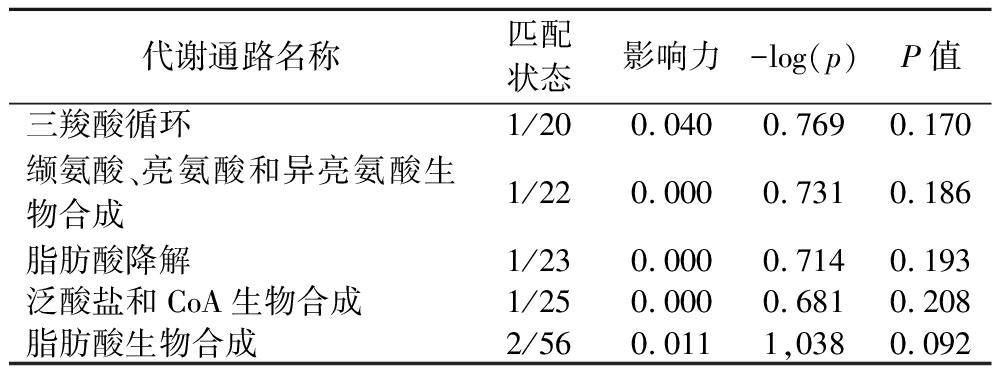
代谢通路名称匹配状态影响力-log(p)P值三羧酸循环1/200.0400.7690.170缬氨酸、亮氨酸和异亮氨酸生物合成1/220.0000.7310.186脂肪酸降解1/230.0000.7140.193泛酸盐和CoA生物合成1/250.0000.6810.208脂肪酸生物合成2/560.0111,0380.092
2.6 不同贮藏时间下生菜代谢物的差异分析
采用韦恩图对24、48、72 h这3个贮藏时间点的成熟期生菜差异代谢物进行系统性比较分析,能够直观揭示不同贮藏阶段特有及共有的关键代谢物特征。分析结果表明(图4),3个时间点的差异代谢物数量分布呈现明显的时间依赖性递减趋势,其中24 h组鉴定出13种差异代谢物,48 h组减少至11种,而72 h组则进一步降至7种。这种数量变化模式反映出随着贮藏时间的延长,成熟期生菜的代谢响应逐渐趋于集中和特化。在共有代谢物分析方面,24 h与48 h这2个处理组共享6个共同差异代谢物,包括甘油酸、苹果酸、L-天冬氨酸、腐胺、D-葡萄糖和蔗糖。这些代谢物主要涉及能量代谢和渗透调节途径,体现了早期至中期贮藏阶段的核心代谢特征。48 h与72 h处理组同样共享6个共同差异代谢物,分别为甘油、甘油酸、腐胺、D-果糖、D-葡萄糖和蔗糖,其中甘油的增加和苹果酸的减少标志着代谢重心的转移。24 h与72 h处理组之间共享5个共同差异代谢物,包括甘油酸、L-谷氨酸、腐胺、D-葡萄糖和蔗糖,这些代谢物构成了跨越早期和晚期贮藏阶段的稳定代谢基础。特别值得注意的是,3个处理组共同拥有4个核心差异代谢物:甘油酸、腐胺、D-葡萄糖和蔗糖。这4种代谢物构成了贯穿整个贮藏过程的“核心代谢模块”,可能在成熟期生菜应对低温胁迫的过程中发挥着基础性的生理功能。甘油酸作为糖代谢的中间产物,连接着能量代谢的多条途径;腐胺作为多胺类物质,参与细胞的渗透调节和抗氧化防御;D-葡萄糖和蔗糖则直接提供能量底物并参与渗透保护。进一步分析发现,各贮藏阶段均存在特有的差异代谢物。24 h组特有的代谢物主要涉及初始应激反应,48 h组特有的代谢物反映了代谢网络的调整过程,而72 h组特有的代谢物则体现了长期适应机制的形成。这些阶段特异性代谢物的存在,结合共有代谢物的动态变化,共同勾勒出成熟期生菜在低温贮藏过程中代谢适应的完整轨迹,为深入理解其采后生理变化机制提供了重要的代谢组学证据。
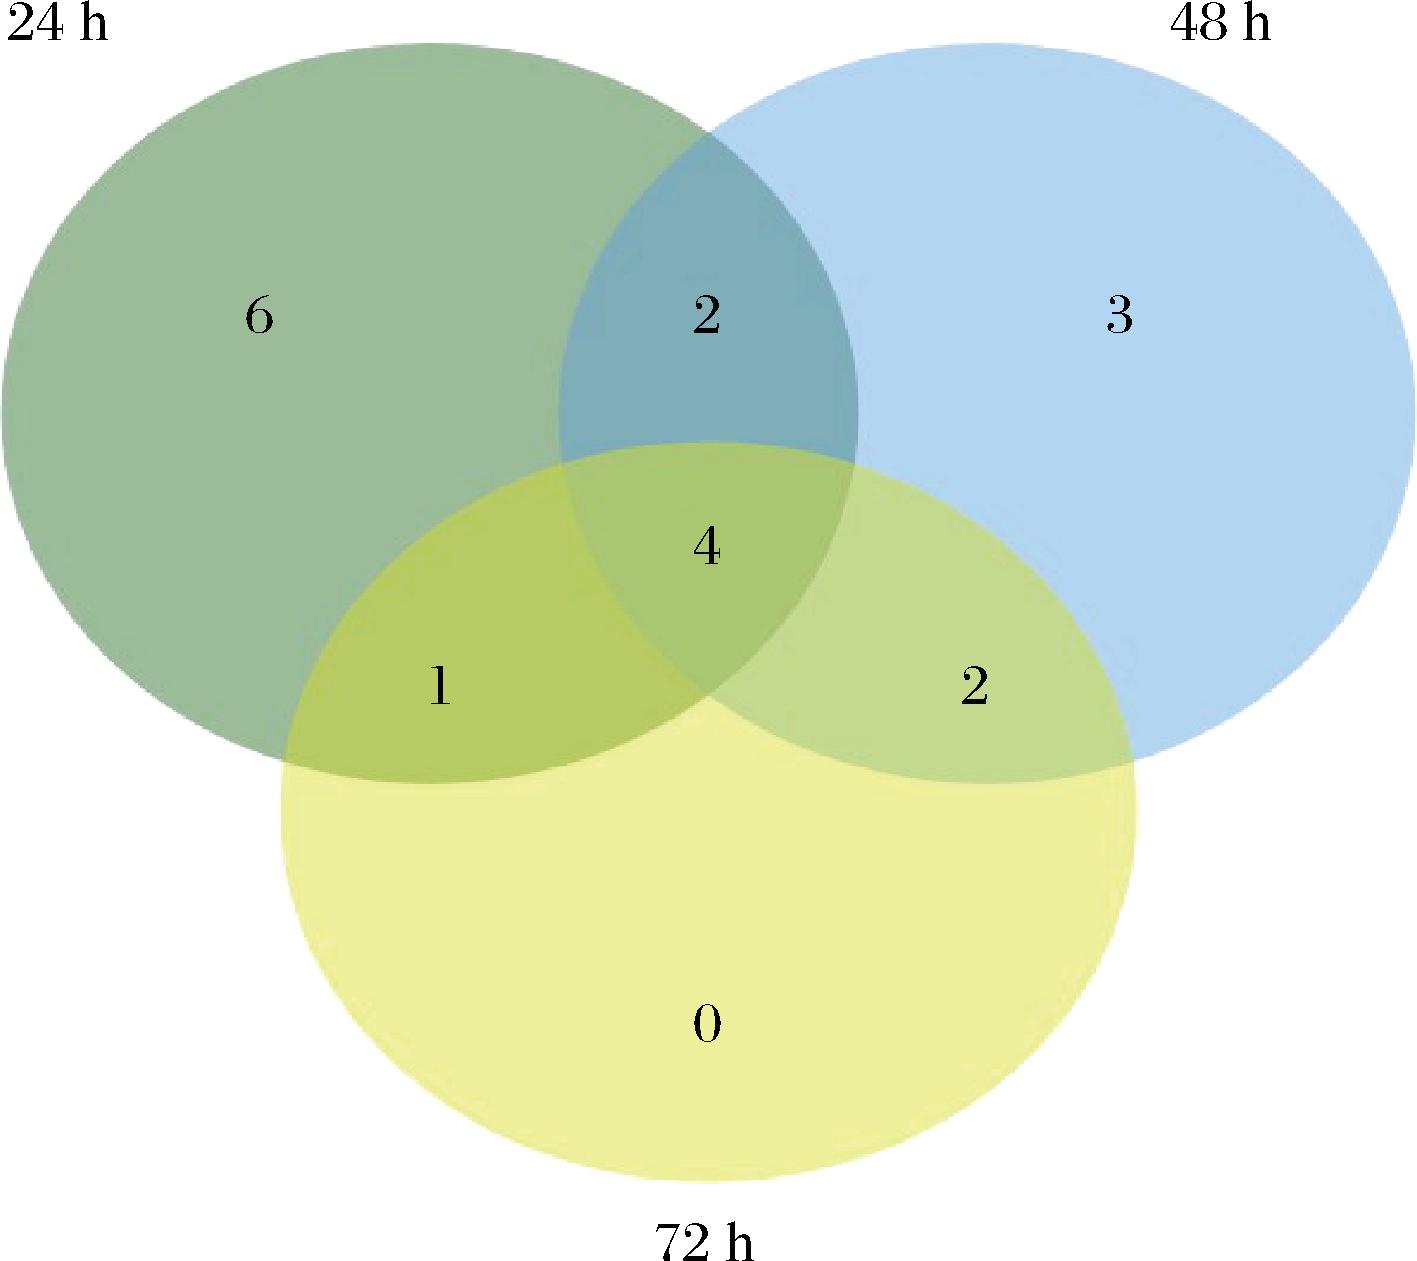
图4 不同贮藏时间下成熟期生菜差异代谢物韦恩图
Fig.4 Venn diagram of differential metabolites in mature lettuce seedlings under different storage durations
3 讨论
3.1 生菜代谢物的动态变化规律
本研究基于GC-MS的代谢组学技术,对生菜在不同贮藏阶段的代谢物动态变化规律进行了系统解析。该技术凭借高通量、高灵敏度的分析优势,实现了对生菜贮藏期间代谢物组分的全景式监测,为深入揭示其生理生化响应机制提供了坚实的数据支撑[16-19]。研究结果表明,随着贮藏时间的延长,生菜的糖类与有机酸代谢进程呈现显著强化趋势。这一代谢特征与植物在贮藏过程中因呼吸强度提升而加速糖类消耗的典型规律高度契合。在贮藏初期,生菜细胞通过糖酵解途径将葡萄糖、果糖等可溶性糖高效分解为丙酮酸,为维持细胞膜完整性、酶活性及离子转运等基础生理活动提供能量底物。随着贮藏进程的推进,细胞超微结构逐渐遭到破坏,线粒体功能出现衰退,此时生菜转而依赖三羧酸循环中有机酸的代谢重构来维持能量供给。此代谢转向不仅导致蔗糖、麦芽糖等储能物质加速降解,还促使乳酸、苹果酸等中间代谢产物在组织内累积,形成独特的代谢物指纹图谱。同时,氨基酸代谢的动态变化呈现鲜明的阶段性特征。贮藏初期,天冬氨酸、谷氨酸等游离氨基酸在代谢物组中的相对丰度显著升高,这反映了生菜在应对低温、湿度波动等贮藏环境胁迫时的应激性调控策略。此时,蛋白质降解速率加快,释放的氨基酸既作为能量代谢的替代底物,又参与谷胱甘肽、脯氨酸等抗氧化物质的从头合成,以抵御活性氧对细胞膜脂及生物大分子的攻击。然而,随着贮藏期的持续延长,蛋白酶活性逐渐衰减,蛋白质合成-降解平衡被打破,加之细胞抗氧化系统的功能衰退,导致氨基酸代谢流强度显著减弱。这一代谢轨迹的演变,不仅揭示了生菜在贮藏过程中抗逆机制的时序性变化,也为优化采后保鲜技术提供了靶向调控的代谢节点。
3.2 能量代谢与抗逆通路的动态平衡
贮藏时间对生菜代谢物的影响深刻揭示了能量代谢系统与抗逆响应机制之间的动态平衡关系。贮藏初期(24 h),氨基酸类物质占比显著升高,标志着早期应激程序的启动。生菜通过加速蛋白质分解,释放游离氨基酸既作为应急能源,又为合成谷胱甘肽等抗氧化物质提供前体,构建氧化防御体系[20]。同时,糖酵解与三羧酸循环协同激活,保障基础代谢的能量需求。贮藏中期(48 h),代谢特征呈现明显转变。有机酸类物质显著积累,反映核心能量代谢通路的强化。此阶段细胞结构完整性开始受损,呼吸代谢需求激增,促使代谢流重新分配。抗逆响应呈现多维激活:抗氧化系统通过NADPH再生途径增强还原力供给[21];膜脂代谢调整不饱和脂肪酸比例以维持低温下的流动性[22];渗透调节物质合成增强以应对渗透胁迫[23]。当贮藏时间超过临界阈值,代谢平衡被打破。持续能量消耗导致代谢底物枯竭,三羧酸循环效率下降,ATP合成不足。同时,代谢副产物积累引发胞内酸化,抑制酶活性。抗氧化系统因NADPH再生受阻而效能衰减,活性氧积累导致氧化损伤加剧。这种能量供给不足与防御能力衰退的恶性循环,最终引发品质不可逆劣变。
3.3 关键代谢物、核心代谢通路与保鲜技术启示
在贮藏末期,糖类物质占比显著增加,这一现象或暗示着蔗糖正积极转化为单糖,以灵活应对渗透压的调节需求。尤为引人关注的是,腐胺的逐渐累积已成为保鲜过程中的一大阻碍,其通过加速膜脂的过氧化反应,严重加剧了细胞的损伤程度。KEGG通路的富集分析结果进一步揭示,丙氨酸-天冬氨酸-谷氨酸代谢、淀粉与蔗糖代谢以及丁酸代谢这3大代谢通路在贮藏期间扮演的枢纽角色,它们紧密协作,共同维持着能量代谢的稳态、氮同化的高效进行以及胁迫应答机制的灵敏触发。上述发现为创新保鲜策略开辟了多维度的优化路径:其一,精准调控关键代谢物[24],研发能够调控腐胺代谢酶活性的新型抑制剂或激活剂,通过精细控制代谢产物水平动态平衡,有效延缓品质劣变进程;其二,靶向干预核心通路,构建AAAG代谢与糖代谢通路的动态平衡模型,着重开发外源添加策略,如引入L-天冬氨酸或α-酮戊二酸,同时优化气调参数,如实施O2/CO2梯度控制系统,以稳固线粒体能量代谢与细胞膜结构的稳定性[25];其三,融合多维保鲜技术,打造“代谢组监测-物化处理”的联用体系,集成冰温精准控温[26]、真空速效预冷及等离子活化水处理等先进技术[27],并建立以甘油酸动态特征、蔗糖/葡萄糖代谢指纹为评估核心的实时评估系统,实现保鲜参数的动态、智能优化。
4 结论
采用基于GC-MS的代谢组学技术,本研究对生菜在动态贮藏过程中的代谢物变化进行了系统解析,深入揭示了贮藏环境中能量代谢与抗逆性调控机制的动态平衡及其相互作用机制,系统阐明了关键代谢物与调控通路的时空响应规律。研究结果表明,贮藏时间对生菜代谢组学特征的影响呈现显著梯度效应,具体表现为糖酵解、三羧酸循环等核心代谢途径的显著增强,氨基酸代谢呈现贮藏初期、中期及后期的差异化响应特征,以及特定代谢物(如腐胺)的累积现象,后者可能通过调控细胞膜稳定性或氧化应激响应机制对生菜品质产生潜在影响。基于KEGG通路富集分析,丙氨酸-天冬氨酸-谷氨酸代谢途径被证实贯穿贮藏全过程,在维持氮素循环及抗逆性调控中占据核心地位;同时,碳水化合物代谢通路的动态调控直接关联生菜货架期的维持机制。
[1] 余菲, 赵晓燕, 周昌艳, 等.不同品种生菜的多酚、黄酮差异比较与抗氧化活性[J].食品科学, 2024, 45(13):17-25.Yu F, Zhao X Y, Zhou C Y, et al.Comparison of polyphenols, flavonoids and antioxidant activities of different varieties of lettuce[J].Food Science, 2024, 45(13):17-25.
[2] 白亚龙, 廖小艳, 崔妍.消除鲜食生菜中细菌污染的研究进展[J].食品科学, 2022, 43(19):367-374.Bai Y L, Liao X Y, Cui Y.Progress in eliminating bacterial contamination in ready-to-eat lettuce[J].Food Science, 2022, 43(19):367-374.
[3] 唐坚, 马丽, 王凯晨, 等.冰温贮藏对生菜抗氧化能力及贮藏效果的影响[J].食品科学, 2015, 36(22):255-259.Tang J, Ma L, Wang K C, et al.Effect of freezing-point storage on antioxidation capacity and preservation of postharvest lettuce[J].Food Science, 2015, 36(22):255-259.
[4] 闫静文,王雪芹,刘宝林,等.真空预冷及贮藏方式对生菜品质的影响[J].食品工业科技, 2011, 32(1):261-263.Yan J W, Wang X Q, Liu B L, et al.Effects of vacuum cooling and storage condition on the quality of leafy lettuce[J].Science and Technology of Food Industry, 2011, 32(1):261-263.
[5] Wang T, An J H, Chai M N, et al.Volatile metabolomics reveals the characteristics of the unique flavor substances in oats[J].Food Chemistry, 2023, 20:101000.
[6] Kebede B, Ting V, Eyres G, et al.Volatile changes during storage of shelf stable apple juice:Integrating GC-MS fingerprinting and chemometrics[J].Foods, 2020, 9(2):165.
[7] Cerezal Mezquita P,  lvarez LóPez A, Bugue
 o Muoz W.Effect of drying on lettuce leaves using indirect solar dryer assisted with photovoltaic cells and thermal energy storage[J].Processes, 2020, 8(2):168.
[8] Baur S, Klaiber R G, Koblo A, et al.Effect of different washing procedures on phenolic metabolism of shredded, packaged iceberg lettuce during storage[J].Journal of Agricultural and Food Chemistry, 2004, 52(23):7017-7025.
[9] 邓子安, 吴清燕, 江风, 等.等离子体活化水喷淋及浸泡处理的生菜采后品质变化分析[J].现代食品科技, 2024, 40(2):149-159.Deng Z A, Wu Q Y, Jiang F, et al.Post-harvest quality changes in lettuce treated with plasma-activated water via spraying and soaking[J].Modern Food Science and Technology, 2024, 40(2):149-159.
[10] Zhao J, Quan P K, Liu H K, et al.Transcriptomic and metabolic analyses provide new insights into the apple fruit quality decline during long-term cold storage[J].Journal of Agricultural and Food Chemistry, 2020, 68(16):4699-4716.
[11] Zhang L, Kou X Y, Huang X, et al.Peach-gum:A promising alternative for retarding the ripening and senescence in postharvest peach fruit[J].Postharvest Biology and Technology, 2020, 161:111088.
[12] Abbas H M K, Huang H X, Huang W J, et al.Evaluation of metabolites and antioxidant activity in pumpkin species[J].Natural Product Communications, 2020, 15(4):1934578X20920983.
[13] 林秀贤, 夏兰欣, 寇德正, 等.基于代谢组学的炕制马铃薯加工过程中挥发性成分变化[J].食品科学, 2023, 44(12):298-305.Lin X X, Xia L X, Kou D Z, et al.Metabolomic analysis of changes in volatile components of half-boiled and pan-fried potatoes during processing[J].Food Science, 2023, 44(12):298-305.
[14] 李恒伟, 王庆国.结球生菜二氧化碳伤害预警指标的初步筛选[J].包装工程, 2022, 43(7):35-44.Li H W, Wang Q G.Preliminary screening of warning indexes for carbon dioxide damage of head lettuce[J].Packaging Engineering, 2022, 43(7):35-44.
[15] 贲蓓倍, 刘海学, 李娜, 等.磺胺类抗生素对玉米幼苗生长、生理及代谢组的影响[J].南方农业学报, 2021, 52(11):2977-2985.Ben B B, Liu H X, Li N, et al.Effects of sulfonamide antibiotics on growth, physiology, and metabolomics of maize seedlings[J].Journal of Southern Agriculture, 2021, 52(11):2977-2985.
[16] Tamura Y, Mori T, Nakabayashi R, et al.Metabolomic evaluation of the quality of leaf lettuce grown in practical plant factory to capture metabolite signature[J].Frontiers in Plant Science, 2018, 9:665.
[17] Yan Z C, Zuo J H, Zhou F H, et al.Integrated analysis of transcriptomic and metabolomic data reveals the mechanism by which led light irradiation extends the postharvest quality of Pak-choi (Brassica campestris L.ssp.chinensis (L.) makino var.communis tsen et lee)[J].Biomolecules, 2020, 10(2):252.
[18] Liu Y, Liu J, Abozeid A, et al.UV-B Radiation largely promoted the transformation of primary metabolites to phenols in Astragalus mongholicus seedlings[J].Biomolecules, 2020, 10(4):504.
[19] Verhagen K J, Van Gulik W M, Wahl S A.Dynamics in redox metabolism, from stoichiometry towards kinetics[J].Current Opinion in Biotechnology, 2020, 64:116-123.
[20] Hasanuzzaman M, Nahar K, Anee T I,et al.Glutathione in plants:Biosynthesis and physiological role in environmental stress tolerance[J].Physiology &Molecular Biology of Plants.2017, 23(2):249-268.
[21] 张爱琴, 柳利龙,郭斌, 等.基于广泛靶向代谢组学的庆阳酒谷和陇谷23品种小米代谢物差异分析[J].食品工业科技,2026,47(16):336-345.Zhang A Q, Liu L L, Guo B, et al.Analysis of differential metabolites in Qingyang Jiugu and Longgu 23 millet varieties using widely targeted metabolomics[J].Science and Technology of Food Industry, 2026,47(16):336-345.
[22] Bhattacharya A.Lipid metabolism in plants under low-temperature stress:A review[M].Singapore:Springer Nature Singapore Pte Ltd, 2022:409-516.
[23] 沈思蔚, 姜丽, 左澳腾, 等.基于非靶向代谢组学探究盐胁迫下多变拟威克酵母脂肪酸代谢的研究[J].中国调味品, 2025, 50(11):72-77;91.Shen S W, Jiang L, Zuo A T, et al.Study on fatty acid metabolism of Wickerhamiella versatilis under salt stress based on non-targeted metabolomics[J].China Condiment, 2025, 50(11):72-77;91.
[24] Yu X L, Li S S.Specific regulation of epigenome landscape by metabolic enzymes and metabolites[J].Biological Reviews of the Cambridge Philosophical Society, 2024, 99(3):878-900.
[25] Gu J H, Zeng Z, Wang Y R, et al.Transcriptome analysis of carbohydrate metabolism genes and molecular regulation of sucrose transport gene LoSUT on the flowering process of developing oriental hybrid lily ‘sorbonne’ bulb[J].International Journal of Molecular Sciences, 2020, 21(9):3092.
[26] Zhao J, Liu D H, Yuan X L, et al.Model predictive control for the ice-storage air-conditioning system coupled with multi-objective optimization[J].Applied Thermal Engineering, 2024, 243:122595.
[27] Schnabel U, Handorf O, Stachowiak J, et al.Plasma-functionalized water:From bench to prototype for fresh-cut lettuce[J].Food Engineering Reviews, 2021, 13(1):115-135.