黄原胶是一种由野油菜黄单胞菌(Xanthomonas campestris)通过微生物发酵产生的天然高分子多糖,属于微生物胞外多糖[1]。黄原胶最早由美国内布拉斯加农业研究实验室发现,由X.campestris NRRL B-1459产生[2],其主链由β-1,4-葡萄糖组成,侧链含甘露糖、葡萄糖醛酸等,形成独特的双螺旋结构。黄原胶的双螺旋结构是其核心性能基础,使其在高温、高压、高盐等苛刻条件下维持结构稳定性[3],也赋予其高度水溶性[4],使其具有优异的理化特性。独特的分子结构和理化特性使得黄原胶被广泛应用于各种领域,目前,在食品饮料、石油、化妆品、农药、陶瓷、印染等行业具有广泛应用,成为学术界和工业界的关注焦点[5]。黄原胶的生产方法主要包括生物合成法和化学合成法,目前主流方法为生物合成法,相较化学合成法,生物合成法在环保性、成本效益、产品特性、灵活性、技术创新及安全性等方面具有一定优势。
黄原胶作为全球需求量持续增长的功能多糖,其菌株选育与生产优化已成为生物制造领域的重要研究方向。目前,传统紫外和化学诱变育种结合代谢工程策略已取得显著进展,例如敲除负调控基因(如phoP、gacA)和强化前体代谢(如过表达galU、uxs)可使产量提升30%~50%,但随机突变的低效性和菌株稳定性问题限制了其工业化应用。近年来,CRISPR-Cas9定向编辑技术的引入实现了精准调控,如靶向修饰黄原胶合酶基因(xps)及侧链修饰酶(乙酰转移酶、丙酮酸激酶),在提升产量(>60%)的同时改善其流变性能。目前传统黄原胶生产方法存在产胶率低、发酵周期长、成本高等问题[6],严重影响了相关产品的产量和应用,制约了产业发展。解决该问题,需要从选育优良菌株、优化生产工艺、降低生产成本等方面入手,采取有效措施提高生产效率和产品质量,促进相关产业可持续发展。目前,借助物理或化学手段对菌株实施改良,是提高产量的有效路径[7]。未来需融合合成生物学、智能发酵工程及人工智能辅助设计,突破代谢网络全局调控瓶颈,同时开发低能耗反应器与连续化纯化技术,以满足食品、石油、医药等行业对高品质黄原胶日益增长的需求。本综述从生物工艺与微生物视角,解析黄原胶生物合成的分子基础与gum基因簇功能分工,总结诱变育种与高通量筛选耦合策略,并归纳代谢工程改造关键基因及工艺优化参数,展望系统生物学与精准编辑技术推动高产优质规模化发展。
1 黄原胶的基本结构与性质
1.1 黄原胶的结构
黄原胶是一种具有独特化学结构和物理性质的天然多糖。从微观化学结构来看,黄原胶的分子骨架由β-(1→4)糖苷键交替连接的D-葡萄糖单元重复构成,这一主链结构特征与天然高分子材料纤维素的主链构型具有结构同源性,为其提供了良好的分子刚性基础[8-9]。与简单线性结构的多糖不同,如图1所示,黄原胶分子的显著结构差异体现在其侧链结构及修饰上:在主链每个葡萄糖单元的C3位羟基上,均共价连接一条结构规整的三糖侧链,该侧链由2个甘露糖单元和1个葡萄糖醛酸单元交替连接组成。具体而言,靠近主链的首位D-甘露糖单元通过α-(1→3)糖苷键与主链葡萄糖相连,其C6位羟基通常被乙酰基(—COCH3)修饰;中间的D-葡萄糖醛酸单元通过β-(1→2)糖苷键与首位甘露糖连接,且部分分子中葡萄糖醛酸的羧基会以钾、钠或钙盐的形式存在;末端的β-D-甘露糖单元则通过β-(1→4)糖苷键与葡萄糖醛酸结合,其C4、C6位羟基进一步被丙酮酸缩酮修饰。侧链中少量丙酮酸和乙酰基基团的存在使黄原胶具有一定的电荷分布[10]。此外,黄原胶的分子结构还表现出一定的构象变化能力。在溶液中,黄原胶分子可以发生一级结构、二级螺旋构象以及超级接合带状螺旋共聚物构象间的互变现象。从宏观角度来看,黄原胶是一种高分子质量的阴离子多糖,其分子质量通常为2×106~20×106 Da,具体取决于发酵条件和制备方法[11]。
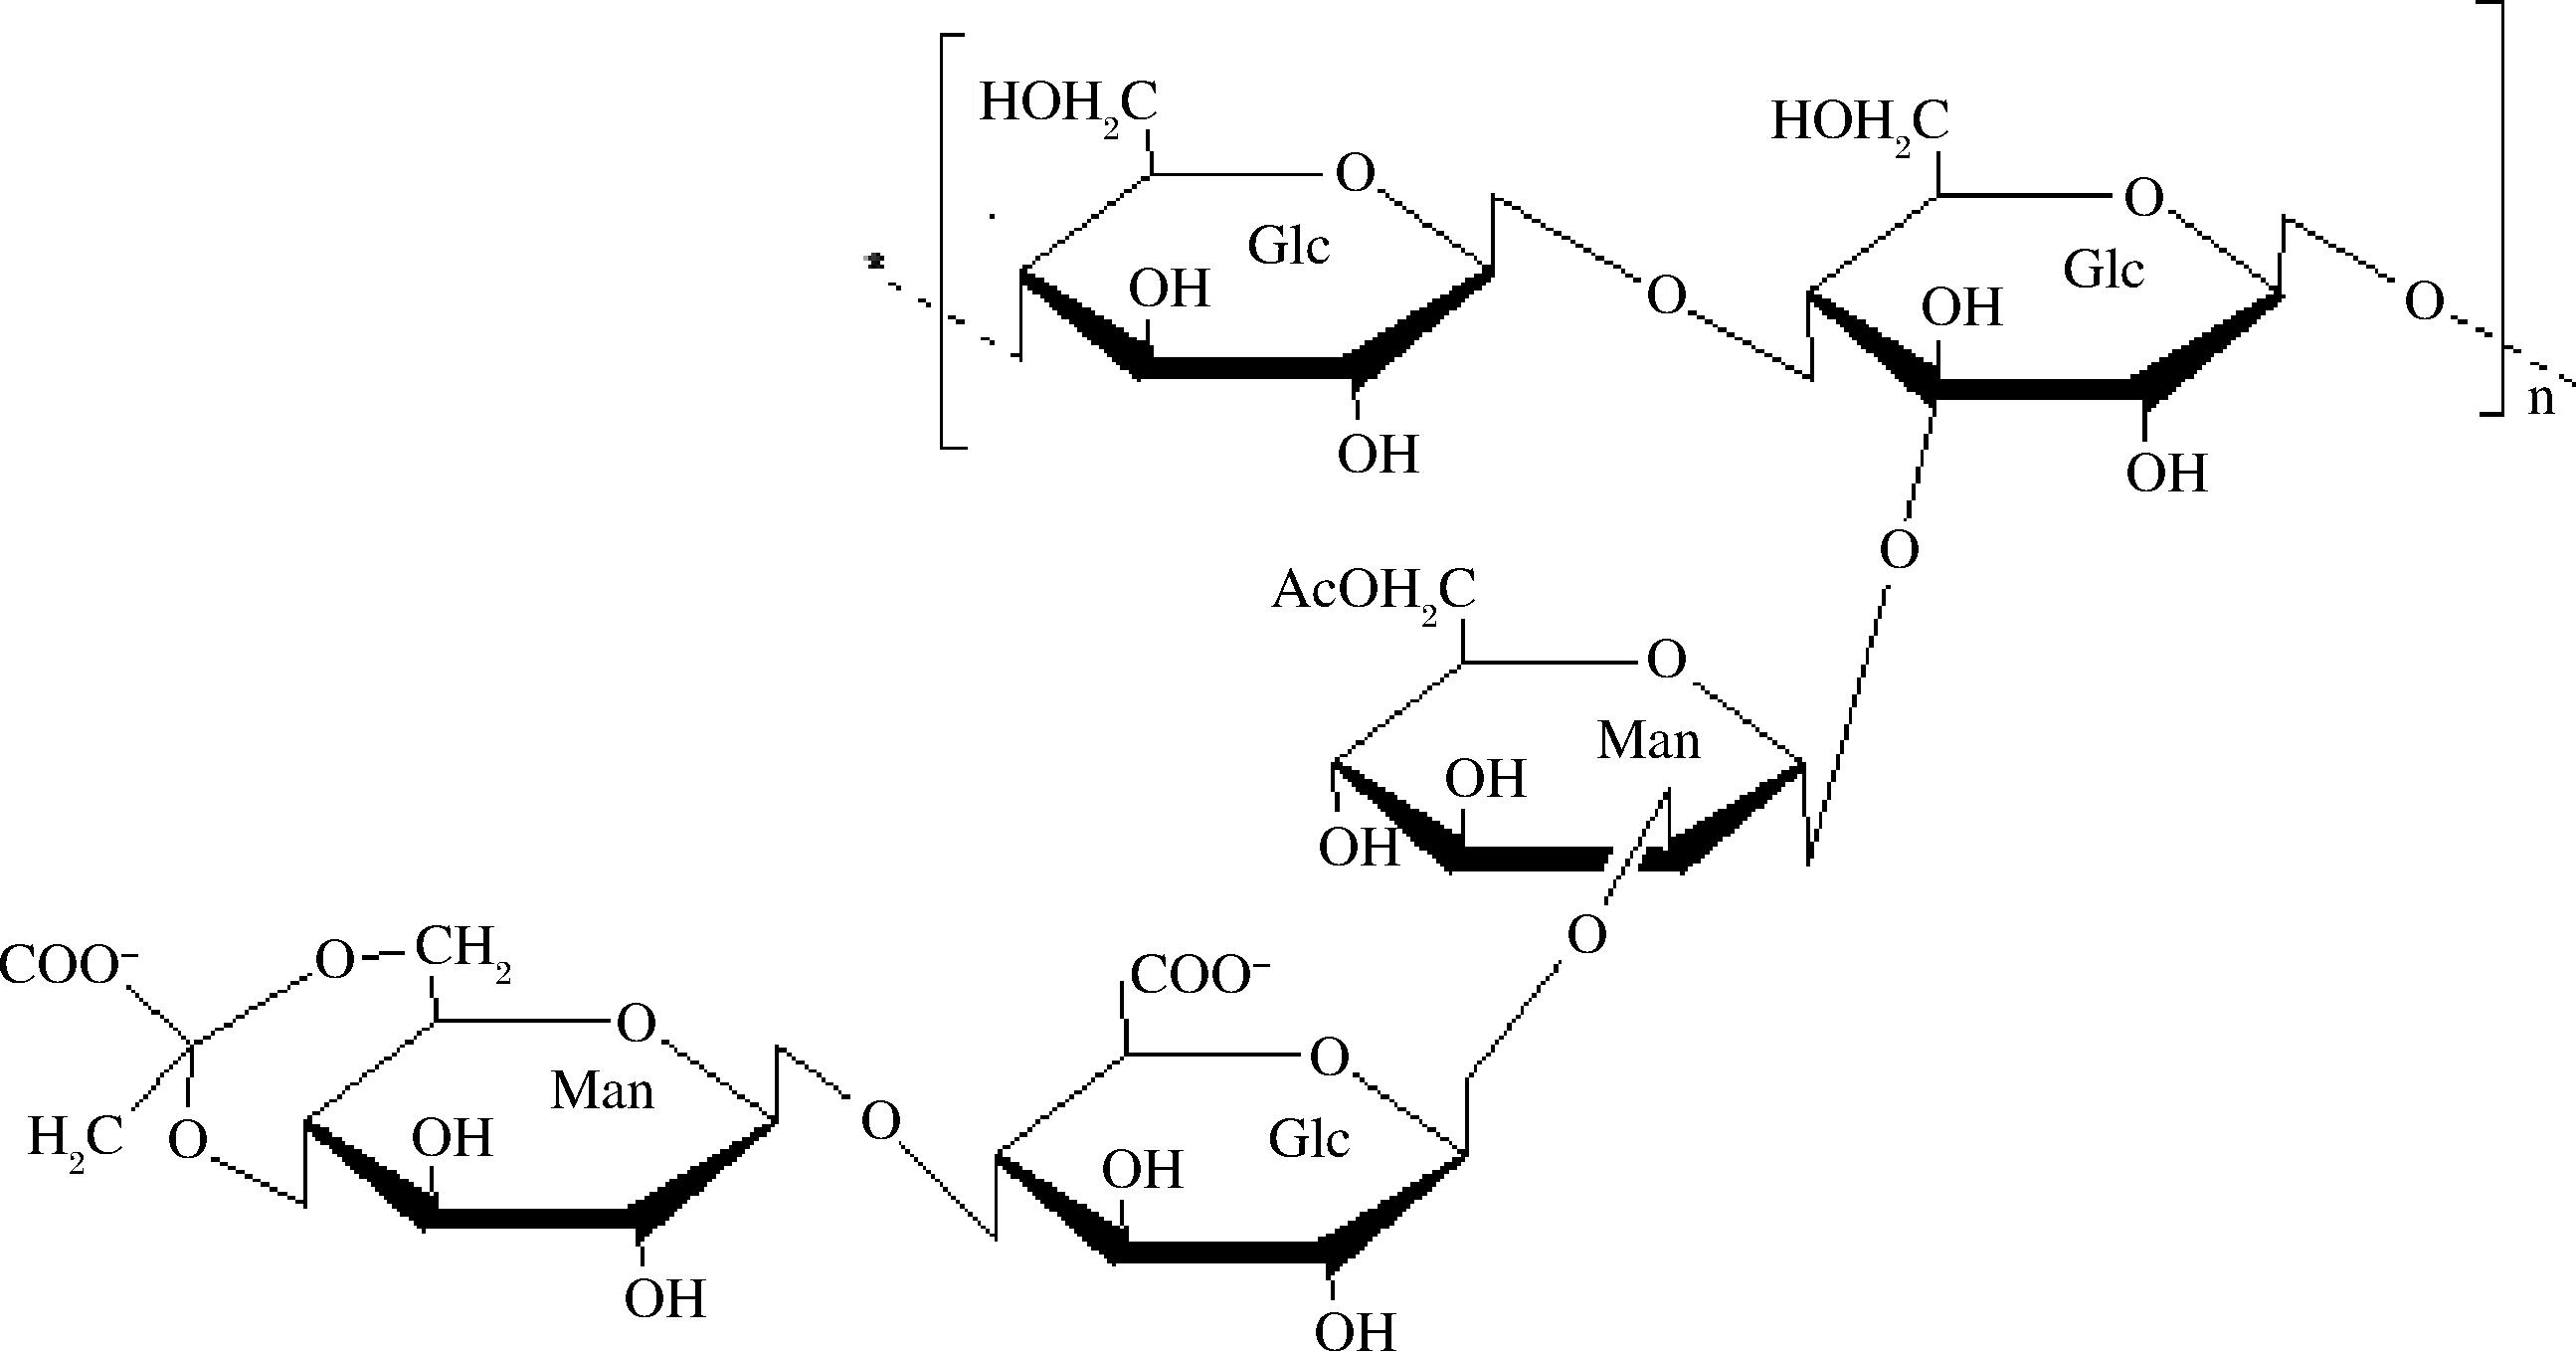
图1 黄原胶结构示意图
Fig.1 Schematic diagram of xanthan gum structure
1.2 黄原胶的性质
黄原胶是一种白色或淡黄色的粉末状物质,无味且具有良好的水溶性,能在冷水中迅速分散并溶解,形成均匀透明且具有一定黏度的溶液[12]。从基础物理性质来看,它属于高分子质量物质,溶液透光性较低,且透光性会因分子质量和浓度变化略有不同,高浓度条件下因分子缠结聚集可能导致透光性下降。其核心流变学特性表现为典型的假塑性流体,即在剪切力作用下黏度降低,在剪切力去除后又恢复原状[13]。在稳定性方面,黄原胶表现优异,不仅耐酸碱,能在较宽pH范围内保持性质稳定,还具备良好的热稳定性,在高温环境下仍可维持结构与功能不变,同时与多种高分子化合物及表面活性剂相容性良好,不会产生相互干扰或沉淀现象[14]。此外,黄原胶具有良好的生物相容性、安全性[15],以及较好的悬浮性、乳化性与耐盐性[16]。
2 黄原胶的生产方式
黄原胶的生产方式主要包括化学合成[17]和生物合成[18]2种途径。
2.1 化学合成
化学合成法理论上可通过可控聚合反应构建黄原胶分子结构,但受限于糖单元连接顺序与立体化学控制的复杂性,难以精准复现天然黄原胶的β-(1→4)-D-葡萄糖主链及交替甘露糖醛酸/葡萄糖醛酸侧链结构[19],且反应条件苛刻(需高温、高压及有毒催化剂),产物分离纯化困难,导致产率极低、生产成本高昂,难以实现工业化应用[8]。同时还存在环境污染严重、能耗高以及难以控制产品的分子质量分布,导致最终产品性能不稳定。
2.2 生物合成
黄原胶的生物合成是以黄单胞菌发酵为核心,通过微生物代谢途径实现天然结构的高效合成。菌株利用碳源(如葡萄糖、蔗糖)、氮源(如玉米浆、酵母粉)及磷酸盐等营养物质,在适宜温度(28~30 ℃)、pH值(6.5~7.5)及溶氧条件下,经糖代谢与磷酸酯化修饰生成黄原胶合成所需前体,再经聚合、转运等过程分泌至胞外形成成熟多糖。如图2所示,黄原胶的胞内生物合成主要分两步,首先在细胞质中,以葡萄糖为起点,经磷酸化生成6-磷酸葡萄糖,再转化为1-磷酸葡萄糖、6-磷酸果糖、6-磷酸甘露糖等中间物,进而合成尿苷二磷酸葡萄糖、尿苷二磷酸葡萄糖醛酸、鸟苷二磷酸甘露糖这3种核心糖基前体;随后在细胞膜上,这些糖基前体依次连接至脂质载体上,逐步组装成 “葡萄糖-葡萄糖-甘露糖-葡萄糖醛酸-甘露糖”的五糖重复单元,同时引入乙酰基和丙酮酸修饰,最终形成聚合物分泌到胞外[20]。
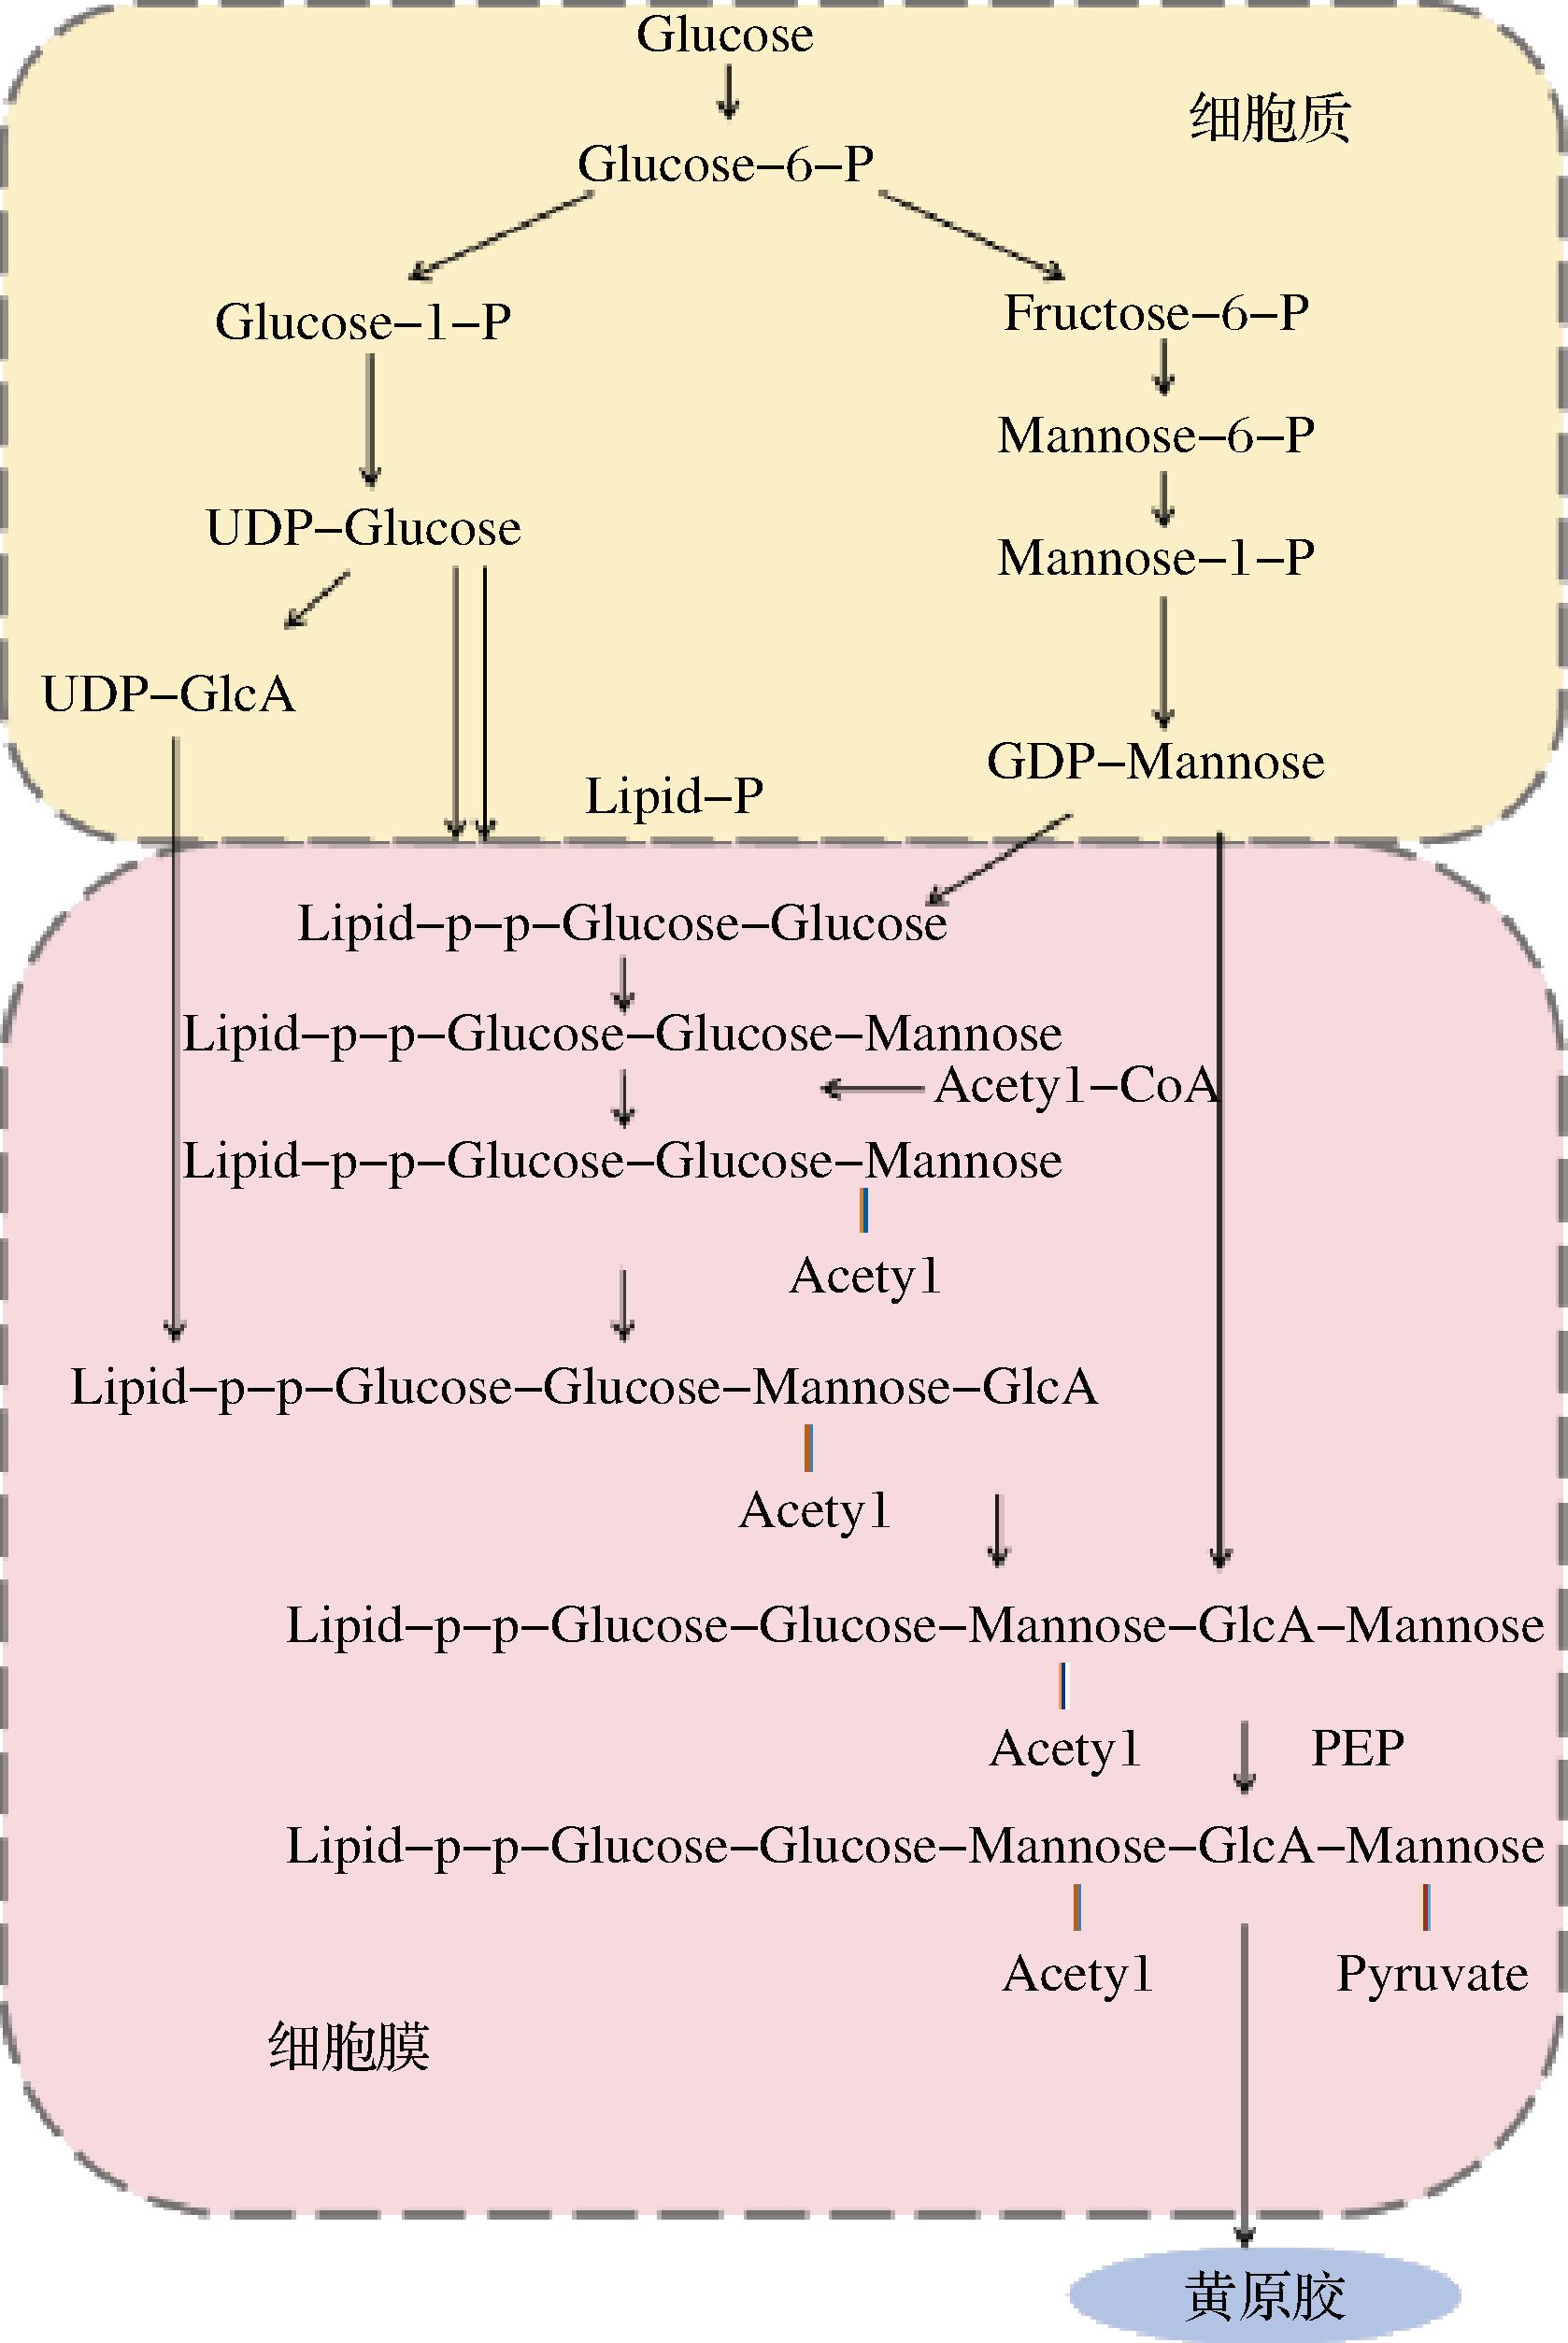
图2 黄原胶生物合成途径
Fig.2 Biosynthetic pathway of xanthan gum
注:葡萄糖(Glucose)、6-磷酸葡萄糖(Glucose-6-P)、1-磷酸葡萄糖(Glucose-1-P)、6-磷酸果糖(Fructose-6-P)、6-磷酸甘露糖(Mannose-6-P)、6-1磷酸甘露糖(Mannose-1-P)、尿苷二磷酸葡萄糖(UDP-Glucose)、尿苷二磷酸葡萄糖醛酸(UDP-GlcA)、鸟苷二磷酸甘露糖(GDP-Mannose)、脂质载体(Lipid-P)、乙酰基(Acetyl)、丙酮酸(Pyruvate)。
生物合成是目前工业上生产黄原胶的主要方式,主要利用微生物发酵法生产。具体过程首先进行菌种选育,一般选用X. campestris作为生产菌株。通过筛选和诱变等方法获得优良菌株。这些菌种具有生长快、产量高[21]、遗传稳定性好[22]等特点。随后进行培养基配制,培养基是微生物生长和制胶的营养来源,主要成分包括碳源、氮源、无机盐和生长因子,常用的碳源有葡萄糖、蔗糖、淀粉等,氮源有蛋白胨、酵母粉、硫酸铵等,此外还应添加适量的磷酸盐、镁盐、铁盐等无机盐和维生素等生长因子,以满足菌株生长代谢的需要[23]。将筛选好的菌种接种到发酵罐中,在适宜的条件下进行发酵培养。发酵条件对黄原胶得率和品质至关重要,包括温度、pH值、溶解氧、搅拌速度等。一般发酵温度控制在25~30 ℃,有研究指出,在30 ℃条件下培养时黄原胶产量最高[19]。也有研究提到最佳发酵温度为28~30 ℃,表明发酵温度对黄原胶的产量具有重要影响[24]。发酵过程pH值通常保持在6.5~7.5,有研究表明,黄原胶的产率在pH值为7.0时最高[19]。有研究提到最适pH值为6.8,也有研究指出pH 6.8有利于黄原胶的发酵,这表明pH值对黄原胶的生成有显著影响[25]。发酵结束后,先用过滤或离心等方法除去发酵液中的细菌和杂质,得到黄原胶溶液,然后根据需要浓缩提高浓度[26]。在黄原胶浓缩液中加入适量的沉淀剂[27],如乙醇[28]、异丙醇等有机溶剂,使黄原胶沉淀,通过过滤或离心分离获得湿黄原胶滤饼。最后,湿滤饼被干燥,除去水分,得到黄原胶成品。
该方法具有环保性,生物合成过程不产生有害副产物,符合绿色化学理念;通过分子设计和代谢工程,可以精确调控黄原胶的分子质量和功能特性;同时具有可持续性,利用农业废弃物或副产物(如甘油)作为碳源,有助于资源循环利用,但存在发酵过程耗能较高,且大规模生产时原料成本可能较高、需要复杂的发酵设备和严格的工艺控制、发酵周期长(通常48~72 h)、易染菌、后处理能耗高等缺点。
近年来通过基因工程改造菌株[29](如提高磷酸酯酶活性、优化糖基转移酶效率)可显著提升黄原胶产量,而连续发酵、膜分离等技术的应用进一步降低了生产成本,使其成为全球90%以上黄原胶工业生产的首选技术。
3 工程化改造
3.1 菌株概述
X. campestris是黄单胞菌属(Xanthomonas)的一种革兰氏阴性细菌,广泛应用于工业生产黄原胶[30]。X. campestris的代谢过程涉及多种关键酶,如葡萄糖-6-磷酸脱氢酶和丙酮酸激酶[31],这些酶在不同发酵阶段的活性变化对黄原胶的产量有直接影响。X. campestris通过分泌细胞外多糖和效应蛋白等物质来增加其致病性和适应性[32-33],这些特性使得X. campestris在农业、工业、医学等诸多领域具有重要的研究价值和应用潜力。
3.2 菌株改造
3.2.1 诱变选育
黄原胶因其优良的流变性和稳定性而广泛应用于多个领域,但生产效率低且生产成本较高制约了其发展,选育优良的黄原胶生产菌株至关重要。目前,诱变技术因能高效诱导微生物发生基因突变、可定向筛选出高产或优质性状的菌株、操作相对便捷且能打破传统育种的遗传局限、对现有生产菌株改造适应性强等特点,成为提高黄原胶产量和品质的重要手段,在高产菌株诱变选育研究中常采用物理诱变(如紫外线、重离子束、等离子体诱变)和化学诱变(如亚硝基胍、化学诱变剂)等方法。
常压室温等离子体(atmospheric and room temperature plasma,ARTP)诱变是一种利用大气压射频辉光放电产生的等离子体进行微生物诱变的技术[34]。该技术具有操作简单、条件温和、安全性高、诱变速度快等优点,近年来在微生物育种领域得到了广泛应用[35]。有研究通过ARTP诱变技术对黄原胶生产菌株进行诱变,成功获得高产黄原胶的突变株X20,其黄原胶产量显著提高,且在不同盐浓度下表现出更高的稳定性[36]。紫外线诱变是一种常用的微生物育种技术,通过紫外线辐射作用,诱发微生物基因组发生突变,从而筛选出具有特定优良性状的菌株。这种方法在工业微生物育种中得到了广泛应用,尤其是在提高酶的催化活性、目标产物产量和耐受性等方面表现出显著效果[37]。紫外线诱变在产黄原胶中具有一定的优势,如提高产胶量、操作简便、成本较低等。然而,其诱变效果不稳定、可能产生有害突变、诱变效率较低等问题需在实际应用中加以考虑和优化[38-39]。有研究对黄原胶生产菌株进行紫外诱变,成功筛选出3株高产菌株,其黄原胶相对提取率分别达155.6%、146.8%、142.5%,黄原胶产量显著提升[40-41]。有研究表明以X. campestris为出发菌株,采用紫外线诱变以及化学诱变筛选后,获得的突变株黄原胶滴度达3.12 g/L,较出发菌株提升20%;黏度达1 896 mPa·s,提升104.63%,表明采用复合诱变可以有效提高产量[42-43]。亚硝酸诱变是一种利用亚硝酸对微生物或植物进行遗传改造的方法,通过脱氨反应改变DNA或RNA的碱基序列,从而引起遗传性状的改变[44]。亚硝酸诱变在黄原胶生产中,能有效提高产胶率,诱变效率高且操作简便;但存在诱变效果不确定、可能降低菌株遗传稳定性,还可能影响菌株代谢与黄原胶理化性质[45]。有研究以黄单胞菌为出发菌株,在250 mmol/L亚硝酸、处理40 min的最优条件下,筛选得到的突变株黄原胶滴度达2.35 g/L,较出发菌株提升9.3%。微波诱变是一种利用微波辐射对微生物进行物理诱变的育种技术,辐射作用于微生物细胞,引起DNA损伤或基因突变,改变其遗传特性[46]。重离子诱变是一种利用高能重离子束对生物体进行辐射处理,从而诱发基因突变的技术[47]。重离子诱变在黄原胶生产菌株选育方面具有诱变效率高、育种周期短、可定向诱变等优势,但也存在诱变机制复杂、诱变效果不稳定、成本较高等不足。
在黄原胶生产菌种选育过程中,首要步骤是筛选出发菌株,应挑选具备较高黄原胶生产潜力的菌株。确定出发菌株后进行出发菌株的活化与培养,将保存的野生型黄原胶生产菌接种至液体培养基,置于摇床中30 ℃振荡培养24 h。将活化后的菌液离心收集菌体,用生理盐水洗涤3次后重悬,调整OD600值至0.8~1.0制备均匀菌悬液。采用重离子辐照技术对其处理,将菌悬液置于重离子辐照装置中,设置特定剂量进行诱变处理,同时设置未辐照对照组。辐照结束后,将样品从辐照腔室中取出,迅速将菌悬液转移至含有适量液体培养基的无菌试管中,使菌体在培养基中复苏和增殖。采用10倍稀释法对菌悬液进行梯度稀释,制备一系列不同稀释度的菌液。将不同稀释度的菌液分别涂布在含有特定筛选标记的固体培养基平板上,选择菌落直径大于对照组、边缘规则、黏稠度高的单菌落,将这些疑似高产菌株转接至斜面培养基上,进行纯化培养,以备后续进一步筛选。将初筛得到的菌株分别接种至装有液体发酵培养基的摇瓶中,进行发酵。发酵结束后,对发酵液进行处理,采用合适的方法测定黄原胶的产量和品质指标,如黏度、分子质量等。根据测定结果,挑选出黄原胶产量和品质显著优于出发菌株的菌株,这些菌株即为经过复筛得到的潜在高产黄原胶菌株。最后,对优化后的高产菌株开展长期稳定性验证实验,确认其性能稳定后,便可将其应用于工业生产中,实现黄原胶的高效生产(图3)。
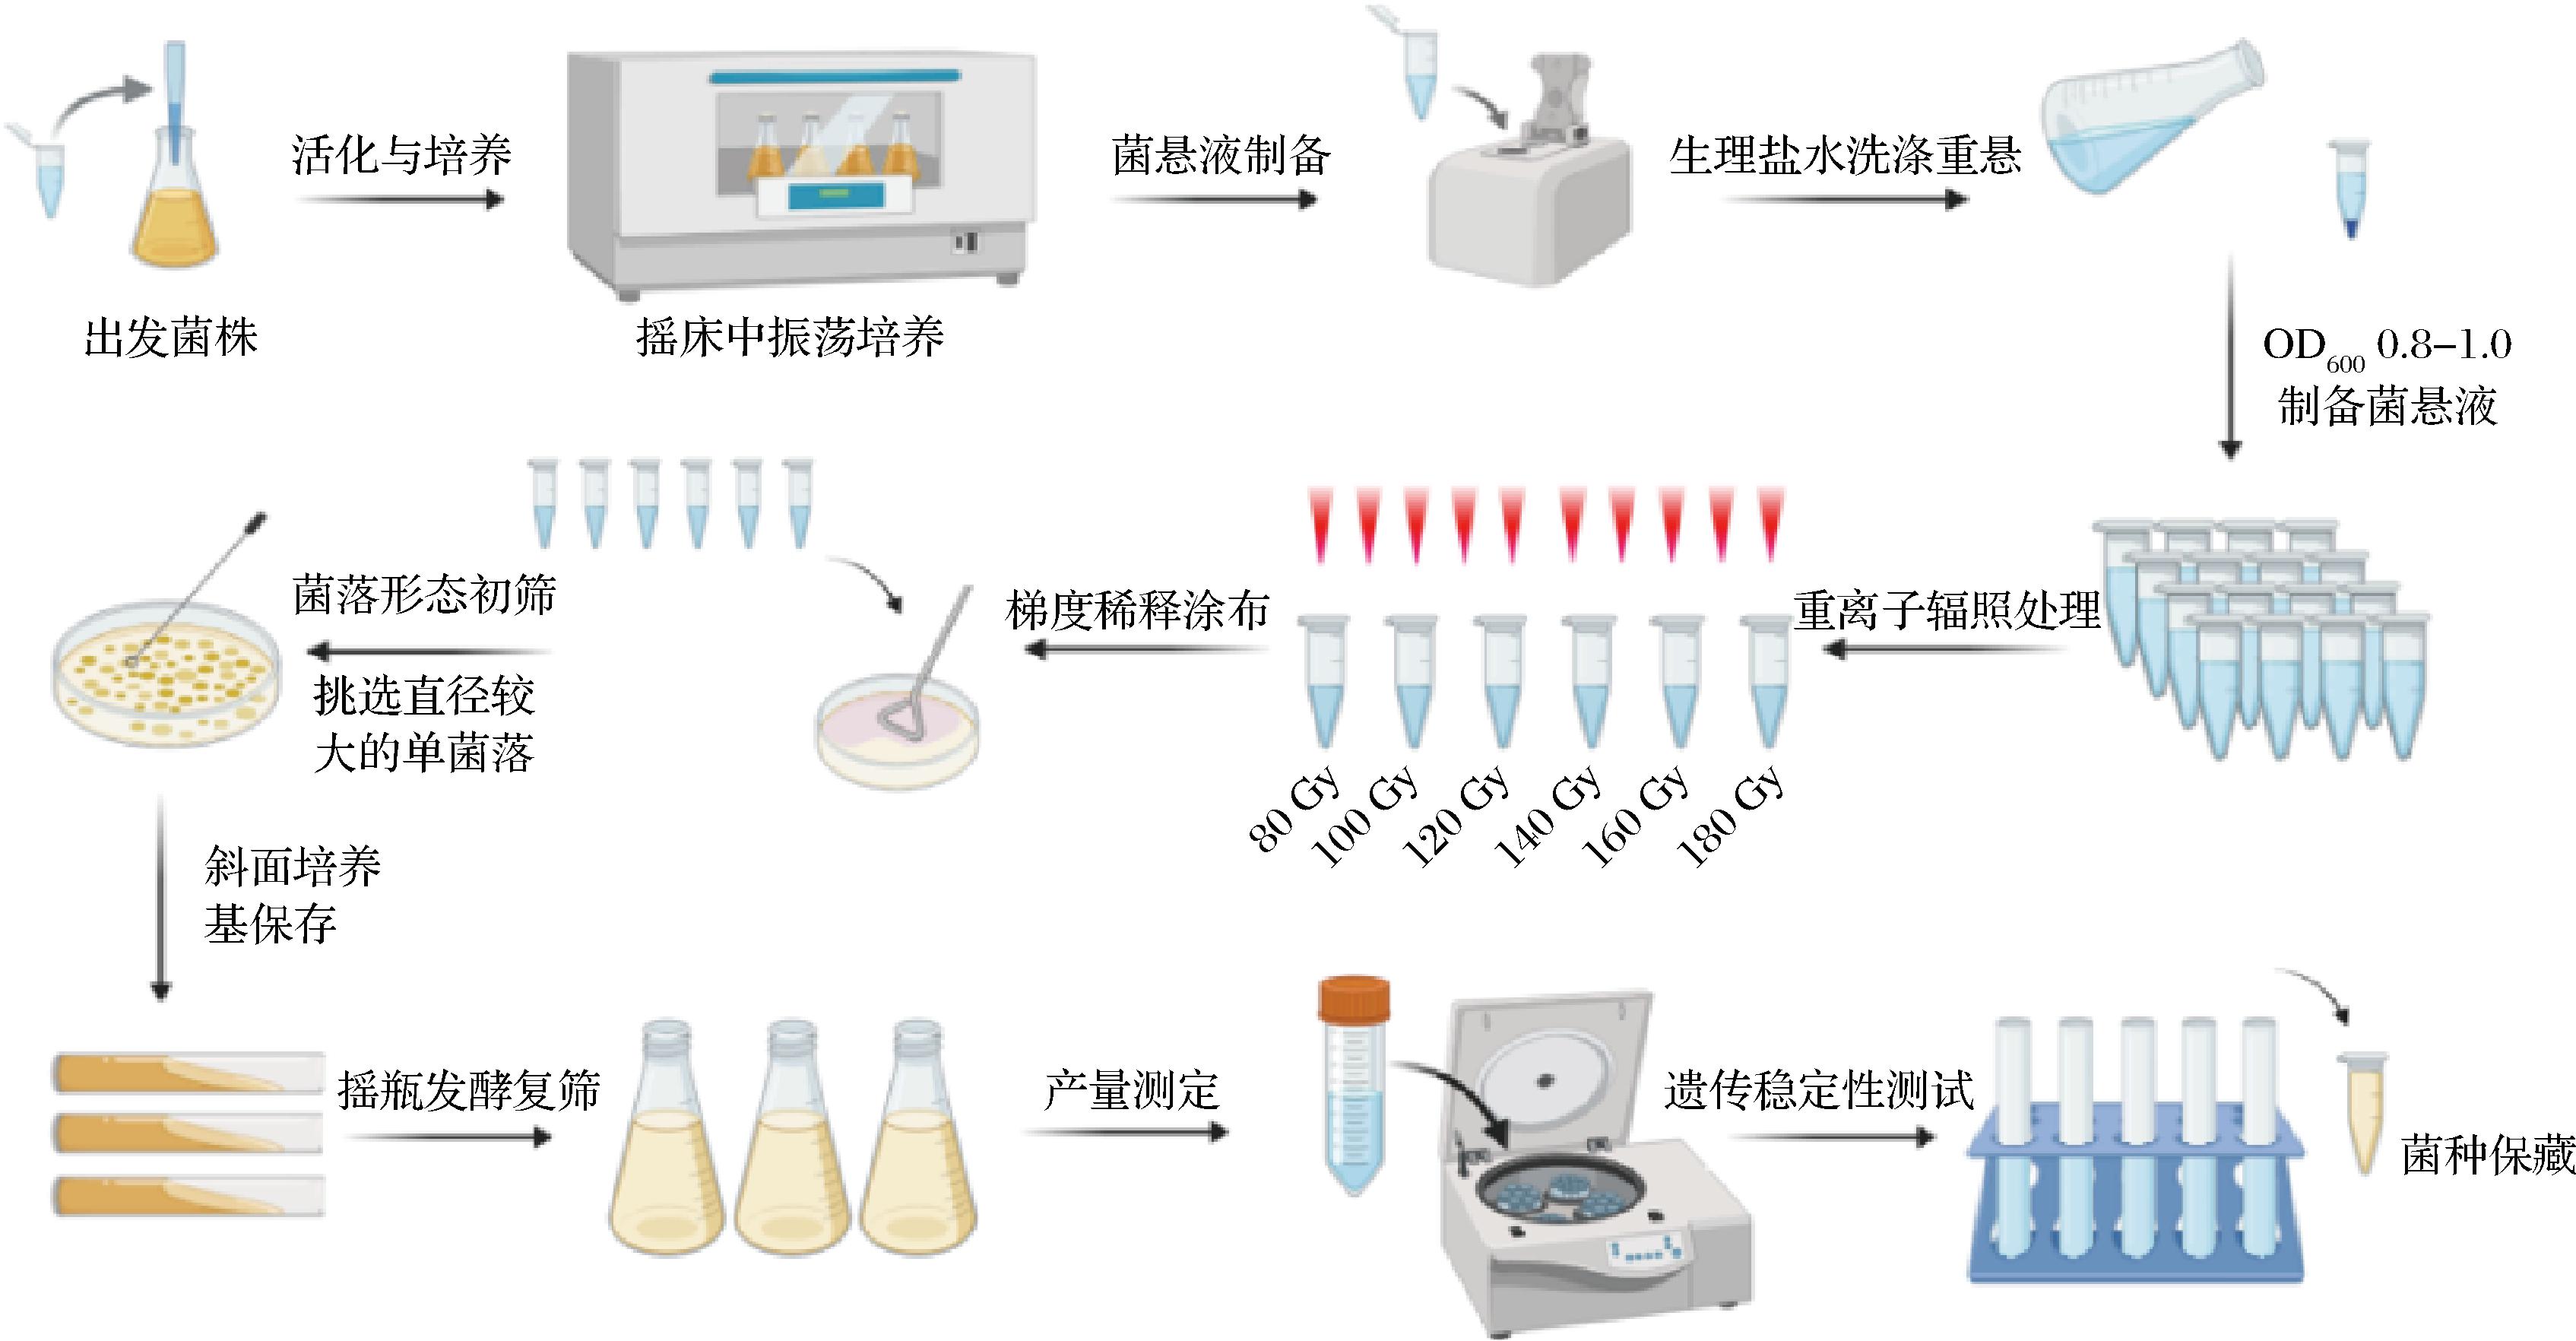
图3 高产黄原胶的菌株选育流程
Fig.3 Breeding process of high-yield strains
3.2.2 代谢工程
黄原胶的生物合成是以葡萄糖为起始碳源、由多种酶参与的复杂过程,通过多条代谢分支途径提供前体物质:葡萄糖经glk编码的葡萄糖激酶催化生成葡萄糖-6-磷酸后,一方面经xanA编码的磷酸葡萄糖变位酶催化可转化为葡萄糖-1-磷酸并经galU编码的尿苷二磷酸葡萄糖焦磷酸化酶催化生成UDP-葡萄糖,UDP-葡萄糖在ugd编码的尿苷二磷酸葡萄糖脱氢酶催化下生成UDP-葡萄糖醛酸;另一方面经pgi编码的磷酸葡萄糖异构酶催化生成果糖-6-磷酸,再经xanB编码的磷酸甘露糖异构酶-GDP-甘露糖焦磷酸化酶等酶作用生成甘露糖-6-磷酸,进而在磷酸葡萄糖变位酶、磷酸甘露糖异构酶-GDP-甘露糖焦磷酸化酶的催化下形成GDP-甘露糖等关键前体。这些前体物质是黄原胶分子组装的物质基础。经一系列酶的协同作用,将糖基转移至脂质载体,最终组装成黄原胶分子[48]。其合成受到多重代谢途径的调控,在X. campestris中,Entner-Doudoroff(ED)途径对胞外多糖合成至关重要,该途径关键基因的突变会显著影响胞外多糖产量[49]。同时,群体感应系统通过影响黄原胶合成与细菌间信号转导来优化代谢[50-51]。
黄原胶由X. campestris合成,其生物合成的分子调控涉及多基因、多因子参与的复杂网络,核心是由多糖合成基因簇驱动。其中,gumD、gumH等基因编码的糖基转移酶负责组装五糖重复单元;gumB、gumC参与多糖链的处理与输出;gumF、gumG等负责多糖修饰;其上游启动子区域含有调控蛋白的关键结合位点[52-53](图4)。
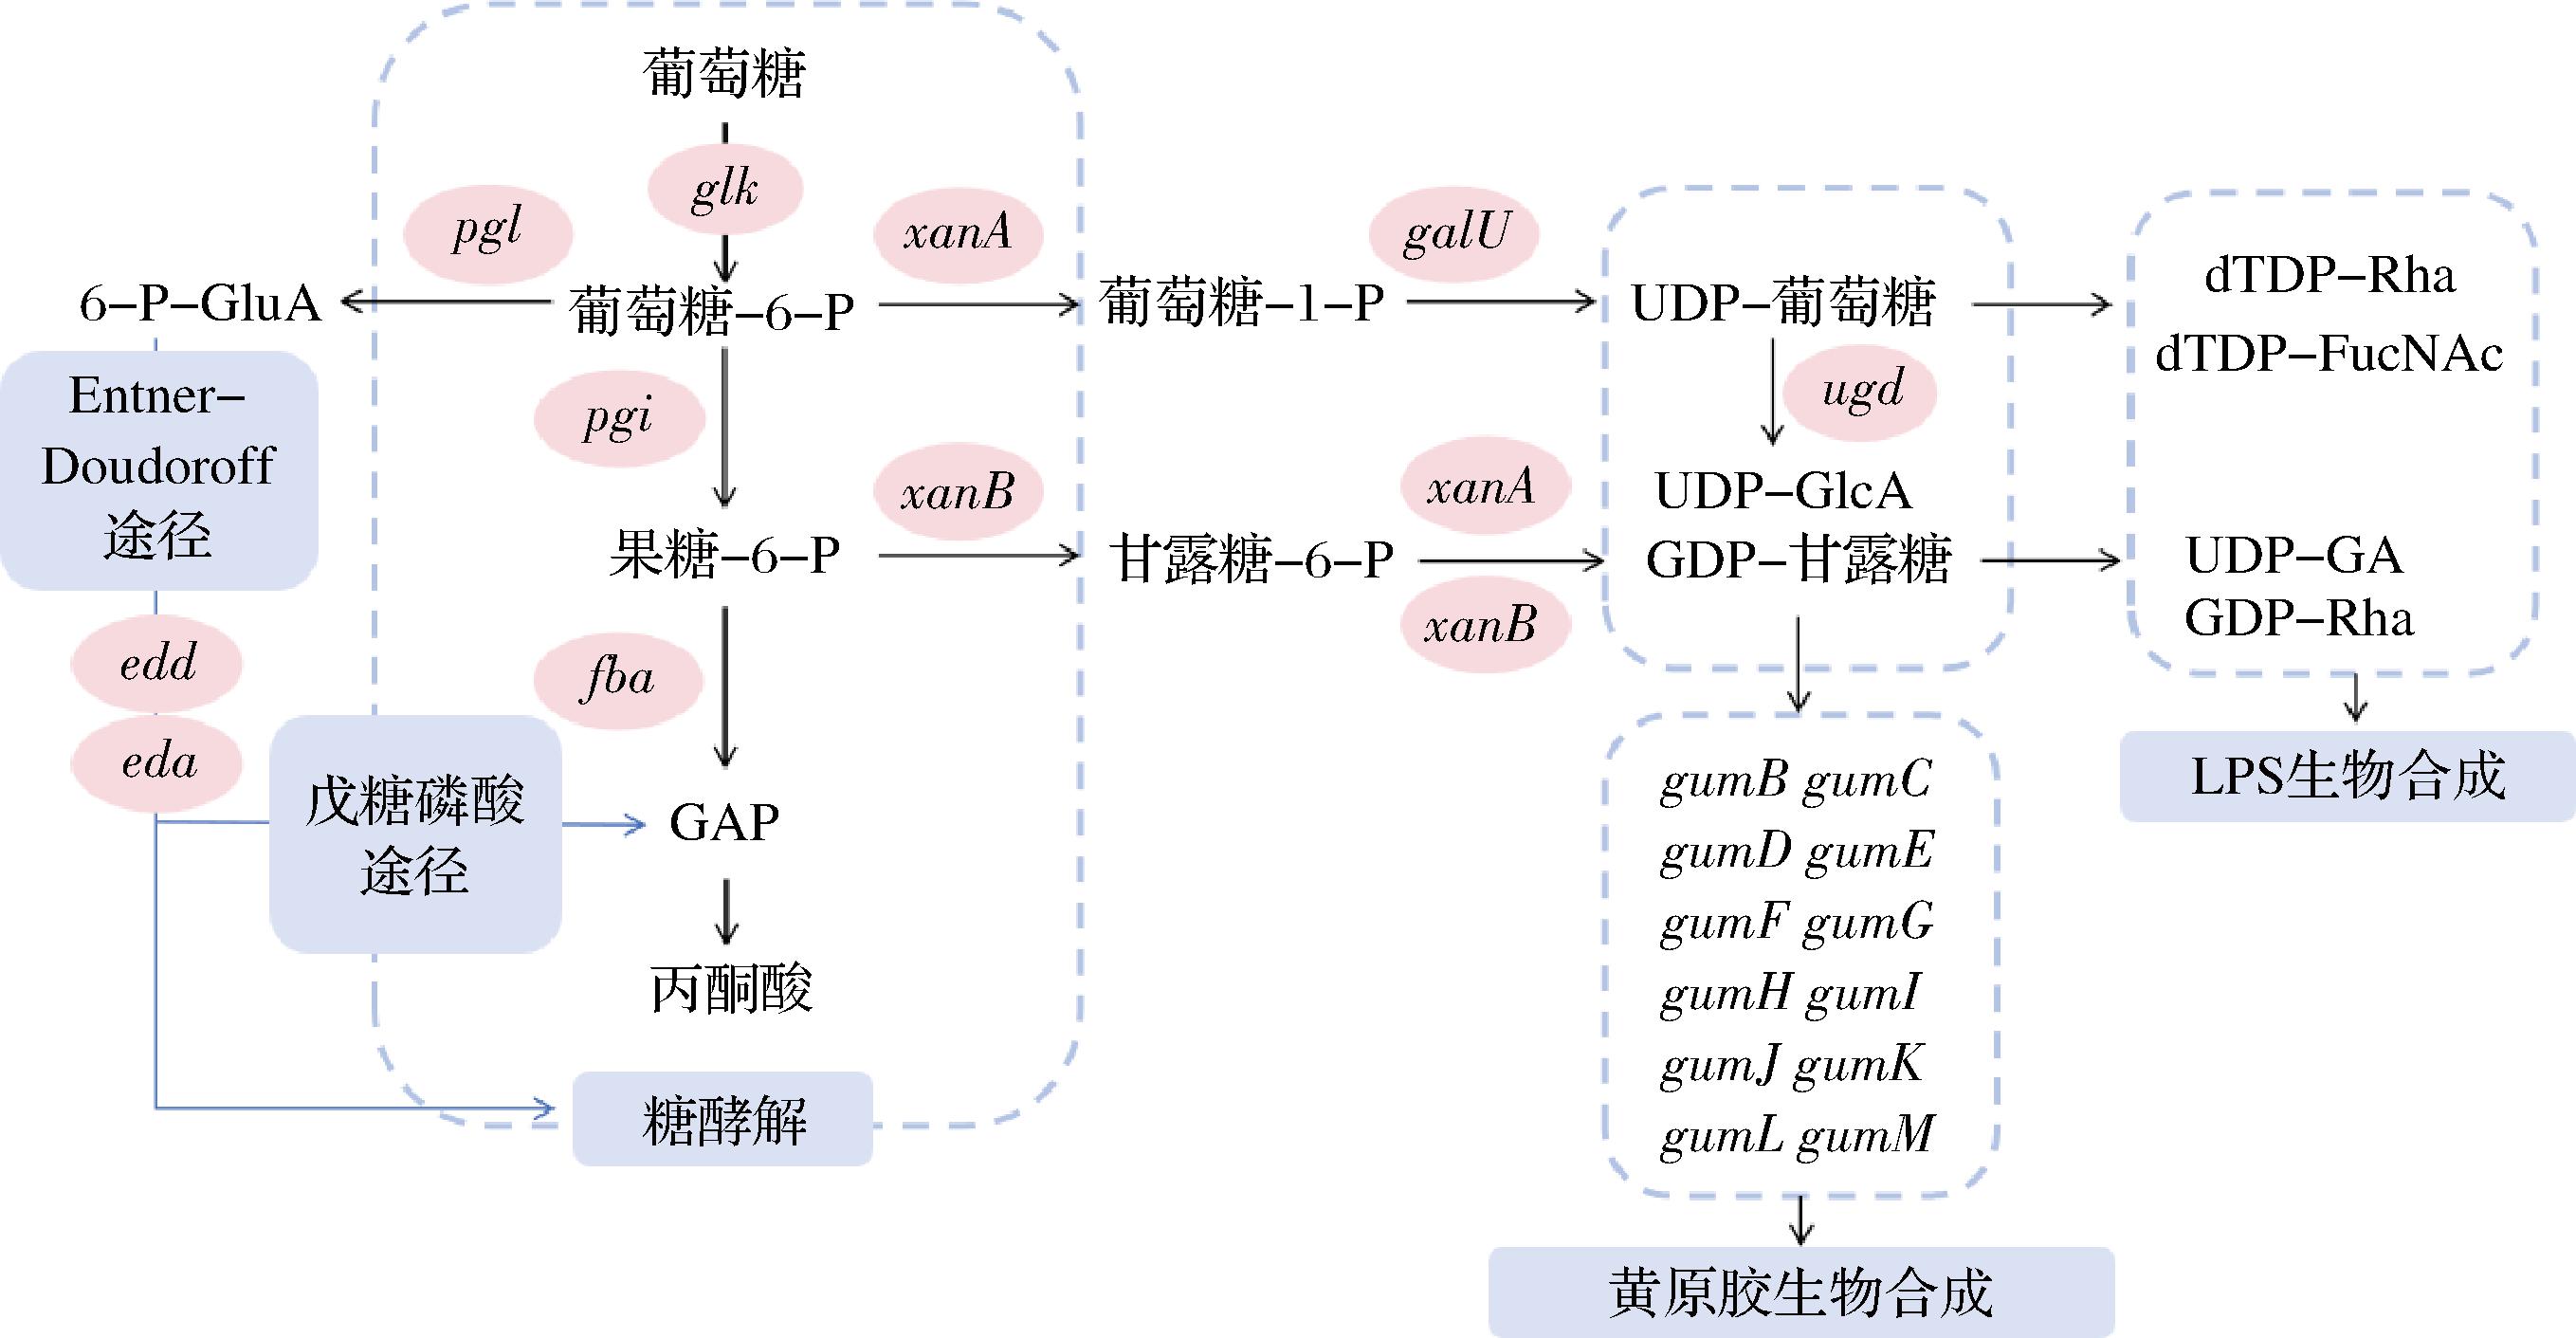
图4 黄原胶代谢路径图
Fig.4 Metabolic pathway map of xanthan gum
注:葡萄糖激酶基因(glk)、磷酸葡萄糖变位酶基因(xanA)、尿苷二磷酸葡萄糖焦磷酸化酶基因(galU)、尿苷二磷酸葡萄糖脱氢酶基因(ugd)、磷酸葡萄糖异构酶基因(pgi)、磷酸甘露糖异构酶-GDP-甘露糖焦磷酸化酶基因(xanB)、6-磷酸葡萄糖酸脱水酶基因(edd)、2-酮-3-脱氧-6-磷酸葡 萄糖酸醛缩酶基因(eda)、果糖二磷酸醛缩酶基因(fba)。
在代谢工程领域,研究主要通过基因工程手段优化代谢途径,涵盖关键基因过表达与黄原胶滴度性能优化、代谢网络改造与前体物质强化、工业化高产菌株构建与工艺适配等方向。例如,gumB与gumC的协同过表达可减少gumC降解,使黄原胶链长延长,低剪切速率黏度较对照提升3.5倍,明确了二者对产物性能的调控作用。针对X. campestris的关键功能基因进行调控,相关研究已取得显著突破,有研究在X. campestris Xc58中过表达gumD基因后,黄原胶滴度提高11.19%,平均分子质量提升20.21%,乙酰基含量增加77.07%,验证了gumD作为糖基转移酶基因对黄原胶滴度与品质的优化效果[54],为靶向调控黄原胶合成的糖基化修饰过程提供了直接依据。除糖基转移酶相关基因外,黄原胶合成途径中的其他功能基因改造的成效同样显著,以X. campestris Xc58为出发菌株构建高表达gumBC基因的重组菌株X. campestris X58-BC,黄原胶黏度提高62%,剪切性能提高57%[55],证实gumBC基因对黄原胶流体力学特性的调控价值,为满足石油开采、食品增稠等不同场景对高黏度黄原胶的需求提供了菌株改造方案参考。在优化滴度与功能的基础上,工业级黄原胶的色泽与纯度问题也通过基因工程手段得到解决。研究人员通过改造群体感应系统与菌黄素合成途径,获得工程菌株,在5 L发酵罐中滴度达27.44 g/L,同时发酵液呈白色,有效突破了传统工业产品色泽不均、纯度不足的技术瓶颈,为黄原胶的工业化精制与高附加值应用奠定了重要基础。
4 黄原胶发酵工艺
发酵工艺是一个复杂的过程,涉及菌株选择、培养基优化、发酵条件控制以及补料策略等多个环节。
4.1 菌株选择与改良
发酵黄原胶的关键在于选择高效的X. campestris菌株,不同菌株对碳源的利用效率和黄原胶的产量存在显著差异[58]。为了提高黄原胶的生产效率,常通过诱变育种对菌株进行改良,有研究通过乙基甲烷磺酸盐(ethyl methanesulfonate,EMS)处理X. campestris,筛选出淀粉酶高表达的突变株Xc-M,该突变株在以生木薯淀粉为碳源的培养基中发酵时,黄原胶滴度有所提高,达到4.31 g/L[59]。也有研究通过适应性进化对菌株进行改良,可以使菌株更好地适应特定的生长环境或利用新的碳源。例如,通过适应性进化获得了能够利用甘油生产高透明度、低黏度黄原胶的X. campestris CCTCC M2015714突变株,其黄原胶滴度达到11.0 g/L[31]。同时,通过基因编辑技术改造菌株代谢途径,增强关键酶活性或阻断副产物的形成,也可提高黄原胶的合成效率并调控其分子结构[31]。
4.2 培养基优化
培养基的组成对黄原胶的产量和品质至关重要,碳源、氮源和无机盐是培养基中的主要组分[60]。碳源是黄原胶合成的主要底物,其成本约占生产成本的1/3[58]。常用的碳源包括葡萄糖、蔗糖等。为了降低成本,有研究探索了使用廉价且可持续的农业废弃物作为碳源,例如玉米芯、木薯淀粉、麦芽糖和乳糖等[61-62];硫酸铵、硝酸钠、玉米浆、酵母提取物、蛋白胨等均可作为氮源,氮源的种类和浓度会影响菌体生长和黄原胶合成[60]。磷酸氢二钾、硫酸镁等无机盐对菌体生长和酶活性至关重要。
4.3 发酵条件控制
发酵过程中的环境参数对黄原胶的产量和品质有显著影响,主要包括温度、pH值、搅拌速度和溶解氧水平[60]。杨譞等[60]研究发现X. campestris在30 ℃条件下发酵时黄原胶产量最佳;菌株偏好中性或弱酸性环境,需稳定控制pH值以保障菌株生长与产胶,当搅拌速度在180 r/min时产量最优,搅拌速度过高则易造成菌体剪切损伤、增加培养基黏度并阻碍氧传递。
4.4 补料策略
补料分批发酵是提升黄原胶产量与黏度的有效策略,核心在于发酵后期补加碳源,以此延长发酵周期、维持菌体代谢活性[54]。补料时间与浓度需精准调控,有研究发现在初始糖质量浓度40 g/L的条件下,发酵24 h后补加20 g/L的糖可显著提升黄原胶滴度,盲目增加补料量或采用多次补料方式,未必能持续改善产胶效果[56]。补料方式分为恒速补料与动态补料两类,后者可根据发酵进程实时调整补料速率,可将底物浓度维持在最优区间,保障产胶效率稳定。
4.5 黄原胶的提取与纯化
黄原胶的提取与纯化是获取合格产品的关键环节,核心流程依次为离心分离、醇沉淀、干燥及精制纯化。首先通过离心去除发酵液中的菌体与不溶性杂质;随后加入乙醇或异丙醇使黄原胶沉淀析出;沉淀经真空干燥或喷雾干燥制成粉末产品。为提升产品纯度,可进一步采用复溶、再沉淀、过滤等精制步骤[60]。X. campestris发酵生产黄原胶的核心技术体系涵盖菌株选育改良、培养基组分优化、发酵参数调控、补料策略优化及产物提取纯化5个关键环节。通过多环节协同优化,可实现黄原胶产量与品质的同步提升,为工业化高效生产提供理论支撑与技术参考。
5 应用前景
黄原胶是X. campestris以碳水化合物为主要碳源,通过发酵工艺生产的微生物胞外多糖,可作为增稠剂、悬浮剂、乳化剂、稳定剂,广泛应用于许多领域且具有良好的发展前景。首先,在食品工业中,黄原胶良好的增稠性和稳定性使其成为改善食品口感和质地的理想选择。例如,在高蛋白质含量的卤肉酱中促进凝胶结构形成,提高乳化稳定性;应用于冰淇淋时可减慢融化速度并使口感更加细腻[62];添加至饮料中则能稳定体系,并可与其他添加剂复配提升饮品口感[63]。此外,黄原胶还广泛用于沙拉、乳制品、面包等多种食品中,以达到增稠、稳定及改善口感的效果[64]。在日用品领域,黄原胶作为化妆品中的增稠剂、分散剂等,能够改善产品质地、触感,并具有保湿作用[65]。在洗涤剂和皮鞋上光剂等产品中,可利用其触变性提高稳定性,实现更好的去污效果[66]。在医药领域中,黄原胶可作为固体制剂的辅料起到黏合、崩解等作用[67],还在治疗骨关节炎方面显示出潜力[68]。在纺织工业领域中,黄原胶被用作碳纤维制备、涂料等方面的悬浮稳定剂以及柔软剂。在石油工业中[69],低浓度黄原胶水溶液可以有效控制钻井液的流变性能,避免井壁坍塌。在农药领域中,黄原胶作为稳定剂和悬浮助剂,保证了农药制剂在贮存和使用过程中的稳定悬浮状态,提高了农药的均匀性和有效性[70]。宠物食品行业同样受益于黄原胶的应用,特别是在湿粮罐头中,它能够改善湿粮的口感并保持肉制品的水分和稳定性[71](图5)。
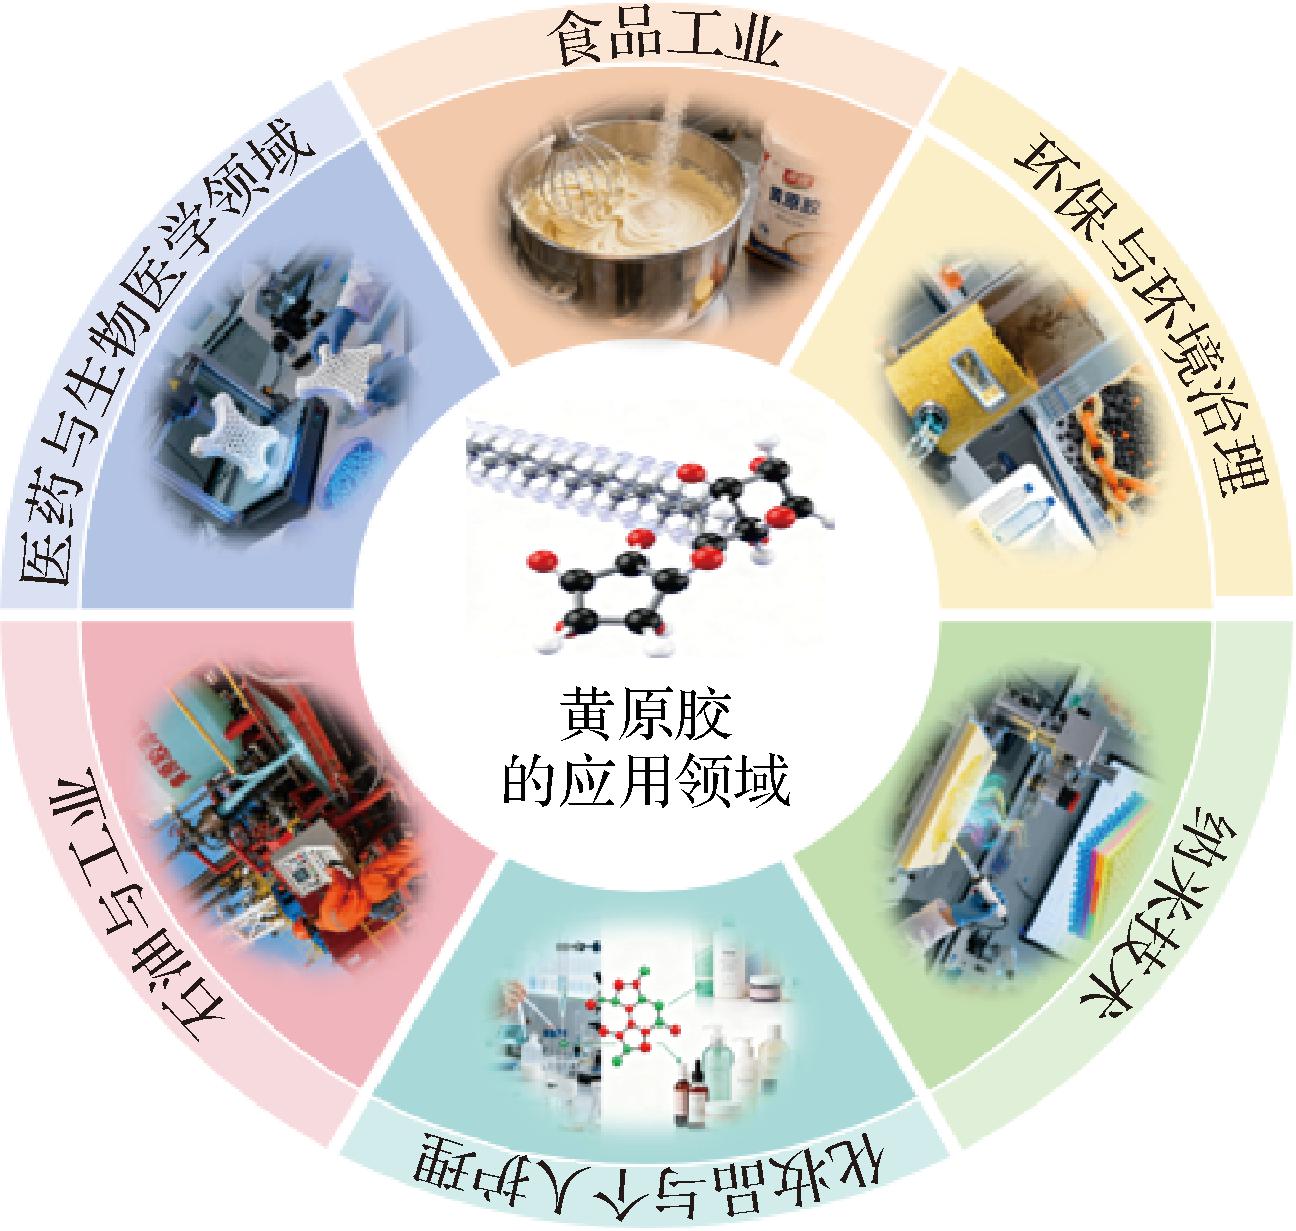
图5 黄原胶应用领域
Fig.5 Application fields of xanthan gum
随着全球经济的发展和生活水平的提高,黄原胶的应用需求持续增长。消费者对高品质、功能性食品的需求不断增长,促使黄原胶在满足食品企业对产品品质和口感要求方面扮演更重要的角色[72]。同时,科技进步推动了黄原胶新用途的开发,尤其是在生物医学工程领域的组织工程和药物缓释载体方面的应用研究逐渐深入。黄原胶作为一种生物可降解的天然高分子材料,相比合成材料更环保,符合全球对环境保护重视的趋势。政府对生物产业的支持也为黄原胶产业的发展提供了良好的政策环境,进一步促进了市场需求的增长。
总之,黄原胶以其独特的理化性质和广泛的适用性,在食品、日用品、医药、纺织、石油、农药及宠物食品等多个领域展现了广阔的应用前景和发展潜力。未来,随着技术进步和市场需求的变化,黄原胶有望在更多新兴领域得到应用,为各行业的创新发展贡献力量。
6 总结与展望
黄原胶,作为一种极具价值的微生物胞外多糖,凭借其独特的理化性质,在食品、医药、化工等多个关键领域得到广泛应用。在食品工业中,黄原胶可作为增稠剂、乳化剂和稳定剂,显著改善食品的质地和口感,延长食品的保质期,被广泛应用于饮料、烘焙食品和乳制品等产品的生产。在医药领域,黄原胶因具有良好的生物相容性和低毒性,常被用于制备药物载体、缓释制剂,为药物精准高效地发挥作用提供保障。在化工领域,黄原胶被用于石油开采、涂料制造等,有效提高产品的性能和质量。随着相关产业的迅速发展,市场对黄原胶的需求持续攀升,传统生产方式在产量和生产成本方面难以满足市场需求。因此,提高黄原胶产量、降低生产成本,是推动黄原胶工业化大规模生产的关键所在,这不仅有助于满足市场对黄原胶日益增长的需求,还能为相关产业源源不断地提供高质量、价格合理的原料,增强产业竞争力。因此,筛选和构建黄原胶高产的菌株,是实现工业化生产中黄原胶高效产出的重要路径。通过筛选和培育黄原胶高产菌株,能够大幅提升黄原胶的工业化生产水平,助力相关产业实现高质量、可持续发展。本综述虽覆盖多维度策略,但对不同工艺与菌株改造策略间的协同效应、实际规模化生产中环境扰动的动态调控机制解析不足;未来可聚焦多策略耦合的量化模型构建与工业场景下的适配性验证,进一步缩短实验室成果向产业化应用的转化周期。
[1] Harding N E, Cleary J M, Caba as D K, et al. Genetic and physical analyses of a cluster of genes essential for xanthan gum biosynthesis in Xanthomonas campestris[J]. Journal of Bacteriology, 1987, 169(6):2854-2861.
[2] Margaritis A, Zajic J E. Mixing, mass transfer, and scale-up of polysaccharide fermentations[J]. Biotechnology and Bioengineering, 1978, 20(7):939-1001.
[3] Berezina O V, Rykov S V, Schwarz W H, et al. Xanthan: Enzymatic degradation and novel perspectives of applications[J]. Applied Microbiology and Biotechnology, 2024, 108(1):227.
[4] Wu M M, Shi Z Z, Ming Y, et al. Thermostable and rheological properties of natural and genetically engineered xanthan gums in different solutions at high temperature[J]. International Journal of Biological Macromolecules, 2021, 182:1208-1217.
[5] Kumar A, Rao K M, Han S S. Application of xanthan gum as polysaccharide in tissue engineering: A review[J]. Carbohydrate Polymers, 2018, 180:128-144.
[6] Moravej R, Azin M, Mohammadjavad S. The importance of acetate, pyruvate, and citrate feeding times in improving xanthan production by Xanthomonas citri[J]. Letters in Applied Microbiology, 2024, 77(9): ovae078.
[7] Riaz T, Iqbal M W, Jiang B, et al. A review of the enzymatic, physical, and chemical modification techniques of xanthan gum[J]. International Journal of Biological Macromolecules, 2021, 186:472-489.
[8] García-Ochoa F, Santos V E, Casas J A, et al. Xanthan gum: Production, recovery, and properties[J]. Biotechnology Advances, 2000, 18(7):549-579.
[9] Kennedy J R M, Kent K E, Brown J R. Rheology of dispersions of xanthan gum, locust bean gum and mixed biopolymer gel with silicon dioxide nanoparticles[J]. Materials Science and Engineering: C, 2015, 48:347-353.
[10] Jansson P E, Kenne L, Lindberg B. Structure of the extracellular polysaccharide from Xanthomonas campestris[J]. Carbohydrate Research, 1975, 45(1):275-282.
[11] Palaniraj A, Jayaraman V. Production, recovery and applications of xanthan gum by Xanthomonas campestris[J]. Journal of Food Engineering, 2011, 106(1):1-12.
[12] Cortes H, Caballero-Florán I H, Mendoza-Muoz N, et al. Xanthan gum in drug release[J]. Cellular and Molecular Biology, 2020, 66(4):199-207.
[13] Oh S, Kim D Y. Characterization, antioxidant activities, and functional properties of mucilage extracted from Corchorus olitorius L[J]. Polymers, 2022, 14(12):2488.
[14] Yuan S, Liang J Y, Zhang Y M, et al. Evidence from thermal aging indicating that the synergistic effect of glyoxal and sodium sulfite improved the thermal stability of conformational modified xanthan gum[J]. Polymers, 2022, 14(2):243.
[15] Jadav M, Pooja D, Adams D J, et al. Advances in xanthan gum-based systems for the delivery of therapeutic agents[J]. Pharmaceutics, 2023, 15(2):402.
[16] Kumar P, Kumar B, Gihar S, et al. Review on emerging trends and challenges in the modification of xanthan gum for various applications[J]. Carbohydrate Research, 2024, 538:109070.
[17] Badwaik H, Sakure K, Nakhate K, et al. Microwave assisted eco-friendly synthesis, characterization and in vitro release behavior of carboxymethyl xanthan gum[J]. Current Microwave Chemistry, 2016, 3(3):203-211.
[18] Demirci A S, Palabiyik I, Apayd n D, et al. Xanthan gum biosynthesis using Xanthomonas isolates from waste bread: Process optimization and fermentation kinetics[J]. LWT, 2019, 101:40-47.
[19] Rajyaguru B, Varma A, Kharkwal A, et al. Biosynthesis of xanthan gum by Xanthomonas campestris using cane molasses as a carbon source[J]. Nature Environment and Pollution Technology, 2021, 20(5): 2017-2021.
[20] Picchi S C, Granato L M, Franzini M J F, et al. Modified monosaccharides content of xanthan gum impairs citrus canker disease by affecting the epiphytic lifestyle of Xanthomonas citri subsp. citri[J]. Microorganisms, 2021, 9(6):1176.
[21] Rashidi A R, Dailin D J, El-Enshasy H. Employment of liquid pineapple waste for the production of xanthan gum using Xanthomonas campestris ATCC 13951[J]. AIP Conference Proceedings, 2024, 2934(1):6.
[22] 涂媛, 金显, 蔡俊. 复合诱变选育虾青素高产菌株及发酵条件优化[J]. 中国酿造, 2023, 42(5):91-96.Tu Y, Jin X, Cai J. Breeding of high-yield astaxanthin strain by compound mutation and fermentation condition optimization[J]. China Brewing, 2023, 42(5):91-96.
[23] Zhou X W, Su K Q, Zhang Y M. Applied modern biotechnology for cultivation of Ganoderma and development of their products[J]. Applied Microbiology and Biotechnology, 2012, 93(3):941-963.
[24] Barua R, Alam M J, Salim M, et al. Small scale production and characterization of xanthan gum synthesized by local isolates of Xanthomonas campestris[J]. Indian Journal of Experimental Biology, 2016, 54(2):151-155.
[25] Wang Z C, Wu J R, Gao M J, et al. High production of xanthan gum by a glycerol-tolerant strain Xanthomonas campestris WXLB-006[J]. Preparative Biochemistry &Biotechnology, 2017, 47(5):468-472.
[26] Brandão L V, Assis D J, López J A, et al. Bioconversion from crude glycerin by Xanthomonas campestris 2103: Xanthan production and characterization[J]. Brazilian Journal of Chemical Engineering, 2013, 30(4):737-746.
[27] Berninger T, Dietz N, González López  . Water-soluble polymers in agriculture: Xanthan gum as eco-friendly alternative to synthetics[J]. Microbial Biotechnology, 2021, 14(5):1881-1896.
[28] Borowski J M, Macagnan K L, Alves M I, et al. Long term classical methods for the preservation of xanthan gum-producing-Xanthomonas arboricola pathovar pruni strains[J]. Colloquium Agrariae, 2023, 19(1):226-245.
[29] Harding N E, Raffo S, Raimondi A, et al. Identification, genetic and biochemical analysis of genes involved in synthesis of sugar nucleotide precursors of xanthan gum[J]. Journal of General Microbiology, 1993, 139(3):447-457.
[30] Asase R, Seredovich D, Selezneva I, et al. Xanthan gum production using Xanthomonas campestris B6720: Fermentation process and application in fermented soymilk[J]. BIO Web of Conferences, 2024, 121:01005.
[31] Wang Z C, Wu J R, Zhu L, et al. Activation of glycerol metabolism in Xanthomonas campestris by adaptive evolution to produce a high-transparency and low-viscosity xanthan gum from glycerol[J]. Bioresource Technology, 2016, 211:390-397.
[32] Song K, Li R F, Cui Y, et al. The phytopathogen Xanthomonas campestris senses and effluxes salicylic acid via a sensor HepR and an RND family efflux pump to promote virulence in host plants[J]. mLife, 2024, 3(3):430-444.
[33] Lo H H, Liao C T, Li C E, et al. SsrA and SmpB have multifaceted physiological roles in the black rot pathogen Xanthomonas campestris pathovar campestris[J]. FEMS Microbiology Letters, 2023, 370: fnad009.
[34] Luo J X, Huang G Q, Zheng M J, et al. Atmospheric and room temperature plasma mutagenesis of Graesiella emersonii for enhanced protein production using methanol as novel carbon source[J]. Bioresource Technology, 2025, 435:132880.
[35] 蔡友华, 李文锋, 卢伟宁, 等. 新型常压室温等离子体 (ARTP) 快速诱变高产苏氨酸的突变株[J]. 现代食品科技, 2013, 29(8): 1888-1892.Cai Y H, Li W F, Lu W N, et al. A mutant strain with high threonine yield obtained by rapid mutation using novel atmospheric and room temperature plasmas[J]. Modern Food Science and Technology, 2013, 29(8): 1888-1892.
[36] Gan C D, Wang H, Gou M, et al. Enhancement mechanism of xanthan gum production in Xanthomonas campestris induced by atmospheric and room-temperature plasma (ARTP) mutagenesis[J]. International Journal of Biological Macromolecules, 2024, 283:137628.
[37] Dashtban M, Schraft H, Qin W S. Fungal bioconversion of lignocellulosic residues: Opportunities &perspectives[J]. International Journal of Biological Sciences, 2009, 5(6):578-595.
[38] Zia M A, Rasul S, Iftikhar T. Effect of gamma irradiation on Aspergillus niger for enhanced production of glucose oxidase[J]. Pakistan Journal of Botany, 2012, 44(5):1575-1580.
[39] Yamada R, Kashihara T, Ogino H. Improvement of lipid production by the oleaginous yeast Rhodosporidium toruloides through UV mutagenesis[J]. World Journal of Microbiology and Biotechnology, 2017, 33(5):99.
[40] Farooq S A, Khaliq S, Ahmad S, et al. Application of combined irradiation mutagenesis technique for hyperproduction of surfactin in Bacillus velezensis strain AF3B[J]. International Journal of Microbiology, 2025, 2025:5570585.
[41] Wang X Y, Shen R Y, Xu S M, et al. Mutagenesis engineering reveals multiple catabolic pathways of xanthan[J]. Journal of Agricultural and Food Chemistry, 2025, 73(51):32762-32774.
[42] Velu S, Velayutham V, Manickkam S. Optimization of fermentation media for xanthan gum production from Xanthomonas campestris using response surface methodology and artificial neural network techniques[J]. Indian Journal of Chemical Technology, 2016, 23:353-361.
[43] 古丽·艾合买提, 穆斯塔帕. 两种诱变方法对黄原胶粘度及产胶率的影响[J]. 新疆农业科学, 2006, 43(4):341-343.Guri A, Mustap. Effect of two mutation breeding methods on viscosity and yielding rate of xanthan gum[J]. Xinjiang Agricultural Sciences, 2006, 43(4):341-343.
[44] Siddiqi O H. Mutagenic action of nitrous acid on Aspergillus nidulans[J]. Genetical Research, 1962, 3(2):303-314.
[45] Weiss B. Evidence for mutagenesis by nitric oxide during nitrate metabolism in Escherichia coli[J]. Journal of Bacteriology, 2006, 188(3):829-833.
[46] Yesankar P J, Patil A, Kapley A, et al. Catalytic resilience of multicomponent aromatic ring-hydroxylating dioxygenases in Pseudomonas for degradation of polycyclic aromatic hydrocarbons[J]. World Journal of Microbiology and Biotechnology, 2023, 39(7):166.
[47] Hu W, Li W J, Chen H, et al. Changes in transcript levels of starch hydrolysis genes and raising citric acid production via carbon ion irradiation mutagenesis of Aspergillus niger[J]. PLoS One, 2017, 12(6): e0180120.
[48] Struck B, Wiersma S J, Ortseifen V, et al. Comprehensive proteome profiling of a Xanthomonas campestris pv. Campestris B100 culture grown in minimal medium with a specific focus on nutrient consumption and xanthan biosynthesis[J]. Proteomes, 2024, 12(2):12.
[49] Schatschneider S, Huber C, Neuweger H, et al. Metabolic flux pattern of glucose utilization by Xanthomonas campestris pv. Campestris: Prevalent role of the Entner-Doudoroff pathway and minor fluxes through the pentose phosphate pathway and glycolysis[J]. Molecular BioSystems, 2014, 10(10):2663-2676.
[50] Crugeira P J L, Almeida H H S, Marcet I, et al. Biosynthesis of antioxidant xanthan gum by Xanthomonas campestris using substrates added with moist olive pomace[J]. Food and Bioproducts Processing, 2023, 141:210-218.
[51] He Y W, Zhang L H. Quorum sensing and virulence regulation in Xanthomonas campestris[J]. FEMS Microbiology Reviews, 2008, 32(5):842-857.
[52] Alkhateeb R S, Vorhölter F J, Rückert C, et al. Genome wide transcription start sites analysis of Xanthomonas campestris pv. Campestris B100 with insights into the gum gene cluster directing the biosynthesis of the exopolysaccharide xanthan[J]. Journal of Biotechnology, 2016, 225:18-28.
[53] Galván E M, Ielmini M V, Patel Y N, et al. Xanthan chain length is modulated by increasing the availability of the polysaccharide copolymerase protein GumC and the outer membrane polysaccharide export protein GumB[J]. Glycobiology, 2013, 23(2):259-272.
[54] Oliveira D B, Kundlastsch G E, Cruz R D, et al. Xanthan gum production in Xanthomonas campestris is increased by favoring the biosynthesis of its monomers[J]. Bioresource Technology, 2025, 416:131808.
[55] Nejadmansouri M, Shad E, Razmjooei M, et al. Production of xanthan gum using immobilized Xanthomonas campestris cells: Effects of support type[J]. Biochemical Engineering Journal, 2020, 157:107554.
[56] 王寿权, 杜金锁, 赵兴春, 等. 黄原胶分批发酵过程中补加碳源的研究[J]. 食品工业科技, 2010, 31(9):168-170.Wang S Q, Du J S, Zhao X C, et al. Study on production of xanthan gum by adding carbon sources during batch fermentation[J]. Science and Technology of Food Industry, 2010, 31(9):168-170.
[57] 孙轶男, 李源, 王娟, 等. 葡萄糖/木糖混合发酵产乳酸过程调控研究[J]. 内蒙古工业大学学报(自然科学版), 2024, 43(3):219-223.Sun Y N, Li Y, Wang J, et al. Regulation of mixed glucose/xylose fermentation for L-lactic acid production[J]. Journal of Inner Mongolia University of Technology (Natural Science Edition), 2024, 43(3):219-223.
[58] Jesus M, Mata F, Batista R A, et al. Corncob as carbon source in the production of xanthan gum in different strains Xanthomonas sp[J]. Sustainability, 2023, 15(3):2287.
[59] Kerdsup P, Tantratian S, Sanguandeekul R, et al. Xanthan production by mutant strain of Xanthomonas campestris TISTR 840 in raw cassava starch medium[J]. Food and Bioprocess Technology, 2011, 4(8):1459-1462.
[60] 杨譞, 张学欢, 汪智姝, 等. 黄原胶发酵及提取工艺的优化研究[J]. 食品工业, 2008, 29(6):20-23.Yang X, Zhang X H, Wang Z S, et al. The optimal control of the xanthan gum fermentation and extraction[J]. The Food Industry, 2008, 29(6):20-23.
[61] Niknezhad S V, Asadollahi M A, Zamani A, et al. Production of xanthan gum by Xanthomonas species using starch as carbon source[J]. Minerva Biotecnologica, 2014, 26(3): 191-197.
[62] Ng C K Z, Leng W Q, Lim C H, et al. Physicochemical property characterization, amino acid profiling, and sensory evaluation of plant-based ice cream incorporated with soy, pea, and milk proteins[J]. Journal of Dairy Science, 2024, 107(12):10268-10279.
[63] Liu Y Q, Wu Q Z, Zhang J, et al. Effect of different amphiphilic emulsifiers complexed with xanthan gum on the stability of walnut milk and structural characterization of their complexes[J]. Food Chemistry, 2024, 455:139873.
[64] Duangsai P, Gawborisut S. Instrumental textural properties and sensory acceptability of rehydrated Thai fermented fish dip as affected by addition of Xanthan Gum and modified Tapioca starch[J]. International Journal of Food Properties, 2022, 25(1):105-115.
[65] Nsengiyumva E M, Alexandridis P. Xanthan gum in aqueous solutions: Fundamentals and applications[J]. International Journal of Biological Macromolecules, 2022, 216:583-604.
[66] Rakshit P, Giri T K, Mukherjee K. Research progresses on carboxymethyl xanthan gum: Review of synthesis, physicochemical properties, rheological characterization and applications in drug delivery[J]. International Journal of Biological Macromolecules, 2024, 266:131122.
[67] Surini S, Nizma N, Azizahwati A. Enzymatic degradation of cross-linked excipient matrix of co-processed xanthan gum-amylose and dissolution profile of diclofenac sodium tablet[J]. International Journal of Applied Pharmaceutics, 2017, 9:77.
[68] Jain S, Kaur S, Rathi R, et al. Application of co-processed excipients for developing fast disintegrating tablets: A review[J]. Polymers in Medicine, 2023, 53(1):59-68.
[69] Aleksandrovich Blinov P, Vladimirovich Dvoynikov M. Rheological and filtration parameters of the polymer salt drilling fluids based on xanthan gum[J]. Journal of Engineering and Applied Sciences, 2019, 15(2):694-697.
[70] Dionne A, Khelifi M, Todorova S. Development of an aqueous xanthan-guar gum spray solution suitable for mechanised release of Trichogramma ostriniae (Hymenoptera: Trichogramma) parasitised host eggs[J]. Biocontrol Science and Technology, 2025, 35(9):1003-1025.
[71] Dainton A N, Dogan H, Aldrich C G. The effects of select hydrocolloids on the processing of P té-style canned pet food[J]. Foods, 2021, 10(10):2506.
[72] Ostrowski M P, La Rosa S L, Kunath B J, et al. Mechanistic insights into consumption of the food additive xanthan gum by the human gut microbiota[J]. Nature Microbiology, 2022, 7(4):556-569.