随着全球人口的增长与膳食结构升级,水产品已成为保障食物安全与优质蛋白供给的重要战略资源。据预测,2030年全球水产品需求量将达到1.83亿t[1]。然而,水产品在加工过程中会产生占原料质量40%~60%的副产物,主要包括鱼头、内脏、鳞片、鱼骨及虾蟹壳等[1]。这些副产物富含蛋白、多不饱和脂肪酸、矿物质、胶原蛋白及脂质等多种营养成分,若处理不当,既造成资源浪费,又带来环境负荷[2]。因此,实现水产品加工副产物的功能化与高值化利用,是贯彻落实“大食物观”重要途径,也对构建循环型海洋经济具有重要意义。
生物活性肽是一类由2~20个氨基酸组成的特异性蛋白质片段,具有抗氧化、降血压、抗菌等多种生理活性,已被广泛应用于医药、功能性食品及化妆品等领域[3]。传统制备方法主要包括溶剂萃取、酸碱水解及酶解等,但存在能耗高、环境污染大等弊端。近年来,以微生物发酵为核心的绿色制造技术因其条件温和、能耗低、产物安全性高,被认为是替代传统水解工艺、实现水产品副产物资源可持续利用的有效途径[4-5]。在发酵过程中,微生物分泌的复杂蛋白酶系能将副产物中的蛋白质高效水解为小分子肽,并进一步通过代谢修饰优化肽段的结构,从而显著增强其生物活性[6-7]。尽管微生物发酵技术优势显著,但该领域的研究仍面临挑战,如适用于水产品副产物的高产蛋白酶菌种资源有待系统挖掘,发酵工艺与活性肽的构效关系仍需深入探究,以及高效分离鉴定与精准定向制备技术亟需创新与突破。
基于此,本文将详细阐述用于发酵水产品副产物的微生物菌种多样性;并深入探讨不同的微生物发酵方式,以及活性肽的分离、纯化与鉴定技术;进一步重点解析发酵水产品副产物源活性肽的多种生物活性及其作用机制。本研究旨在为水产品副产物源活性肽的高效制备及其在食品与健康产业的深度开发提供理论基础。
1 微生物发酵制备活性肽的菌种
微生物发酵法制备活性肽主要利用具有高蛋白酶活性和多种蛋白酶系的微生物,包括乳酸菌、芽孢杆菌、酵母菌和霉菌等[5]。通过筛选获得的高产蛋白酶菌株能够显著提升发酵效率。由于不同微生物的蛋白水解系统具有特异性,加之发酵底物的多样性,其产生的活性肽在结构和功能上也存在显著差异。
1.1 单菌种发酵
1.1.1 乳酸菌
乳酸菌因其高效的蛋白水解系统以及对不同环境和底物的强适应性,被认为是制备生物活性肽最具潜力的微生物之一。其蛋白水解系统由细胞壁蛋白酶和多种细胞内肽酶组成,包括内肽酶、氨基肽酶、二肽酶和三肽酶等[8]。通过这些酶的协同作用,乳酸菌能够将大分子蛋白质逐步水解为寡肽,并进一步分解为具有生物活性的短肽。这些活性肽已被证实具有抗菌、抗炎、降血压和免疫调节等多种生理功能。一般常用的菌株有植物乳植杆菌(Lactiplantibacillus plantarum)、乳酸片球菌(Pediococcus acidilactici)、屎肠球菌(Enterococcus faecium)、干酪乳酪杆菌(Lacticaseibacillus casei)、发酵粘液乳杆菌(Limosilactobacillus fermentum)和福菜伴生乳杆菌(Companilactobacillus futsaii)等(表1)。Ruthu等[9]采用乳酸片球菌NCIM5368、屎肠球菌NCIM5335和乳酸片球菌FD3分别发酵淡水鱼头,水解液均具有较好的抗氧化活性。Carballo-S nchez等[10]利用植物乳植杆菌发酵黄鳍金枪鱼副产品(包括内脏、骨头、鳍等),纯化得到一条具有抗氧化活性的15 kDa的肽段。Abd Rashid等[11]利用干酪乳酪杆菌发酵鱼肠加工产生的副产物,产生的生物活性肽具有很好的自由基清除能力。
表1 采用微生物发酵从水产品副产物中制备的生物活性肽
Table 1 Bioactive peptides from aquatic product by-products prepared by microbial fermentation
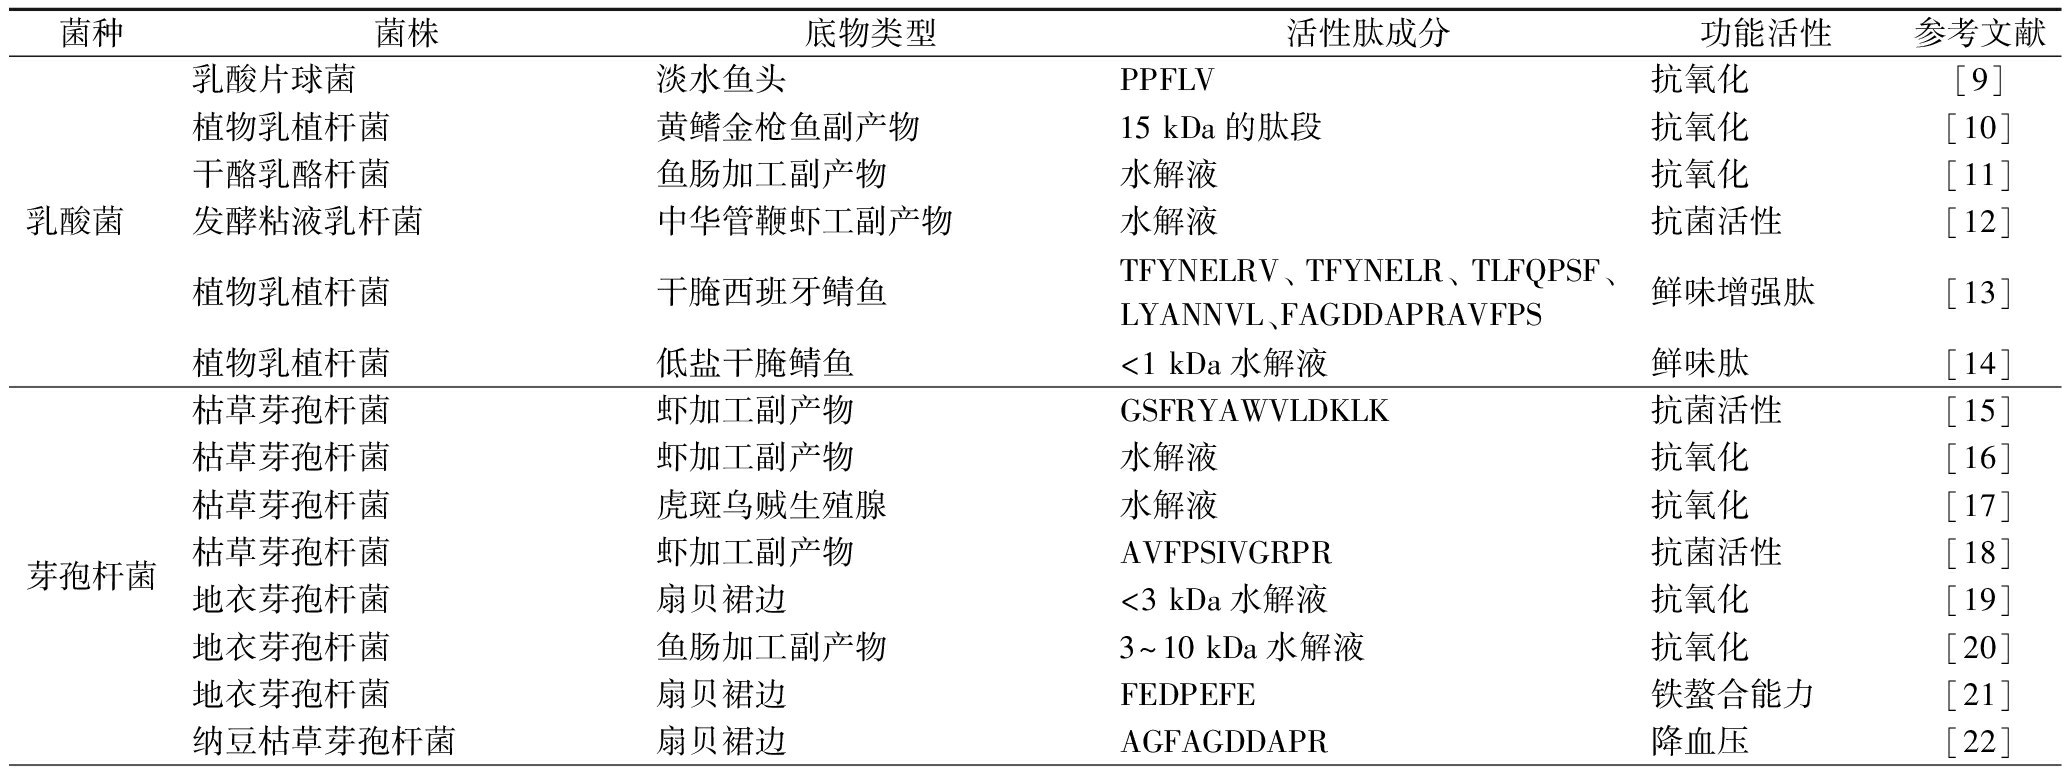
菌种菌株底物类型活性肽成分功能活性参考文献乳酸菌乳酸片球菌淡水鱼头PPFLV抗氧化[9]植物乳植杆菌黄鳍金枪鱼副产物15 kDa的肽段抗氧化[10]干酪乳酪杆菌鱼肠加工副产物水解液抗氧化[11]发酵粘液乳杆菌中华管鞭虾工副产物水解液抗菌活性[12]植物乳植杆菌干腌西班牙鲭鱼TFYNELRV、TFYNELR、TLFQPSF、LYANNVL、FAGD-DAPRAVFPS鲜味增强肽[13]植物乳植杆菌低盐干腌鲭鱼<1 kDa水解液鲜味肽[14]芽孢杆菌枯草芽孢杆菌虾加工副产物GSFRYAWVLDKLK抗菌活性[15]枯草芽孢杆菌虾加工副产物水解液抗氧化[16]枯草芽孢杆菌虎斑乌贼生殖腺水解液抗氧化[17]枯草芽孢杆菌虾加工副产物AVFPSIVGRPR抗菌活性[18]地衣芽孢杆菌扇贝裙边<3 kDa水解液抗氧化[19]地衣芽孢杆菌鱼肠加工副产物3~10 kDa水解液抗氧化[20]地衣芽孢杆菌扇贝裙边FEDPEFE铁螯合能力[21]纳豆枯草芽孢杆菌扇贝裙边AGFAGDDAPR降血压[22]
续表1
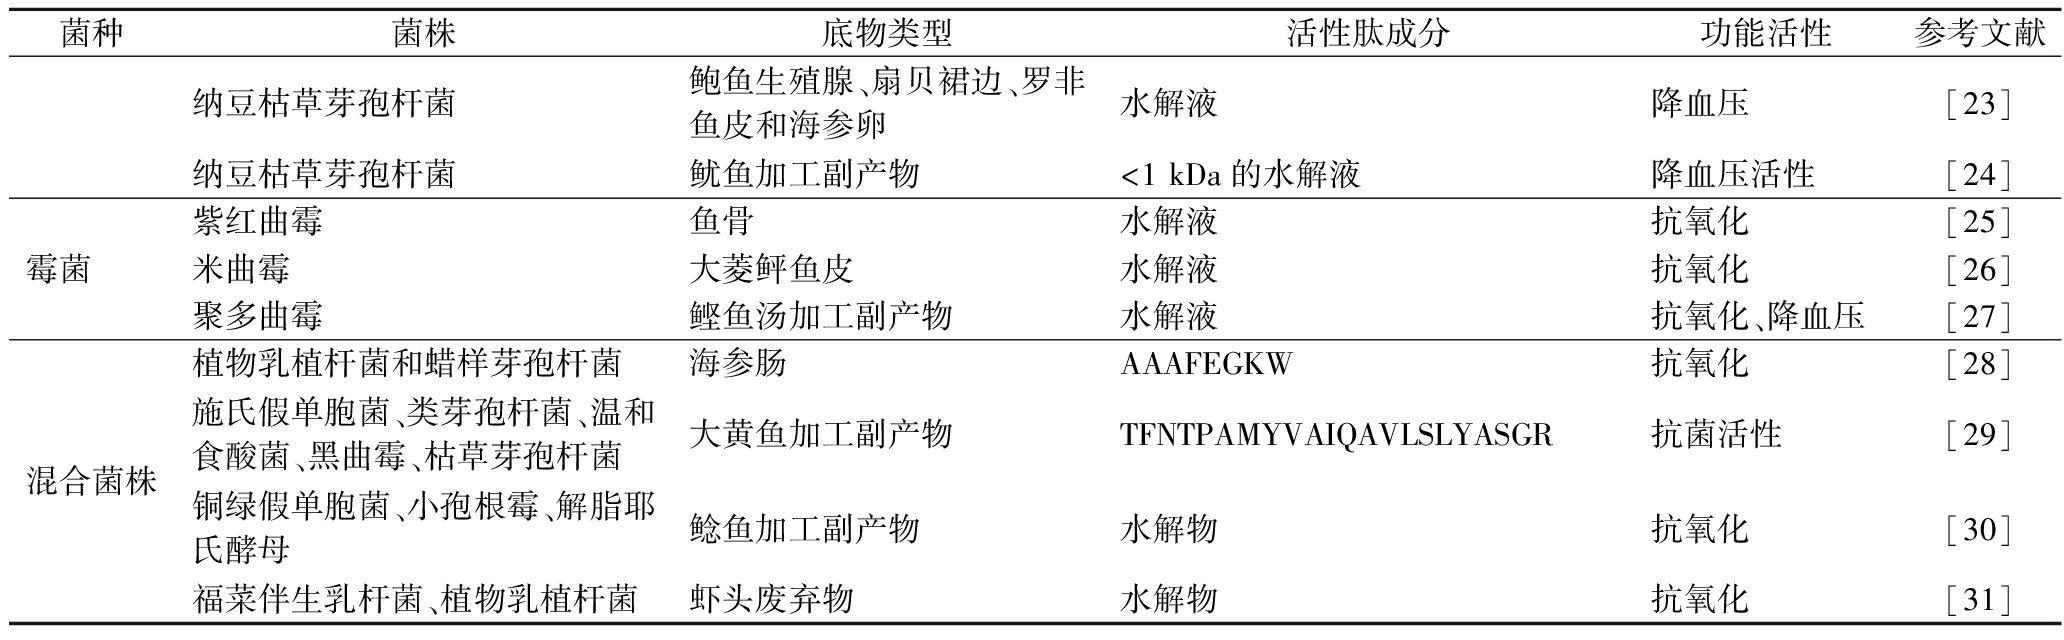
菌种菌株底物类型活性肽成分功能活性参考文献纳豆枯草芽孢杆菌鲍鱼生殖腺、扇贝裙边、罗非鱼皮和海参卵水解液降血压[23]纳豆枯草芽孢杆菌鱿鱼加工副产物<1 kDa的水解液降血压活性[24]霉菌紫红曲霉鱼骨水解液抗氧化[25]米曲霉大菱鲆鱼皮水解液抗氧化[26]聚多曲霉鲣鱼汤加工副产物水解液抗氧化、降血压[27]混合菌株植物乳植杆菌和蜡样芽孢杆菌海参肠AAAFEGKW抗氧化[28]施氏假单胞菌、类芽孢杆菌、温和食酸菌、黑曲霉、枯草芽孢杆菌大黄鱼加工副产物TFNTPAMYVAIQAVLSLYAS-GR抗菌活性[29]铜绿假单胞菌、小孢根霉、解脂耶氏酵母鲶鱼加工副产物水解物抗氧化[30]福菜伴生乳杆菌、植物乳植杆菌虾头废弃物水解物抗氧化[31]
注:活性肽成分列中的英文代表该活性肽肽段的氨基酸序列。
1.1.2 芽孢杆菌
芽孢杆菌的高产蛋白酶特性,是工业发酵中用于生产食品商业蛋白酶主要菌种。其中,枯草芽孢杆菌(Bacillus subtilis)作为著名的碱性蛋白酶生产菌株,常被用于食品发酵。除枯草芽孢杆菌以外,其他芽孢杆菌如纳豆枯草芽孢杆菌(Bacillus subtilis var.natto)、蜡样芽孢杆菌(Bacillus cereus)、解淀粉芽孢杆菌(Bacillus amyloliquefaciens)和地衣芽孢杆菌(Bacillus licheniformis)同样具备优异的蛋白水解能力,已被广泛应用于水解水产品副产物以制备各类生物活性肽(表1)。研究发现,枯草芽孢杆菌发酵虾加工副产物可获得具有抗菌活性的肽段GSFRYAWVLDKIK[15],利用不同枯草芽孢菌株发酵虾加工副产物的水解液则表现出抗氧化活性[16];地衣芽孢杆菌发酵扇贝裙边所得低于3 kDa的水解液具有显著的抗氧化活性[19];而纳豆枯草芽孢杆菌发酵扇贝裙边则能产生如AGFAGDDAPR、CDVDIR、IIAPPER、WHHTFYNELR等多条具有降血压活性的血管紧张素系统血管紧张素转化酶(angiotensin-converting enzyme,ACE)抑制肽[22]。这些研究发现均证明了芽孢杆菌具有水产品副产物高效转化为高附加值活性肽的巨大潜力。
1.1.3 霉菌
霉菌能够产生多种蛋白酶,包括酸性、碱性和中性蛋白酶,且其蛋白酶专一性较低,能够广泛降解植物或动物来源的蛋白质,生成蛋白胨、肽及氨基酸等产物。研究表明,多种霉菌在发酵水产品副产物中展现出良好的应用潜力,包括紫红曲霉(Monascus purpureus)、米曲霉(Aspergillus oryzae)、聚多曲霉(Aspergillus sydowii)等(表1)。Chen等[25]利用紫红曲霉发酵鱼骨,所得水解液表现出较强的抗氧化能力。Fang等[17]在比较多种微生物发酵大菱鲆鱼皮时发现,米曲霉具有最高的蛋白水解效率,其发酵产物也显示出较好的抗氧化活性,这与其基因组中编码多种蛋白酶的基因及由此产生的水解产物中独特的氨基酸组成有关。此外,Takenaka等[27]利用聚多曲霉发酵鲣鱼汤加工副产物,所获水解液兼具抗氧化与ACE抑制活性。这些研究结果共同表明,霉菌因其具有高效的蛋白水解能力及产物多样的生物活性,在水产品副产物高值化利用中具有重要开发前景。
1.2 多菌种协同发酵
多菌种协同发酵通过不同微生物间的代谢互补与协同作用,能够显著提升蛋白水解效率与活性肽得率。例如,乳酸菌与酵母菌混合发酵可改善体系的酸化环境,促进蛋白酶分泌,同时酵母自溶释放的核苷酸、维生素等生长因子可进一步促进乳酸菌增殖与蛋白酶表达;芽孢杆菌与霉菌的组合也被证明可有效分解虾蟹壳等复杂底物中的蛋白质与几丁质。Lyu等[28]利用植物乳植杆菌ZHS-5与蜡样芽孢杆菌共同发酵海参肠,协同制备出具有强抗氧化活性的肽段AAAFEGKW。Song等[29]采用包含施氏假单胞菌(Pseudomonas stutzeri)、类芽孢杆菌(Paenibacillus sp)、温和食酸菌(Acidovorax temperans)、黑曲霉(Aspergillus niger)和枯草芽孢杆菌在内的混合菌株发酵黄鱼加工副产物,从中鉴定出对植物病原真菌具有显著抑制作用的抗菌肽。此外,Abun等[30]将铜绿假单胞菌(Pseudomonas aeruginosa)、小孢根霉(Rhizopus microsporus)与解脂耶氏酵母(Yarrowia lipolytica)组合用于鲶鱼加工废弃物发酵,也成功获得具有抗氧化功能的水解物。这些研究表明,多菌种协同发酵在挖掘水产品副产物高附加值活性成分方面具有显著优势与应用潜力。
2 活性肽发酵制备方式及分离鉴定技术
水产品副产物的高值化利用依赖于高效、绿色的生物加工技术。微生物发酵法因其条件温和、环境友好、能耗低且能富集多种生物活性物质等优势,已成为制备水产品源活性肽的重要途径。发酵方式的选择直接影响活性肽的得率、组成及功能特性,后续的分离纯化技术则是获得高纯度、高活性肽段产品的关键。近年来,随着发酵工艺的优化与现代分离鉴定技术的融合,活性肽的研究正从粗提物筛选向精准定向制备转变,为其功能阐释和产业化应用提供了基础。
2.1 活性肽发酵制备方式
根据发酵过程中水分含量及微生物生长环境的不同,发酵方式主要分为固态发酵和液态发酵两大类(图1)。固态发酵是微生物在几乎没有水的固态底物上生长发酵的过程,但固体基质所含的水分足以维持微生物的生长、代谢活动及生物化学反应所需[32]。水产品副产物(如鱼鳞、鱼骨、虾蟹壳等)经粉碎、调质后,本身可作为良好的固态基质,无需额外添加惰性载体。固态发酵体系水分活度低,更接近于微生物的自然生长环境,能有效诱导其产生丰富的酶系(如蛋白酶、几丁质酶等),用于降解副产物复杂的蛋白质-几丁质复合结构。该方式具有节水、节能、产酶效率高、酶系丰富、后处理简单等优点,尤其适用于处理高黏稠度或易起泡的副产物原料。例如,采用米曲霉对矛尾刺鰕虎鱼鱼皮进行固态发酵,其蛋白水解率显著高于液态发酵,且所得水解物抗氧化活性更高[33]。然而,固态发酵也存在传质传热困难、过程参数(温度、pH、湿度)不易在线监控与精准调控、规模化放大难度较大等挑战。
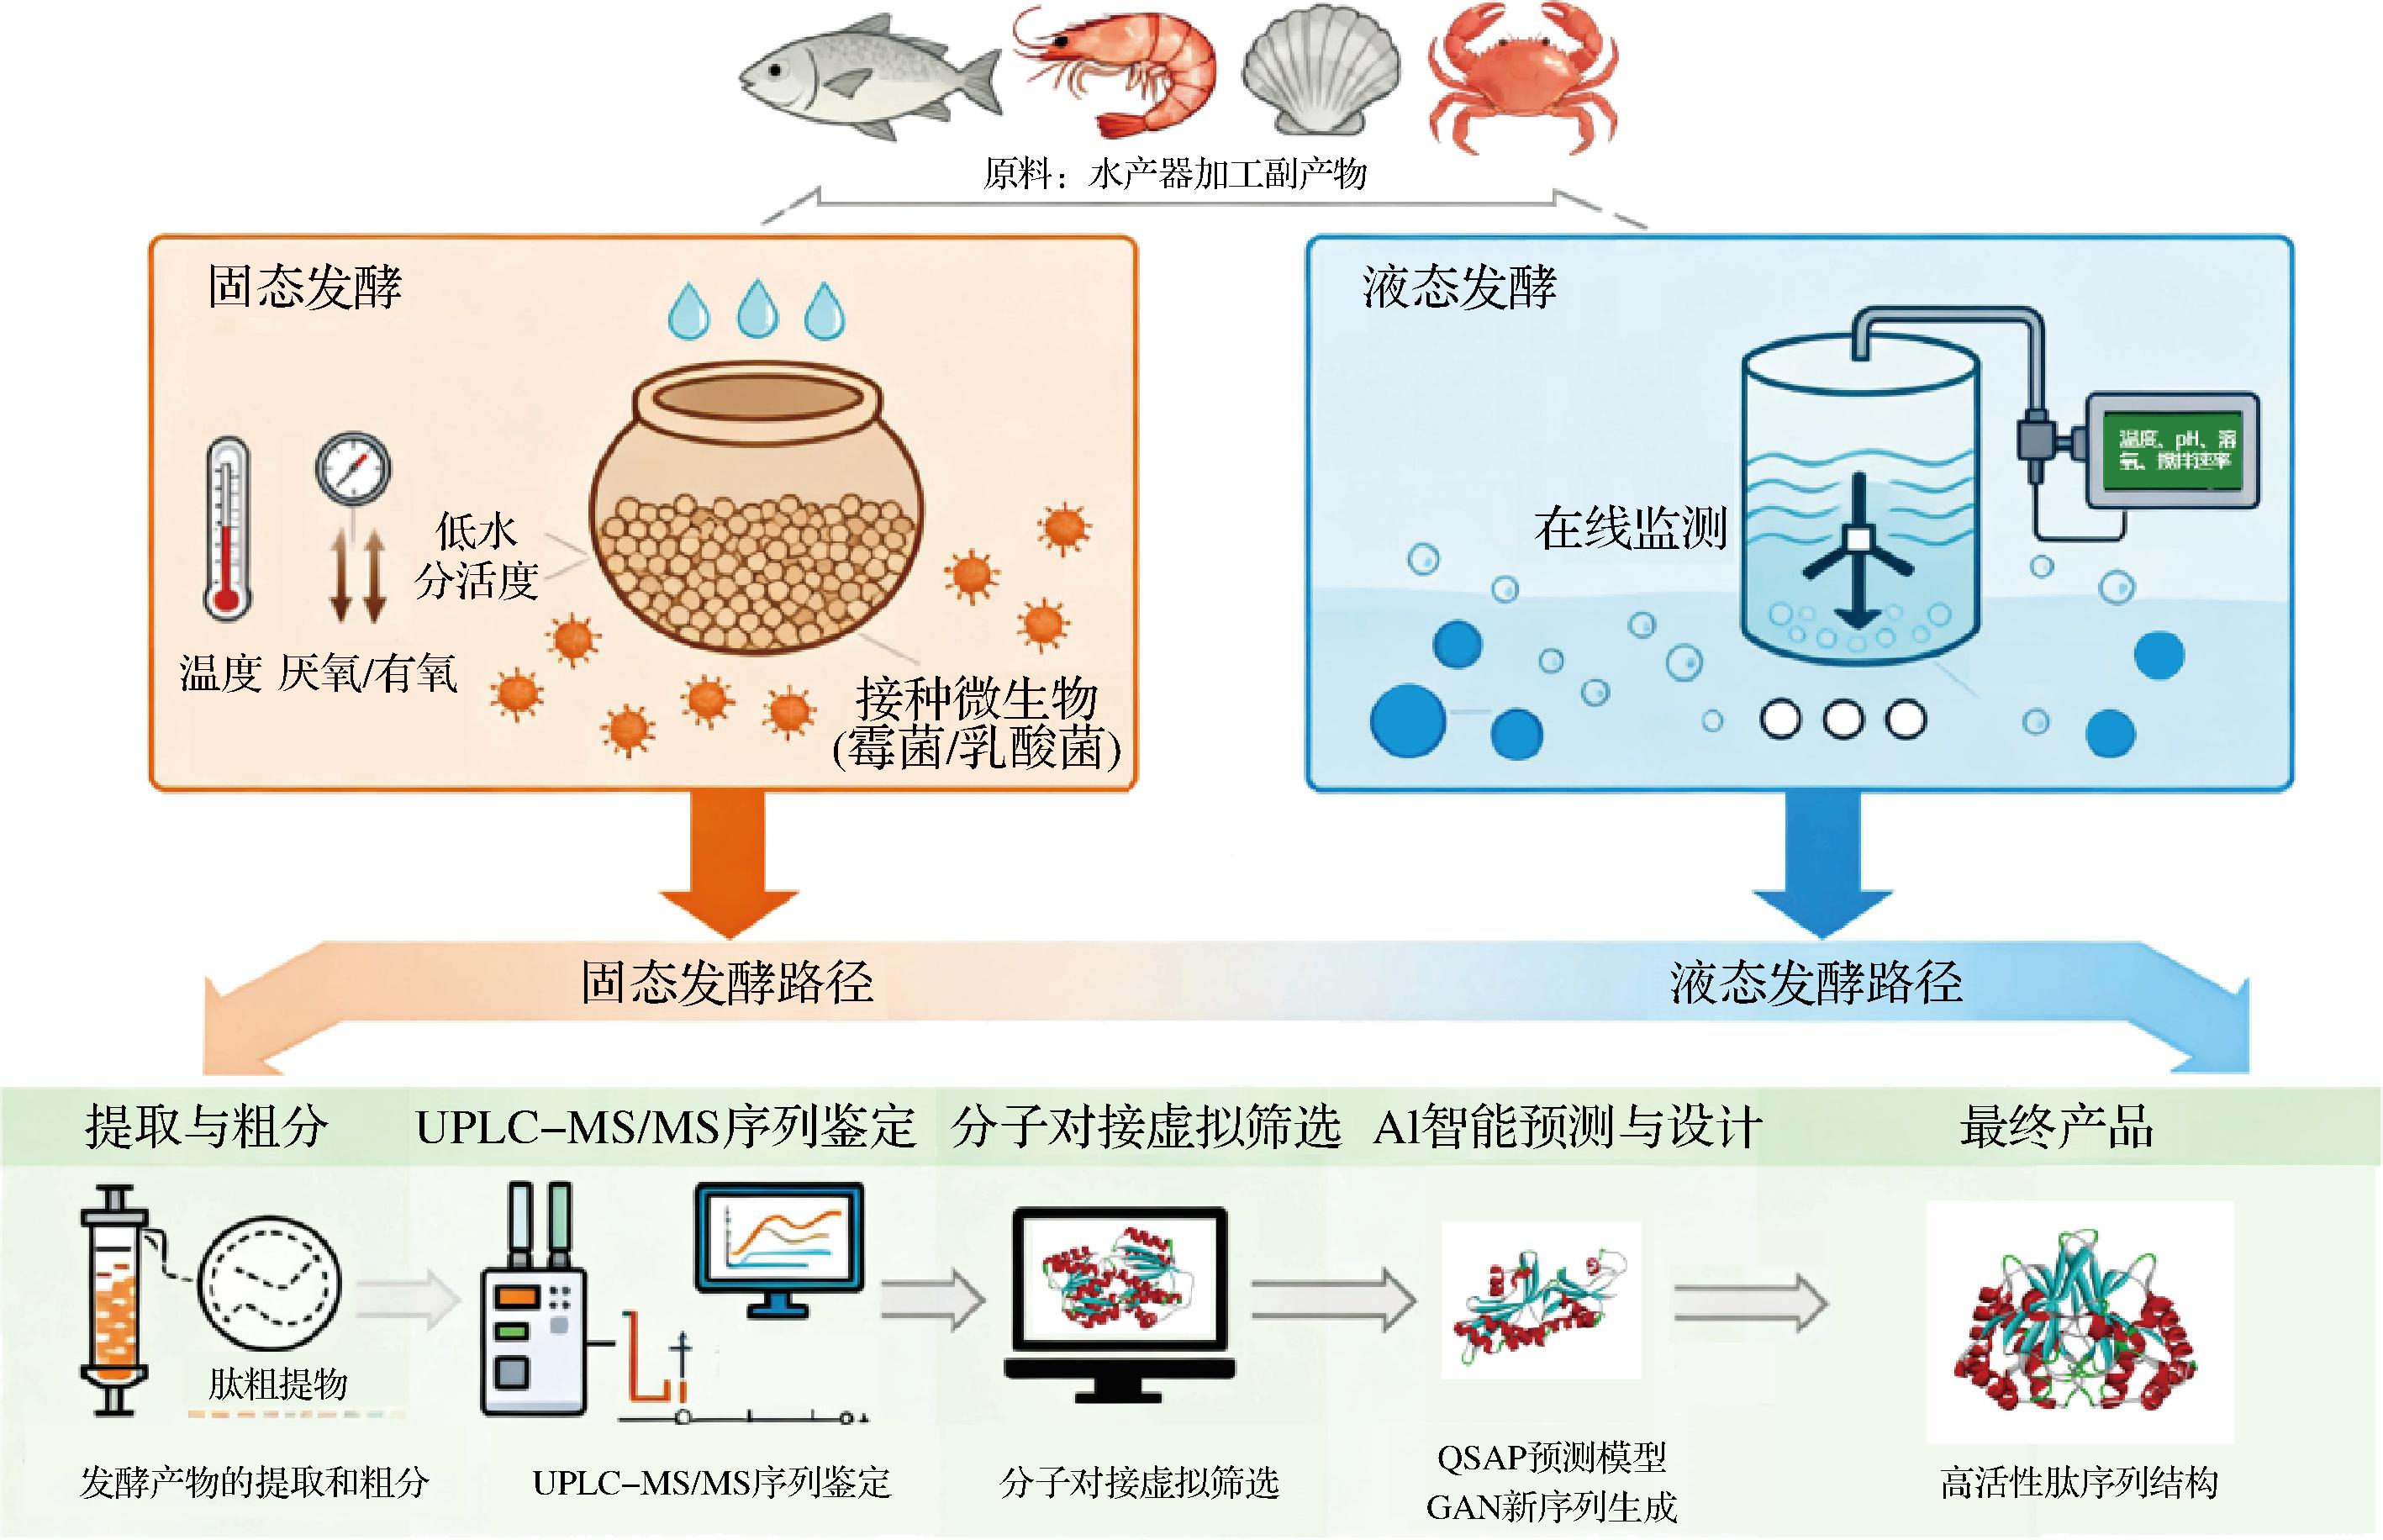
图1 活性肽发酵制备方式及分离鉴定技术
Fig.1 Fermentation preparation methods and identification technology of bioactive peptides
液态发酵则是将微生物接种于含有可溶性营养物质或悬浮固态底物的液体培养基中进行发酵[34]。水产品副产物可经酶解或酸/碱预处理制成蛋白浆液作为发酵培养基。液态发酵体系流动性好,便于参数(温度、pH、溶氧、搅拌速率)的在线监测与调控,易于实现工业化大规模生产。微生物在液态培养基中生长迅速,底物利用率高,活性肽可分泌到发酵液中,便于后续提取。根据操作方式,液态发酵可分为批式发酵、补料分批发酵和连续发酵。补料分批发酵可有效避免底物抑制,提高产物得率;连续发酵则生产效率最高,但对过程稳定性要求极高。例如,采用植物乳植杆菌在补料分批模式下发酵金枪鱼副产物,有效提高了活性肽的产量,活性肽具有较好的抗氧化活性[35]。近年来,结合固态发酵和液态发酵优势的吸附载体固态发酵,以及基于微生物群落工程的多菌种分步发酵、共发酵等新型发酵模式也在探索中,可进一步提升蛋白转化效率和产物功能性。
2.2 活性肽的分离纯化技术
发酵液是包含目标活性肽、未降解蛋白质、菌体、残留底物及无机盐等组分的复杂混合物,必须通过系统的分离纯化流程才能获得高纯度活性肽产物。传统分离技术主要依据目标物与杂质在物理和化学性质上的差异进行分级和提纯,一般先进行预处理与初步富集,发酵液经离心或过滤去除菌体及不溶性杂质。基于分子质量大小的超滤是获取特定分子质量范围活性肽的有效手段,通过串联不同截留分子质量(如1、3、10 kDa)的超滤膜可实现肽段的粗分级,其中<1 kDa的组分通常表现出更高生物活性。膜分离技术因其操作简便、能耗低、易于放大而被广泛用于工业化预处理。由于所得澄清液中活性肽浓度较低,再采用硫酸铵盐析或乙醇、丙酮等有机溶剂沉淀法进行浓缩。这些方法虽可快速富集肽段,但蛋白纯度较低,而要获得高纯度肽段,则须依赖色谱技术。常用的色谱技术一般包括离子交换色谱(ion exchange chromatography,IEC)、凝胶过滤色谱(gel filtration chromatography,GFC)及反相高效液相色谱(reversed-phase high performance liquid chromatography,RP-HPLC)[36]。通常需将IEC、GFC与RP-HPLC等多维色谱策略组合运用,依次进行粗分与精制,才能最终获得纯度较高的活性肽。Hu等[37]采用GFC组合RP-HPLC法从蓝圆鲹水解产物中分离纯化获得一条抗氧化肽KGFR。
2.3 活性肽的筛选鉴定技术
随着组学技术和生物信息学的快速发展,活性肽的筛选鉴定技术已步入精准化与智能化的新阶段。现代技术不仅显著提升了筛选效率,更通过“虚拟筛选”和“理性设计”策略大幅降低了研发成本与周期。这些方法的核心在于将高效分离手段与智能预测工具相结合,实现对高活性肽段的快速识别与靶向鉴定。
在初步筛选与分子质量分布分析中,SDS-PAGE仍是一种基础而重要的技术,可用于快速评估蛋白质降解程度及肽段的分子质量分布,为后续精细分离提供参考。现代鉴定分析技术以LC-MS为核心,极大提升了复杂体系中活性肽的鉴定能力。超高效液相色谱-串联质谱(ultra-performance liquid chromatography-tandem mass spectrometry,UPLC-MS/MS)技术通过将高分离效能的液相色谱与高灵敏度、高分辨质谱检测器联用,能够快速、准确地测定肽段的分子质量并解析其氨基酸序列。Li等[38]利用UPLC-MS/MS从发酵大头鲢中鉴定到558条肽段,获得113条潜在的鲜味肽。
分子对接(molecular docking,MD)和分子动力学模拟(molecular dynamics simulation,MDS)作为计算机辅助药物设计的关键工具,已被广泛应用于活性肽的虚拟筛选与作用机制阐释。MD通过模拟活性肽与靶点蛋白的三维结构相互作用,计算结合自由能并分析分子间作用力(如氢键与疏水作用),从而预测其潜在生物活性。例如,孙洁等[39]将中国毛虾酶解产物经HPLC-MS技术鉴定后得到42条肽段,利用MD技术筛选到2条二肽基肽酶-IV(DPP-IV)抑制肽(PALPSIPH和PAFPHPLP)。与MD分析的静态结合模式不同,MDS可在原子水平模拟活性肽与靶蛋白在生理环境下的动态结合过程,考察复合物构象随时间的变化、结合稳定性以及关键相互作用残基的动态行为[40]。Li等[38]用毛霉发酵鳙鱼肉来提高其鲜味品质,共鉴定出558种肽,通过与味觉受体T1R1/T1R3的MD筛选出113种潜在的鲜味肽,经体外验证肽NDLKDTSGKVVAK呈现出显著的鲜味特性,MDS分析发现肽NDLKDTSGKVVAK与已知鲜味肽(MLSEDEGK)具有相似的鲜味诱导机制,通过氢键和疏水相互作用与鲜味受体T1R1/T1R3结合,该结合引发T1R1/T1R3这2个亚基之间的空腔周围蛋白发生构象变化,从而触发鲜味的感觉感知。这些研究均说明MD和MDS技术极大提升了筛选效率,实现了从“广泛筛选”到“目标导向”研究的转变。
人工智能(artificial intelligence,AI)与机器学习(machine learning,ML)正革命性地改变活性肽的筛选鉴定过程。面对大量的肽序列与活性肽数据,AI/ML算法能够挖掘其深层特征并构建精准的定量构效关系模型。这些模型基于肽的氨基酸组成、序列描述和物理化学性质等特征进行训练,从而实现对未知肽段活性的高效预测[41]。例如,Qi等[42]通过整合多层感知器和循环神经网络开发了一个深度学习模型,构建了一个包含499个样本的不平衡数据集用于鲜味肽预测,实现了最高93%的预测准确率。Zhang等[43]基于Transformer的双向编码器开发了一种基于氨基酸序列的鲜味肽预测器,能够实现鲜味肽快速筛选。AI技术已不限于预测,还能够逆向设计具有特定功能的全新肽序列,为高效定制特定功能的生物活性肽提供了新方法,显著加速了功能性肽产品的开发流程。例如,Das等[44]采用生成对抗网络深度学习架构,通过模拟已知抗菌肽的序列特征与结构规则,自动生成大量自然界中尚未发现的新型抗菌肽候选分子,进一步结合分子动力学模拟对这些生成肽进行初步筛选,并合成若干高优先级序列进行实验验证。结果表明,AI设计的肽段中超过20%表现出强效的广谱抗菌活性,且对人体细胞毒性较低,其开发效率远优于传统筛选方法。
3 发酵水产品副产物中活性肽的生物活性
近年来,利用微生物发酵技术处理水产品加工副产物,并将其中的蛋白质转化为生物活性肽,已成为提高副产物附加值的研究热点。这些活性肽因其安全性高、来源天然且具备多种健康促进潜力而受到广泛关注。目前的研究已揭示其具有抗氧化、降血压、抗菌以及改善风味等多种生物活性,展现出在功能性食品、膳食补充剂及医药领域的广阔应用前景。
3.1 抗氧化活性
抗氧化活性是生物活性肽最重要的功能特性之一,其能够有效调节生物体的氧化应激水平,保护生物大分子免受氧化损伤,从而在延缓衰老及预防慢性疾病中发挥重要作用。已有研究表明,活性肽的抗氧化机制包括清除过量的自由基、调节抗氧化酶活性以及调控细胞内抗氧化信号通路等[45-46]。活性肽中的含硫氨基酸、芳香族氨基酸等特定氨基酸残基能够提供电子或氢原子,直接中和自由基;同时,它们还能够有效螯合Fe2+、Cu2+等过渡金属离子,阻断羟自由基的生成,从而减少活性氧(reactive oxygen species,ROS)的产生(图2)。在氧化应激条件下,抗氧化肽常通过调控Keap1/Nrf2/ARE信号通路激活内源性抗氧化防御系统,Nrf2与Keap1解离并进入细胞核,启动超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)及血红素加氧酶-1(heme oxygenase-1,HO-1)等关键抗氧化酶的表达,增强细胞的氧化耐受能力(图2)。Lyu等[28]从发酵海参肠中筛选鉴定获得一条抗氧化肽AAAFEGKW(AP3),经氧化损伤HepG2细胞模型分析表明,肽AP3通过激活Keap1/Nrf2通路,增强抗氧化酶SOD和GSH-Px活性,降低ROS和丙二醛水平,从而对氧化损伤的细胞发挥保护作用。
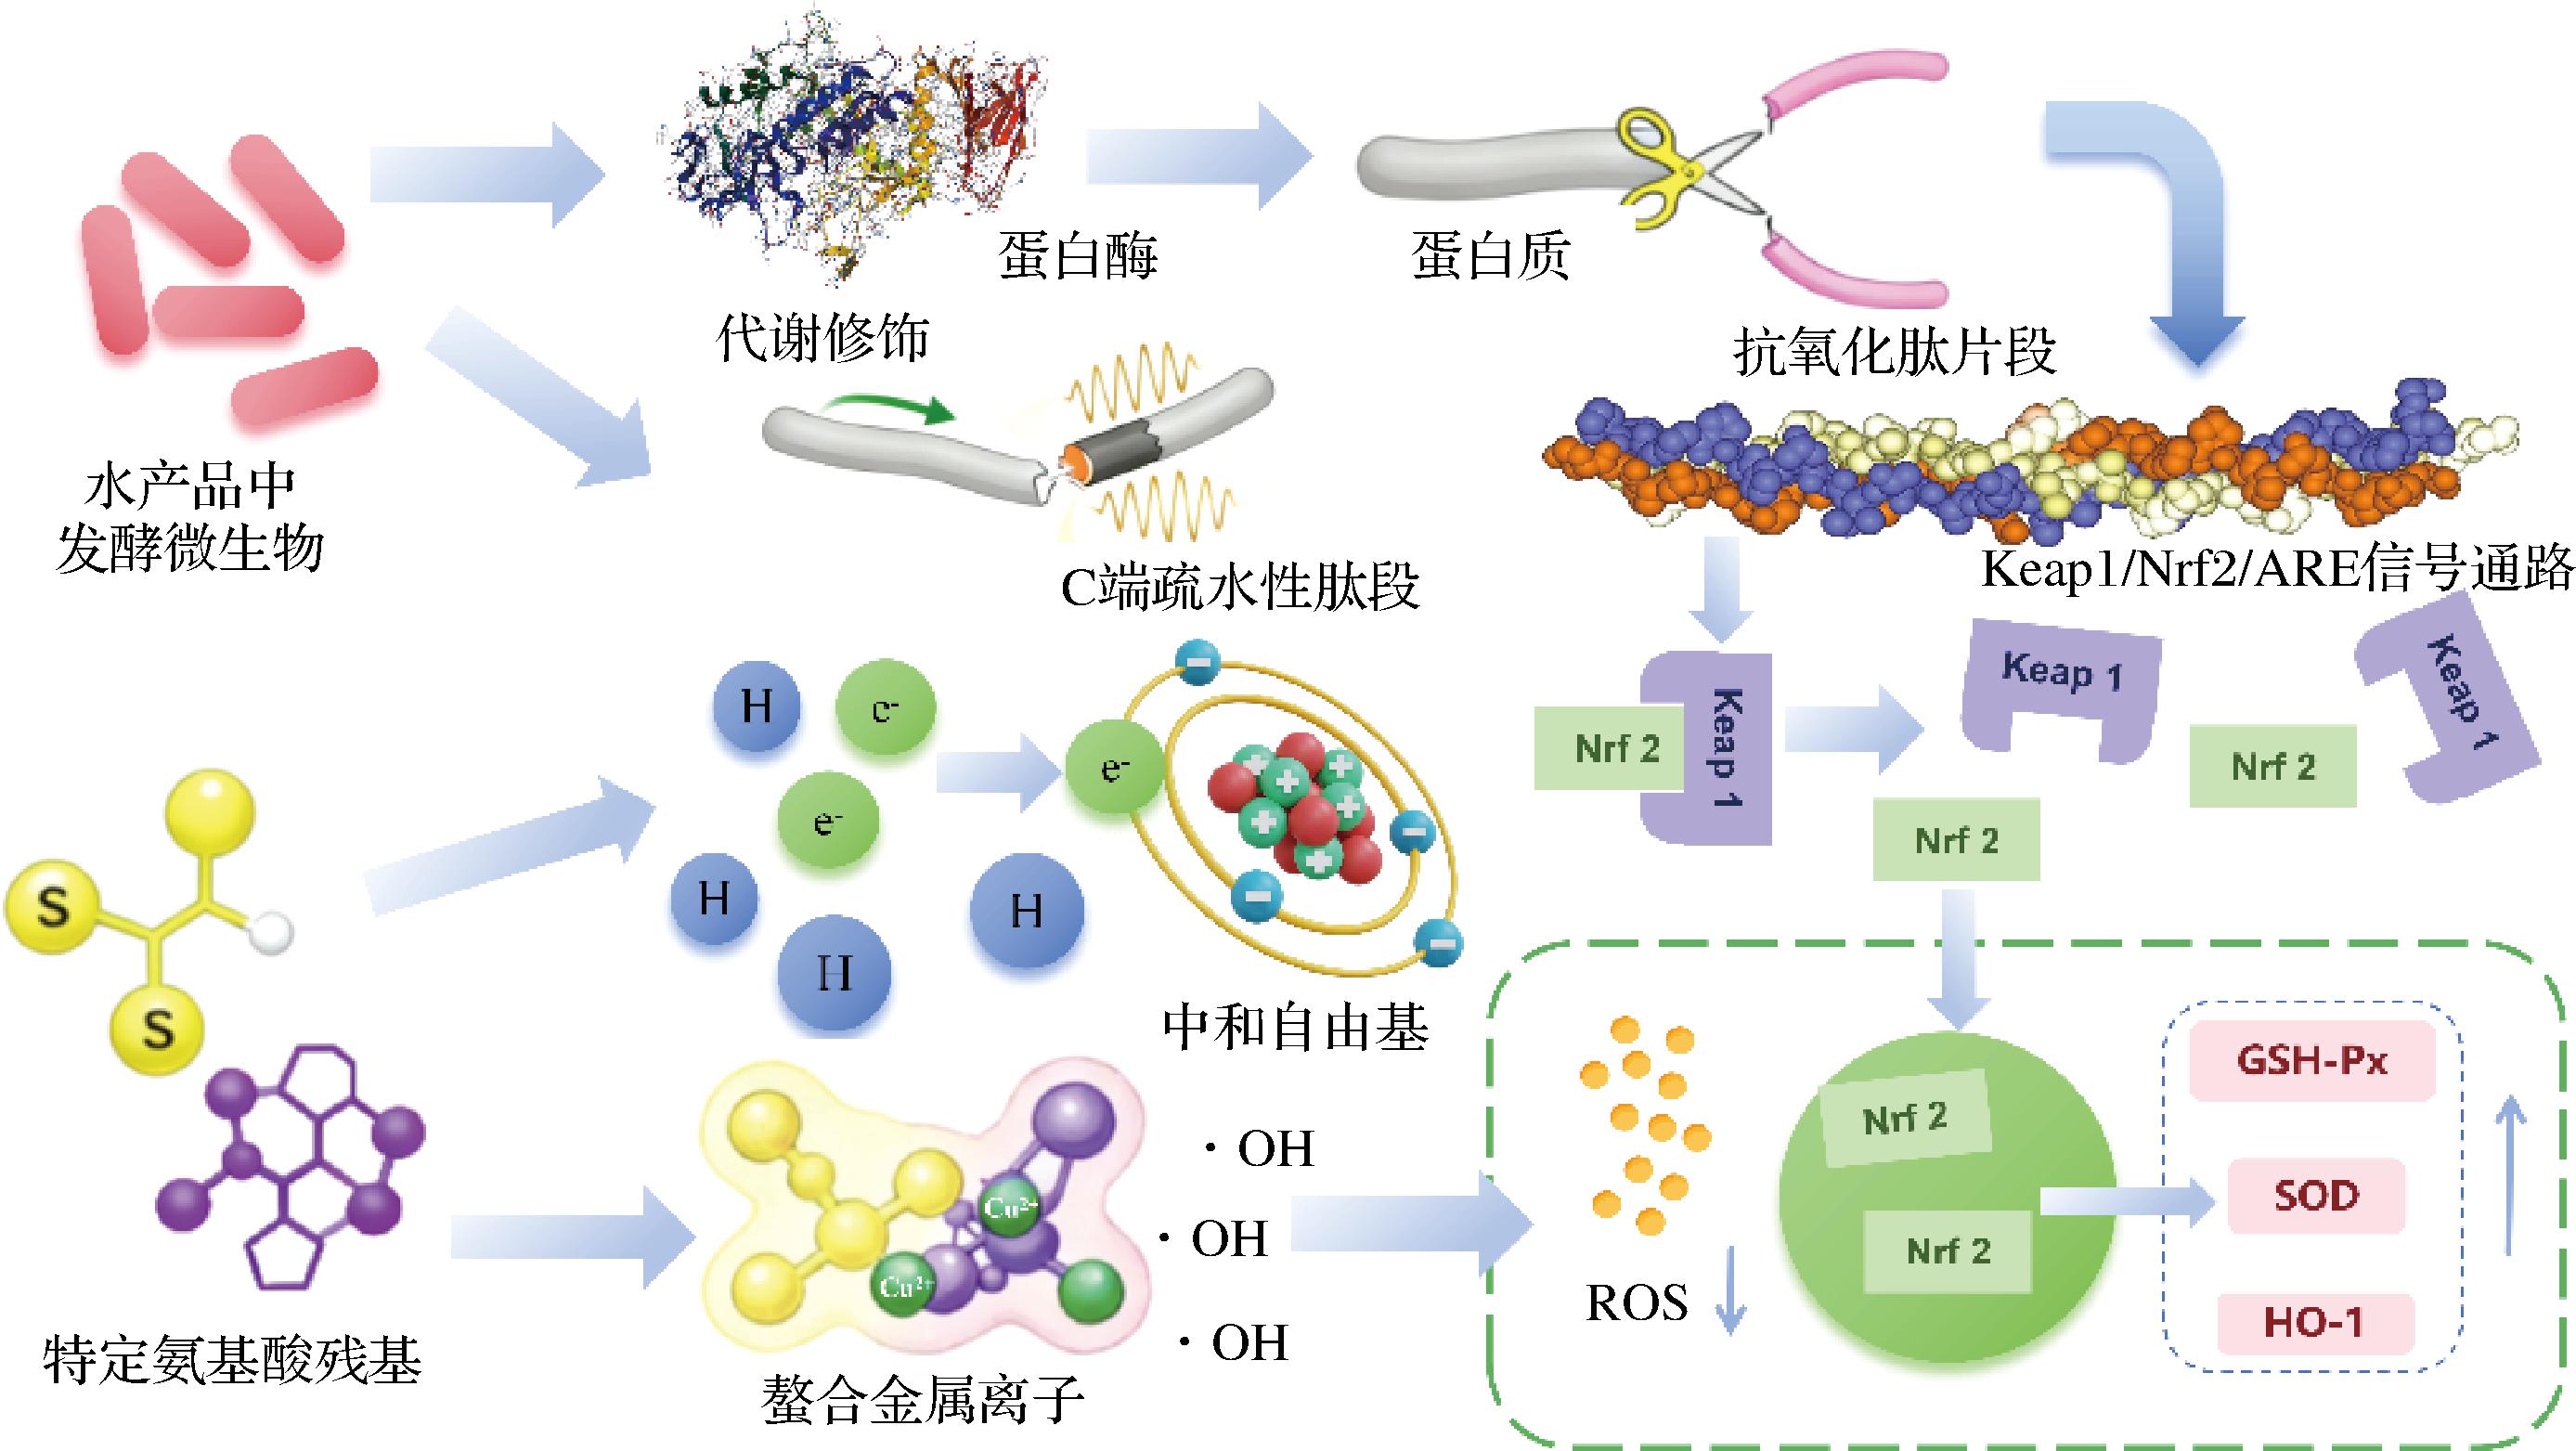
图2 活性肽抗氧化活性机制
Fig.2 Mechanism of antioxidant activity of bioactive peptides
微生物发酵处理能够增加水产品副产物中活性肽的抗氧化能力,可能源于发酵过程中多机制协同作用对肽类组成与结构的优化。在酶解方面,微生物分泌的丰富蛋白酶系(包括内切肽酶与外切肽酶)能够更充分地裂解蛋白质基质,释放出原本包埋于分子内部的抗氧化功能片段。在代谢修饰方面,微生物代谢会生成或富集C端为疏水性氨基酸(如亮氨酸、脯氨酸)的肽段,而此类结构特征被认为有助于增强肽段的供氢能力与自由基稳定效率。Zhi等[19]和Takenaka等[27]的研究也分别证实了发酵扇贝裙边和鲣鱼副产物水解物的显著抗氧化能力。抗氧化能力强的肽段C端中通常富含疏水性氨基酸(Val、Leu、Pro)和芳香族氨基酸(Tyr、Phe、Trp)[47],这些肽段在自由基清除及金属离子螯合方面展现出较好的能力。
3.2 降血压活性
生物活性肽的降血压作用主要源于其对肾素-ACE的抑制作用。ACE是血压调节的关键酶,其一方面可以催化无活性的血管紧张素Ⅰ转化为强效缩血管物质血管紧张素Ⅱ;另一方面可以降解具有舒血管作用的缓激肽,共同导致血管收缩及血压升高。生物活性肽抑制其活性可减少血管收缩物质血管紧张素Ⅱ的生成,并延缓舒血管物质缓激肽的降解,从而促使血压下降[48]。从作用机制上看,ACE抑制肽通常作为竞争性抑制剂,通过其特定的结构特征直接与ACE活性中心的Zn2+及关键氨基酸残基结合,阻断酶与底物的相互作用[49],其抑制效能与肽的氨基酸组成及序列特征密切相关(图3)。研究表明,高效的ACE抑制肽通常由2~10个氨基酸残基组成,并以线性结构存在[48]。其构效关系的关键在于C末端和N末端氨基酸的性质,当C末端为脯氨酸、苯丙氨酸、色氨酸、酪氨酸或精氨酸等残基时,能通过疏水作用与ACE活性中心的S1口袋(含Ala354等残基)形成稳定复合物;N末端若富含精氨酸、赖氨酸等带正电荷的残基,则可与ACE活性中心的S2位点(含Gln281、His353、Lys511等)形成离子键与氢键网络,从而阻断底物与酶催化中心的结合,阻止了催化所必需的构象变化[48-49]。有研究已从发酵扇贝裙边中鉴定出抑制肽AGFAGDDAPR,其C末端的精氨酸(Arg)能够与ACE活性中心结合;体内研究证实,该肽段能通过调节肾素-ACE系统,有效降低自发性高血压大鼠的血压,并改善由此引发的心肌纤维化与血管重塑[22]。Yang等[24]对发酵鱿鱼副产物的研究也进一步印证,发酵水解物中富含此类具有特定序列的短肽,从而表现出显著的ACE抑制能力。这些发现共同说明,微生物发酵可通过多种酶切释放和富集高效ACE抑制肽。
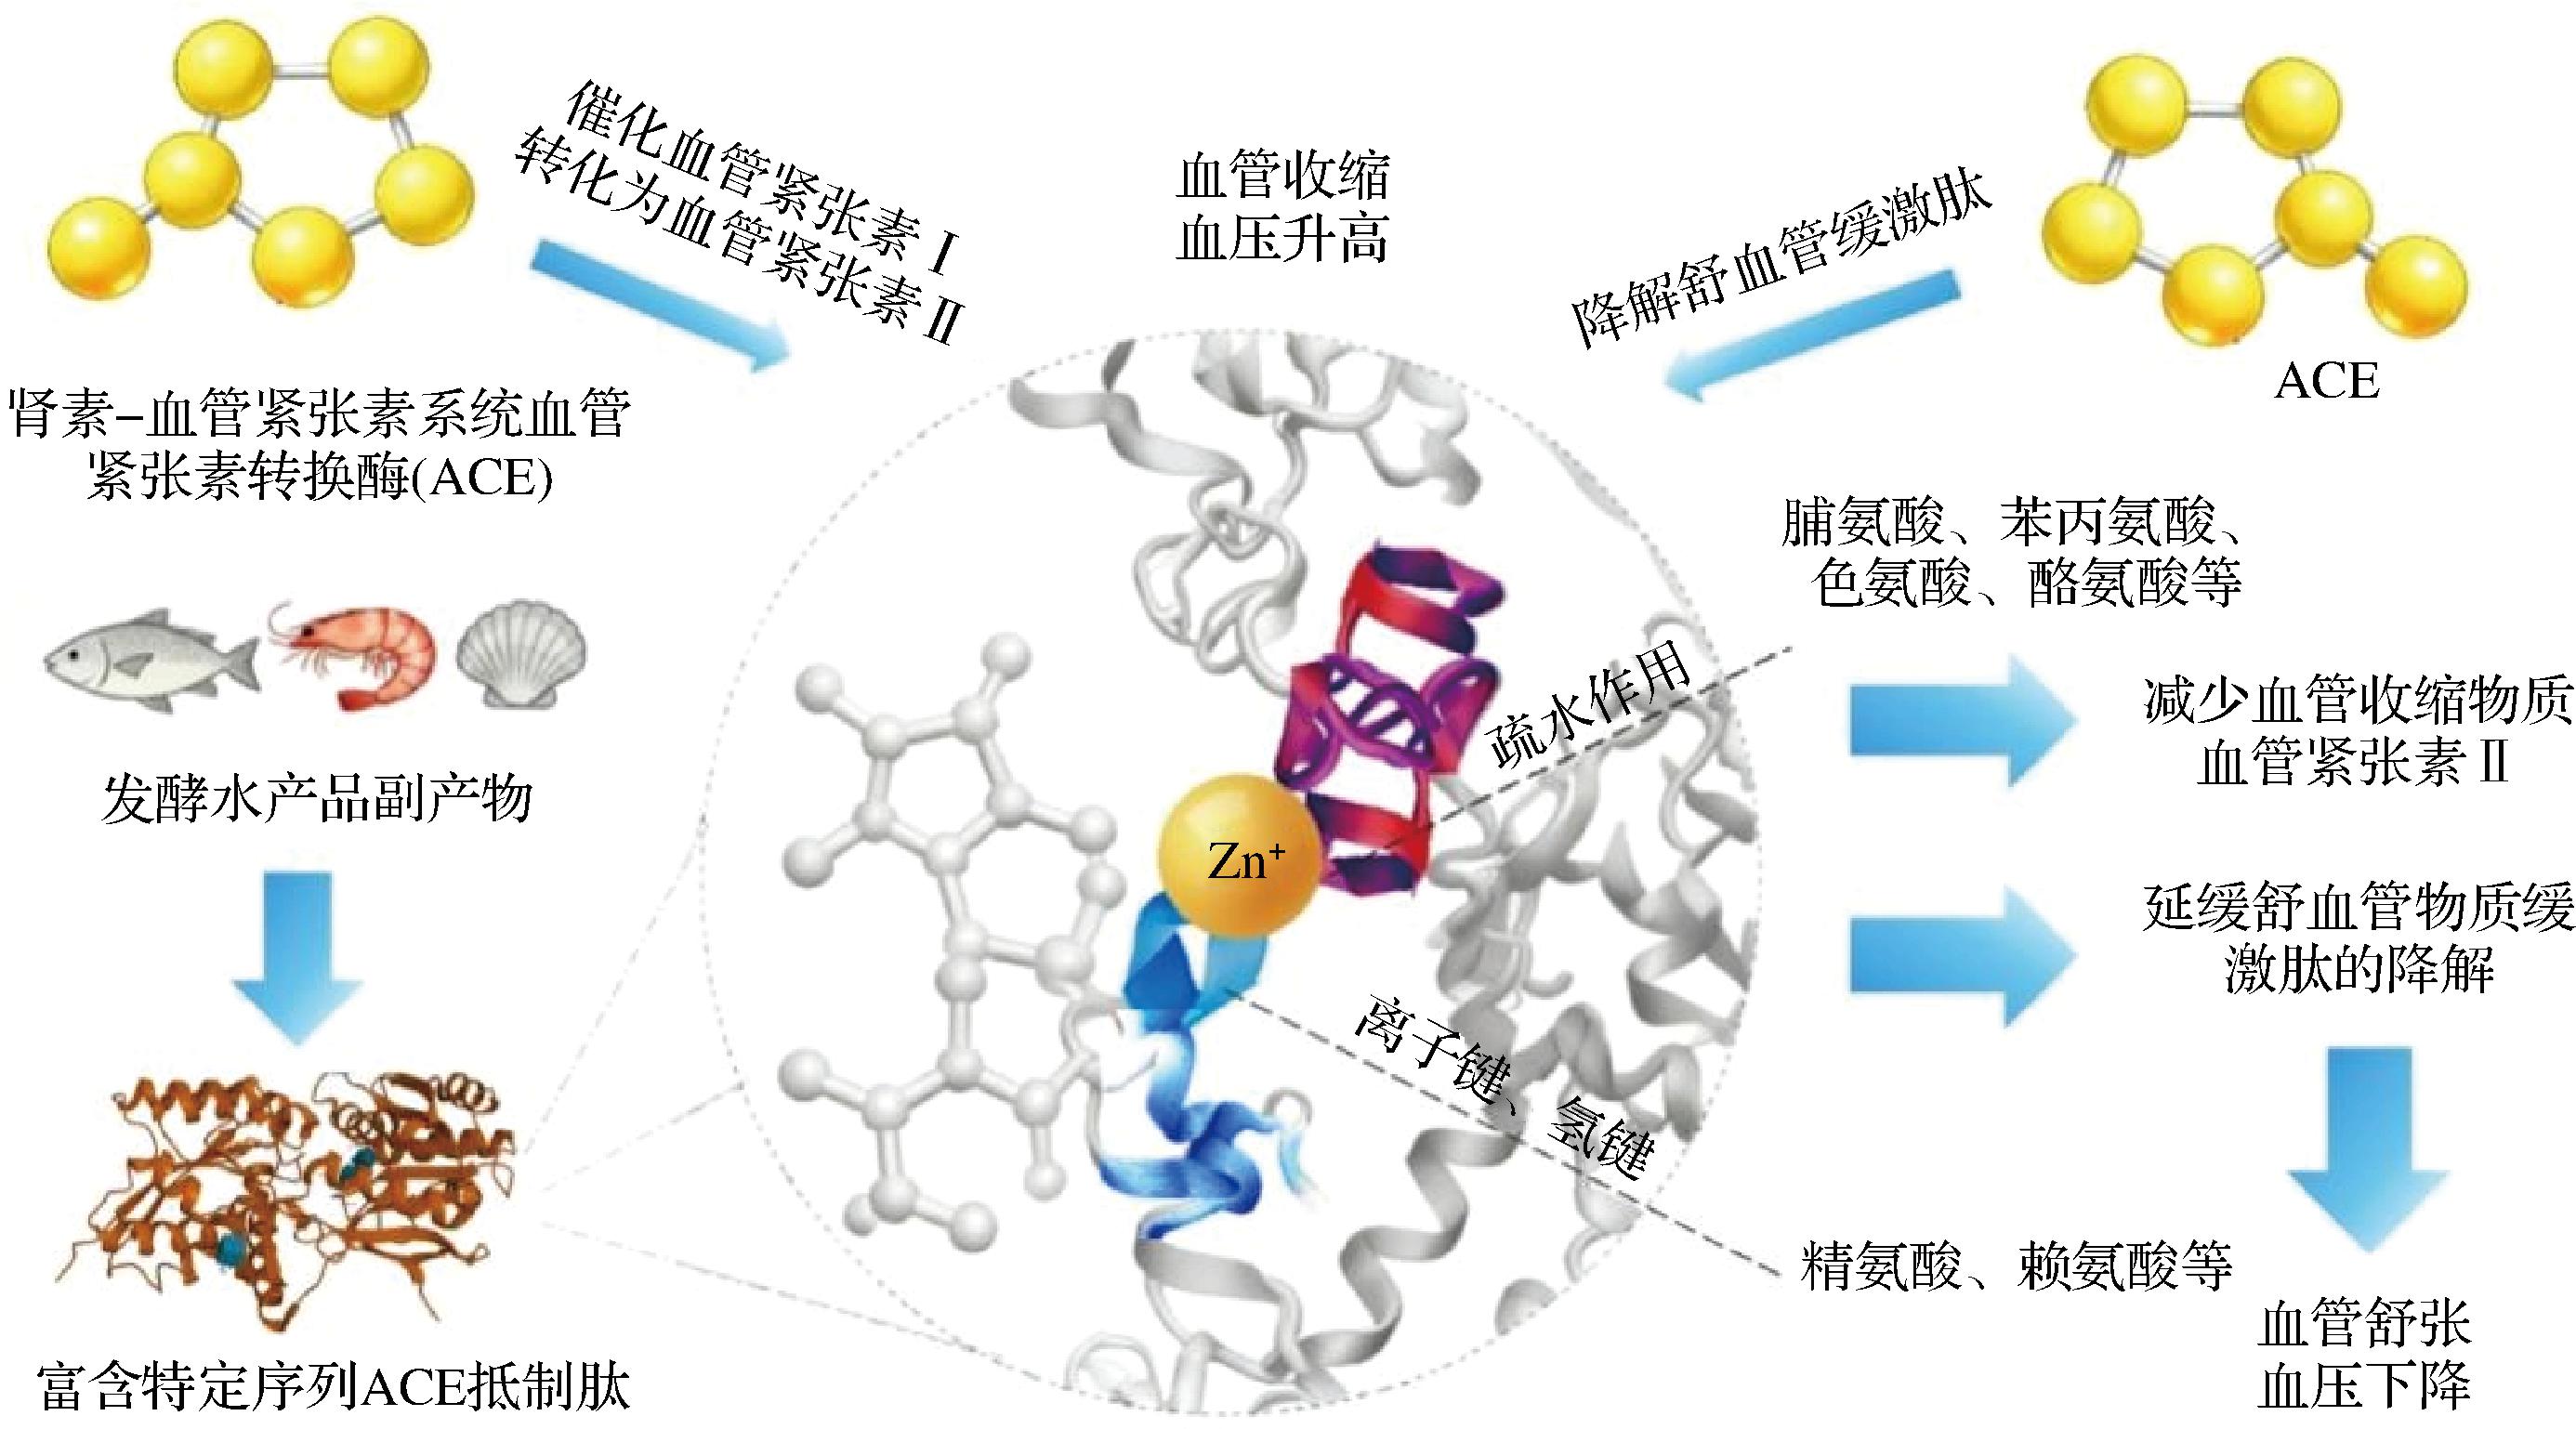
图3 活性肽降血压活性机制
Fig.3 Mechanism of antihypertensive activity of bioactive peptides
3.3 抗菌活性
抗菌肽作为一类具有广谱抑菌活性的小分子多肽,已在多种发酵水产品副产物中分离鉴定到新的抗菌肽。从发酵水产品中获得的抗菌肽通常具有阳离子性和两亲性的结构特点[50]。其抗菌机制源于其阳离子和两亲性结构特性,这些特性使其能够通过与带负电的细胞膜之间形成静电引力,进而通过“桶板模型”和“地毯模型”等方式嵌入并破坏脂质双分子层,导致细胞膜通透性增加和内容物泄漏,最终引发细胞死亡(图4)。此外,部分抗菌肽还能在穿透细胞膜后,作用于胞内的一些靶点,如通过嵌插或沟区结合方式干扰DNA复制与转录;通过抑制核糖体功能或伴侣蛋白活性阻碍蛋白质合成与正确折叠;或通过影响糖酵解、三羧酸循环等代谢途径及ATP酶活性,扰乱细胞的能量代谢稳态[51]。例如,Song等[29]从发酵黄鱼加工副产物中分离的肽SBF-3-1p(TFNTPAMYVAIQAVLSLYASGR)对植物病原真菌拟盘多毛孢(Pestalotiopsis sp.)表现出很强的抑制活性,该肽含有50%的疏水性氨基酸,其生成可能与微生物分泌的胰蛋白酶和谷氨酰内肽酶有关,这2种酶分别在精氨酸(Arg)、赖氨酸(Lys)及谷氨酸(Glu)的羧基侧发挥切割作用。Tao等[18]从发酵虾副产物中分离的抗菌肽PVQ9(AVFPSIVGRPR)具有45%的疏水性氨基酸,其能有效破坏吉氏库特氏菌(Kurthia gibsonii)的细胞壁,改变细胞膜通透性,使细胞内容物泄露,并与细菌DNA结合,诱导细菌死亡。
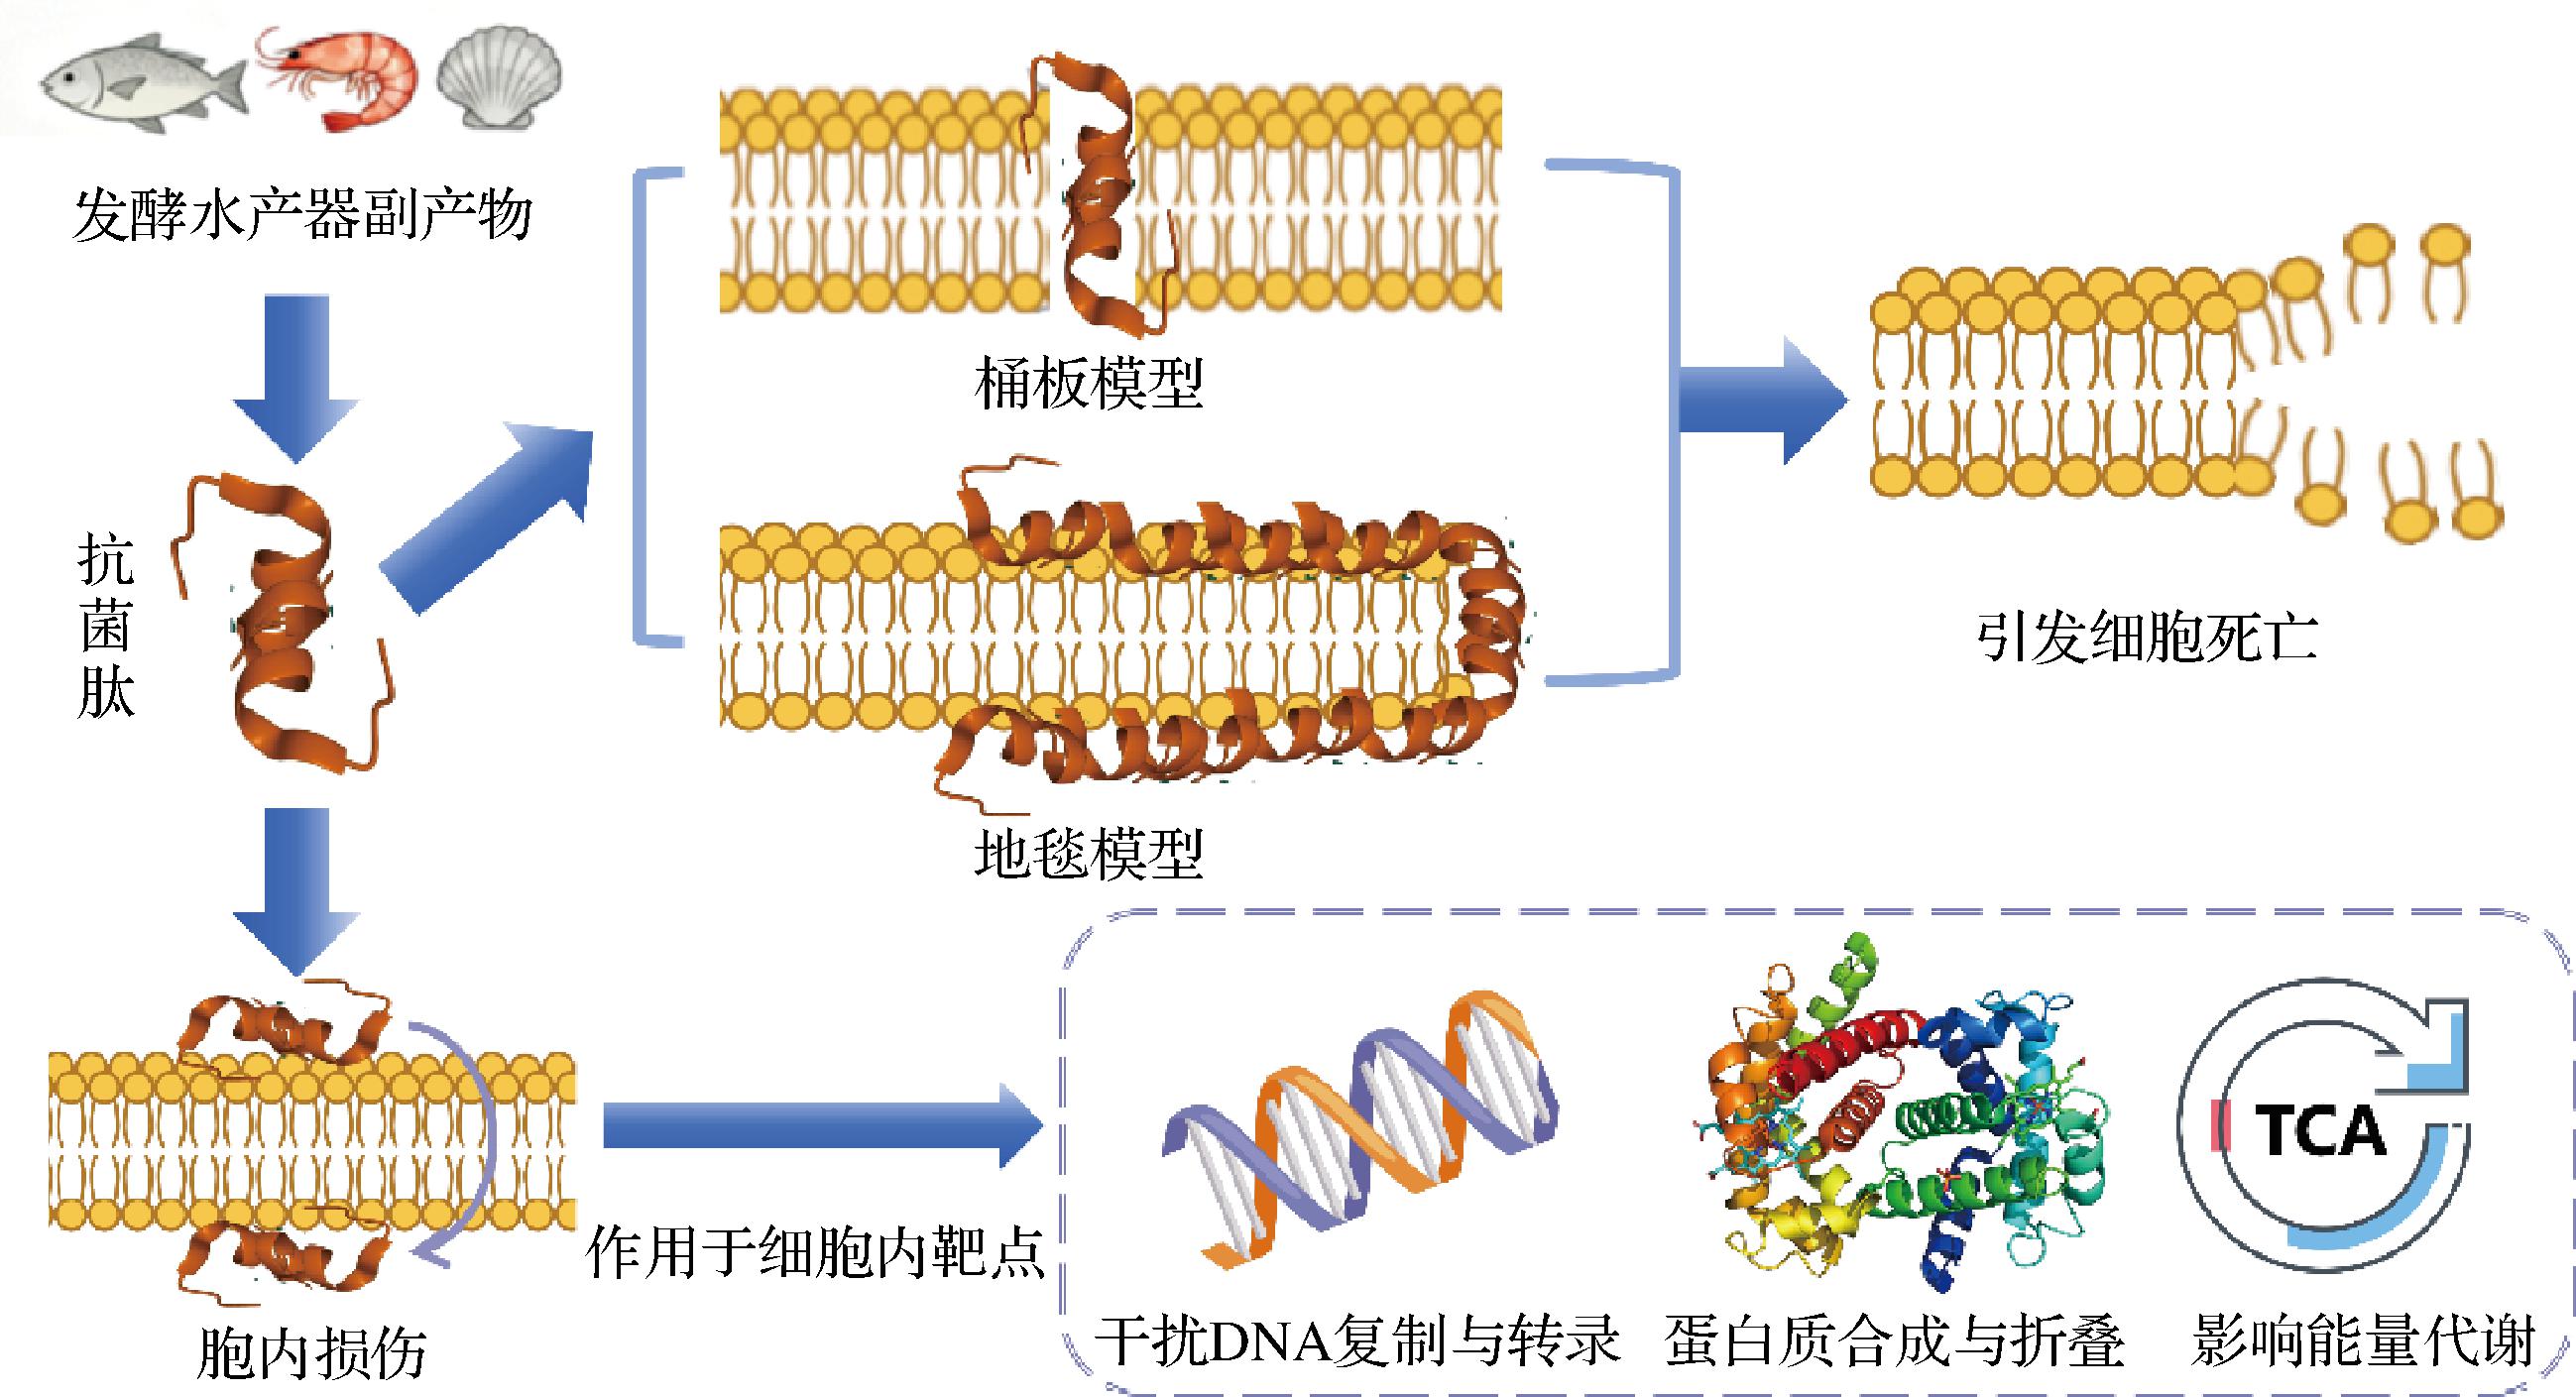
图4 活性肽抗菌活性机制
Fig.4 Antimicrobial mechanism of bioactive peptides
3.4 风味调节活性
鲜味感知是由鲜味肽直接激活鲜味受体或鲜味增强肽间接调节鲜味受体构象产生[52]。在发酵水产品中,蛋白质降解过程中释放出的特定肽段,是塑造其风味轮廓的重要化合物。其中,鲜味肽通常富含天冬氨酸(Asp)、谷氨酸(Glu)、精氨酸(Arg)等,它们能通过与口腔中的鲜味受体(主要是异源二聚体T1R1/T1R3、代谢型谷氨酸受体、细胞外钙敏感受体)结合,引发类似于谷氨酸钠(monosodium glutamate,MSG)的鲜味信号[53](图5)。与此同时,另一类被称为鲜味增强肽的组分,其自身鲜味可能不显著,但其能通过间接调节鲜味受体构象的方式,有效提升受体对鲜味物质的感知,从而增强鲜味的强度、持久性与整体风味饱满感[52]。
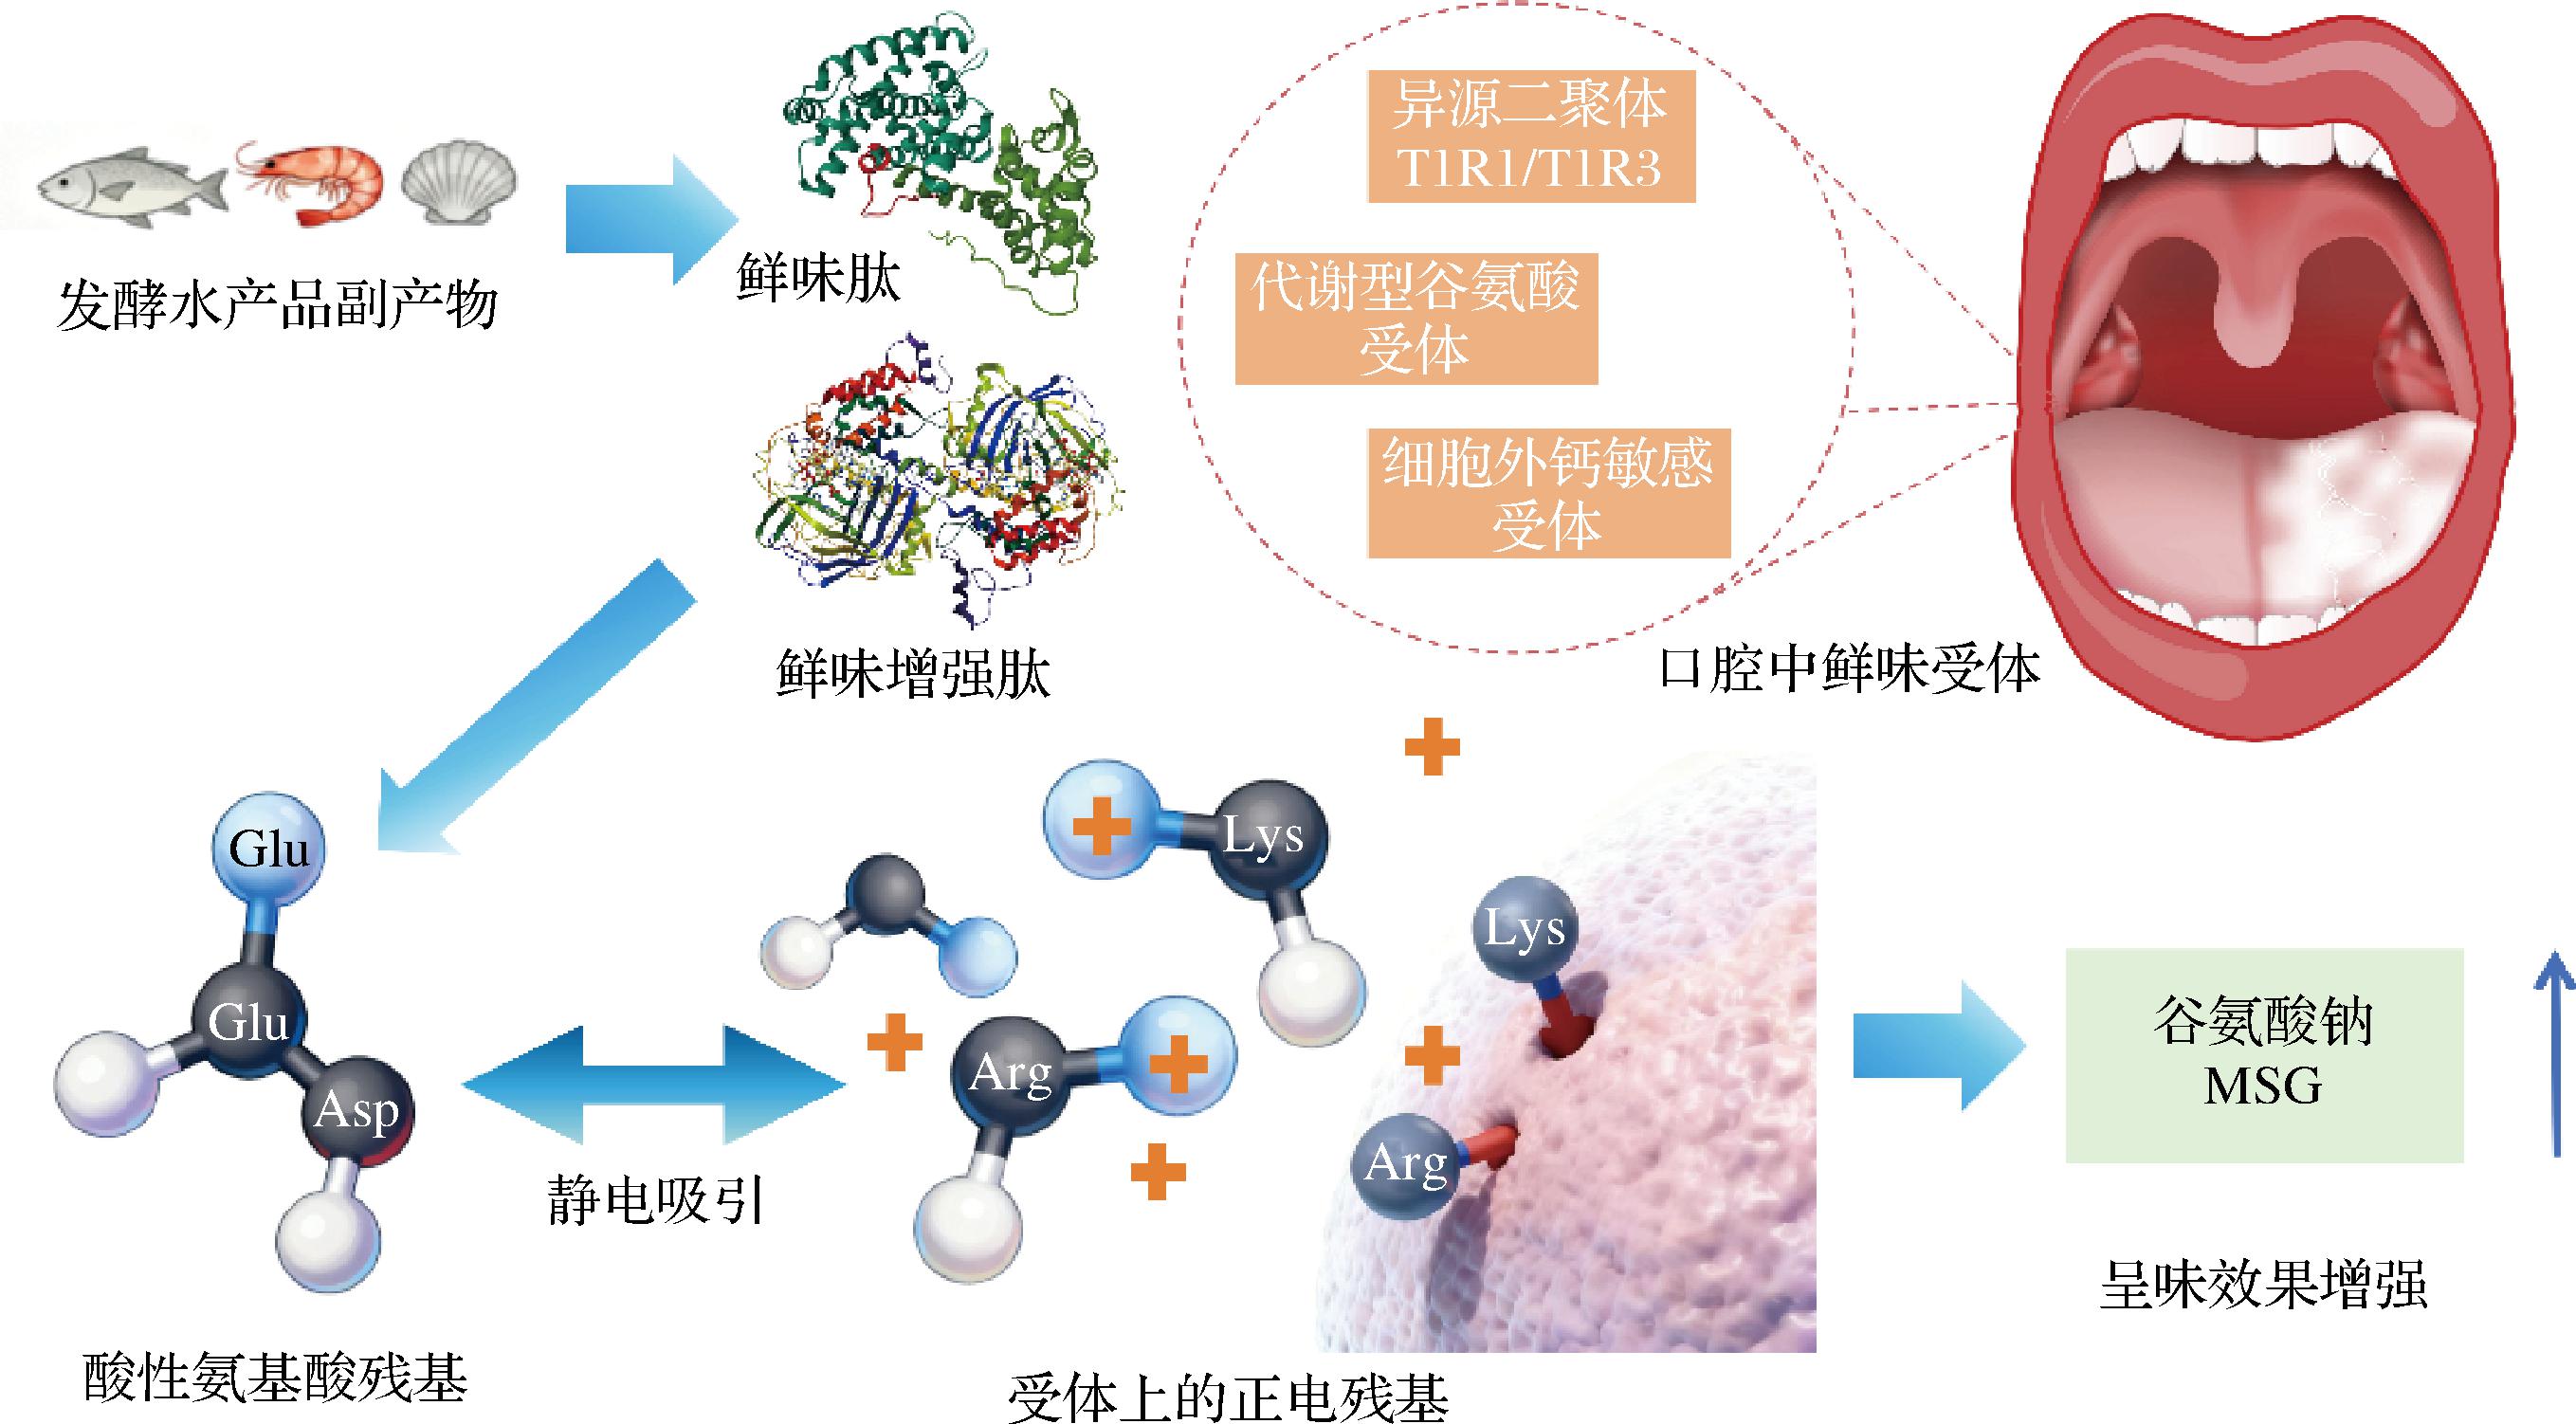
图5 活性肽风味调节活性机制
Fig.5 The mechanism of flavor regulation activity of bioactive peptides
鲜味肽与受体T1R1/T1R3的结合并非单一作用,而是由氢键、静电相互作用与疏水相互作用共同驱动[54]。其中,肽段与受体之间形成的氢键网络对于识别非常重要,Glu、Asp等酸性氨基酸残基通过静电吸引与受体上的正电残基(如Arg、Lys)结合[55]。已有研究从发酵海鲈鱼中鉴定出的鲜味肽NDLKDTSGKVVAK和AFLSDDKTKLELR,以及从发酵鳙鱼中发现的VKKLVEAGAK和ELPDGQ,其呈味活性已被证实;MD分析发现,这些肽段中的关键氨基酸残基(如Glu736、Asp743、Arg747等)通过与T1R1/T1R3受体的活性位点形成密集的氢键和静电网络,而其中的疏水残基则深入受体的疏水空腔,共同稳定了结合构象[38,56]。此外,Bai等[13]从发酵的干腌西班牙鲭鱼中鉴定出5个鲜味增强肽TFYNELRV、TFYNELR、TLFQPSF、LYANNVL、FAGDDAPRAVFPS,这些肽鲜味增强阈值在0.34~0.45 mg/mL。
3.5 其他活性
除上述活性外,发酵水产品副产物肽还具有降血糖、金属离子螯合、免疫调节、修复肠道屏障等多种功能。降血糖活性主要通过抑制DPP-IV增强胰岛素效应来实现。例如,Yang等[57]通过分子对接从发酵臭鳜鱼中快速筛选出与DPP-IV结合能较高的4条降糖肽,分别是EPAEAVGDWR(D37)、IPHESVDVIK(D22)、PDLSKHNNHM(D35)和PFGNTHNNFK(D1),这些肽中的EP-、IPH-、-NHM和PF-结构易通过氢键、盐桥和烷基与DPP-IV酶连接,说明具有高疏水性且能形成强氢键和盐桥的肽是缓解Ⅱ型糖尿病的潜在抑制肽。Yan等[21]从发酵扇贝裙边中筛选鉴定到一条新的肽段FEDPEFE,展现出优异的铁离子螯合能力,其在矿物质营养强化具有重要。张玮等[58]采用酶解-发酵联用技术从鲶鱼骨肉泥中获得多肽螯合钙,具有促进钙吸收的作用。
4 结论
微生物发酵技术为水产品加工副产物的高值化利用提供了一条绿色、高效的路径。通过利用乳酸菌、芽孢杆菌、霉菌等特定微生物或其协同体系,能够将副产物中的蛋白质水解为多种结构特异、功能多样的生物活性肽。这些肽段已被证实具有显著的抗氧化、降血压、抗菌、降血糖及风味调节等多种生理功能,其活性的发挥与特定的氨基酸序列、疏水性及空间结构密切相关。该技术不仅极大地提升了资源利用率,也为开发天然来源的功能性食品配料和药物先导物奠定了坚实的理论基础。未来研究应致力于通过多组学技术与AI相结合,深入解析发酵过程中微生物代谢网络与活性肽构效关系,最终实现活性肽的精准定向制备与功能预测。
[1] Singh S, Negi T, Sagar N A, et al.Sustainable processes for treatment and management of seafood solid waste[J].Science of the Total Environment, 2022, 817:152951.
[2] Ucak I, Afreen M, Montesano D, et al.Functional and bioactive properties of peptides derived from marine side streams[J].Marine Drugs, 2021, 19(2):71.
[3] Cui Y, Li X R, Sun Y R, et al.Separation, characterization, AI screening, and bioactivities of marine bioactive peptides:A review[J].Food Chemistry, 2025, 495:146312.
[4] Chandimali N, Bak S G, Hyun Park E, et al.Bioactive peptides derived from duck products and by-products as functional food ingredients[J].Journal of Functional Foods, 2024, 113:105953.
[5] 高宁, 昝丽霞, 何俊婷, 等.植物源生物活性肽的微生物发酵制备及生物活性研究进展[J].食品工业科技, 2025, 46(22):468-478.Gao N, Zan L X, He J T, et al.Research progress on microbial fermentation preparation and biological activity of plant-derived bioactive peptides[J].Science and Technology of Food Industry, 2025, 46(22):468-478.
[6] Sridhar K, Inbaraj B S, Chen B H.Recent developments on production, purification and biological activity of marine peptides[J].Food Research International, 2021, 147:110468.
[7] 李思怡, 姜雨彤, 妥彦峰, 等.微生物发酵法制备乳源生物活性肽研究进展[J].食品科学, 2023, 44(21):312-321.Li S Y, Jiang Y T, Tuo Y F, et al.Research progress in preparation of bioactive peptides from milk by microbial fermentation[J].Food Science, 2023, 44(21):312-321.
[8] 李彬彬, 龙正玉, 包爱明, 等.酸汤中微生物与风味物质及其相互关系的研究进展[J].食品与生物技术学报, 2025, 44(3):11-21.Li B B, Long Z Y, Bao A M, et al.Research progress on microorganisms and flavor compounds in sour soup and their interrelationships[J].Journal of Food Science and Biotechnology, 2025, 44(3):11-21.
[9] Ruthu, Murthy P S, Rai A K, et al.Fermentative recovery of lipids and proteins from freshwater fish head waste with reference to antimicrobial and antioxidant properties of protein hydrolysate[J].Journal of Food Science and Technology, 2014, 51(9):1884-1892.
[10] Carballo-S nchez M P, Gimeno M, Hall G M, et al.The radical-scavenging activity of a purified and sequenced peptide from lactic acid fermentation of Thunnus albacares by-products[J].Applied Biochemistry and Biotechnology, 2019, 189(4):1084-1095.
[11] Abd Rashid N Y, Manan M A, Pa’ee K F, et al.Evaluation of antioxidant and antibacterial activities of fish protein hydrolysate produced from Malaysian fish sausage (Keropok Lekor) by-products by indigenous Lactobacillus casei fermentation[J].Journal of Cleaner Production, 2022, 347:131303.
[12] 舒婷, 王琳, 邹小雨, 等.中华管鞭虾加工副产物发酵液对冷藏鱿鱼优势腐败菌的抑菌作用[J].食品工业科技, 2025, 46(11):151-162.Shu T, Wang L, Zou X Y, et al.Antibacterial effect of solenocera crassicornis processing by-products fermentation on specific spoilage organisms of squid refrigeration[J].Science and Technology of Food Industry, 2025, 46(11):151-162.
[13] Bai W D, Liang J X, Zhao W H, et al.Umami and umami-enhancing peptides from myofibrillar protein hydrolysates in low-sodium dry-cured Spanish mackerel (Scomberomorus niphonius) under the action of Lactobacillus plantarum[J].International Journal of Food Science and Technology, 2022, 57(8):5494-5503.
[14] Yang J, Liu P R, Fei Y T, et al.Enhancement of taste of low-sodium dry-cured mackerel (Scomberomorus niphonius) via the light fermentation with Lactobacillus plantarum R-1[J].LWT, 2025, 217:117356.
[15] 陶玮红, 林蓉, 梁铎, 等.源自发酵凡纳滨对虾的抗菌肽BCE3对蜡样芽孢杆菌的抑菌机制及其在米饭中的应用[J].微生物学报, 2024, 64(8):2768-2783.Tao H L, Lin R, Liang D,et al.The antimicrobial peptide BCE3 isolated from fermented Penaeus vannamei:Inhibition mechanism on Bacillus cereus and application in rice[J].Acta Microbiologica Sinica, 2024, 64(8):2768-2783.
[16] 汪诚, 邹小雨, 王家星, 等.不同初始pH对枯草芽孢杆菌发酵虾副产物的影响[J].食品安全质量检测学报, 2023, 14(6):247-254.Wan C, Zou X Y,Wang J X, et al.Effects of different initial pH on shrimp by-products fermentation incubated with Bacillus subtilis[J].Journal of Food Safety and Quality, 2023, 14(6):247-254.
[17] 陈敏, 陈道海.虎斑乌贼生殖腺多肽的制备工艺优化及其体外抗氧化活性[J].食品与发酵工业, 2019, 45(11):129-135.Chen M, Chen D H.Optimized preparation technology and in vitro antioxidant activities of cuttlefish (Sepia pharaonis) gonad peptides[J].Food and Fermentation Industries, 2019,45(11):129-135.
[18] Tao W H, Li W J, Aweya J J, et al.Bacillus subtilis fermented shrimp waste isolated peptide, PVQ9, and its antimicrobial mechanism on four Gram-positive foodborne bacteria[J].Food Microbiology, 2025, 125:104654.
[19] Zhi T X, Li X Y, Sadiq F A, et al.Novel antioxidant peptides from protein hydrolysates of scallop (Argopecten irradians) mantle using enzymatic and microbial methods:Preparation, purification, identification and characterization[J].LWT, 2022, 164:113636.
[20] Abd Rashid N Y, Indran S R, Abdul Manan M, et al.Valorization of Malaysian fish sausage (Keropok Lekor) by-products into bioactive fish protein hydrolysate by Bacillus licheniformis fermentation:Influence of by-products characteristics on nutritional, antioxidant, and antibacterial capacities[J].Waste and Biomass Valorization, 2024, 15(5):3169-3185.
[21] Yan X, Yue Y, Guo B R, et al.Novel microbial fermentation for the preparation of iron-chelating scallop skirts peptides-its profile, identification, and possible binding mode[J].Food Chemistry, 2024, 451:139493.
[22] Gao J, Liu Q, Zhao L, et al.Identification and antihypertension study of novel angiotensin I-converting enzyme inhibitory peptides from the skirt of Chlamys farreri fermented with Bacillus natto[J].Journal of Agricultural and Food Chemistry, 2021, 69(1):146-158.
[23] 周更辉, 耿铭阳, 马思沅, 等.4种水产副产品纳豆菌发酵产物的生物活性比较[J].中国食品学报, 2023, 23(9):315-323.Zhou G H, Geng M Y, Ma S Y, et al.Comparsing of the bioactivity of the fermentation output from four kinds of fishery by-product by Bacillus natto[J].Journal of Chinese Institute of Food Science and Technology, 2023, 23(9):315-323.
[24] Yang L, Wan Z M, Yao Y S, et al.Production of angiotensin-converting enzyme and renin inhibitory hydrolysate by fermentation of squid processing by-product[J].Waste and Biomass Valorization, 2022, 13(12):4735-4747.
[25] Chen Y T, Hsieh S L, Gao W S, et al.Evaluation of chemical compositions, antioxidant capacity and intracellular antioxidant action in fish bone fermented with Monascus purpureus[J].Molecules, 2021, 26(17):5288.
[26] Fang B H, Sun J N, Dong P, et al.Conversion of turbot skin wastes into valuable functional substances with an eco-friendly fermentation technology[J].Journal of Cleaner Production, 2017, 156:367-377.
[27] Takenaka S, Kato M, Oribe Y, et al.Exploring the potential of katsuobushi grounds as a source of bioactive peptides through fermentation with Aspergillus sydowii[J].Process Biochemistry, 2023, 130:534-544.
[28] Lyu X R, Yuan S, Sun Y C, et al.Isolation and identification of a novel antioxidant peptide from fermented sea cucumber (Stichopus japonicus) intestine and its protective effects on HepG2 cells from oxidative damage[J].Journal of Agricultural and Food Chemistry, 2025, 73(15):9062-9075.
[29] Song R, Shi Q Q, Gninguue A, et al.Purification and identification of a novel peptide derived from by-products fermentation of spiny head croaker (Collichthys lucidus) with antifungal effects on phytopathogens[J].Process Biochemistry, 2017, 62:184-192.
[30] Abun A, Rusmana D, Haetami K, et al.Evaluation of the nutritional value of fermented Pangasius fish waste and its potential as a poultry feed supplement[J].Veterinary World, 2025, 18(2):355-366.
[31] Ximenes J C M, Hissa D C, Ribeiro L H, et al.Sustainable recovery of protein-rich liquor from shrimp farming waste by lactic acid fermentation for application in tilapia feed[J].Brazilian Journal of Microbiology, 2019, 50(1):195-203.
[32] Cano Y Postigo L O, Jacobo-Velaquez D A, Guajardo-Flores D, et al.Solid-state fermentation for enhancing the nutraceutical content of agrifood by-products:Recent advances and its industrial feasibility[J].Food Bioscience, 2021, 41:100926.
[33] Fang Y W, Wang S J, Liu S, et al.Solid-state fermentation of Acanthogobius hasta processing by-products for the production of antioxidant protein hydrolysates with Aspergillus oryzae[J].Brazilian Archives of Biology and Technology, 2015, 58(3):343-352.
[34] Gervasi T, Mandalari G.Valorization of agro-industrial orange peel by-products through fermentation strategies[J].Fermentation, 2024, 10(5):224.
[35] Carballo-Snchez M P, Ramrírez J C, Gimeno M, et al.Papaya (Carica papaya) and tuna (Thunnus albacares) by-products fermentation as biomanufacturing approach towards antioxidant protein hydrolysates[J].Revista Mexicana de Ingenieria Quimica, 2016, 15(1):91-100.
[36] Alavi F, Ciftci O N.Purification and fractionation of bioactive peptides through membrane filtration:A critical and application review[J].Trends in Food Science &Technology, 2023, 131:118-128.
[37] Hu X, Yang X Q, Wang T T, et al.Purification and identification of antioxidant peptides from round scad (Decapterus maruadsi) hydrolysates by consecutive chromatography and electrospray ionization-mass spectrometry[J].Food and Chemical Toxicology, 2020, 135:110882.
[38] Li J, Cheng K Y, Liu Y, et al.Identification of a novel umami peptides from fermented Bighead carp and its umami mechanism via molecular dynamic simulation[J].LWT, 2025, 223:117753.
[39] 孙洁, 李燕, 郑昌亮, 等.中国毛虾二肽基肽酶-IV抑制肽的分离纯化与结构鉴定[J].食品与发酵工业, 2023, 49(1):160-167.Sun J, Li Y, Zheng C L, et al.Purification and identification of dipeptidyl peptidase-IV inhibitory peptide from Acetes chinensis hydrolysates[J].Food and Fermentation Industries, 2023, 49(1):160-167.
[40] Bai G P, Pan Y L, Zhang Y M, et al.Research advances of molecular docking and molecular dynamic simulation in recognizing interaction between muscle proteins and exogenous additives[J].Food Chemistry, 2023, 429:136836.
[41] Chang J R, Wang H T, Su W T, et al.Artificial intelligence in food bioactive peptides screening:Recent advances and future prospects[J].Trends in Food Science &Technology, 2025, 156:104845.
[42] Qi L L, Du J L, Sun Y, et al.Umami-MRNN:Deep learning-based prediction of umami peptide using RNN and MLP[J].Food Chemistry, 2023, 405:134935.
[43] Zhang J C, Yan W J, Zhang Q C, et al.Umami-BERT:An interpretable BERT-based model for umami peptides prediction[J].Food Research International, 2023, 172:113142.
[44] Das P, Sercu T, Wadhawan K, et al.Accelerating antimicrobial discovery with controllable deep generative models and molecular dynamics[J].Arxiv Preprint Arxiv, 2005, 11248:2020.
[45] Jegani K T, Balde A, Nazeer R A.A review on anti-inflammatory and antioxidant peptides derived from marine organisms:Mechanism of action and therapeutic applications[J].Food Bioscience, 2025, 63:105745.
[46] Ashaolu T J, Zarei M, Agrawal H, et al.A critical review on immunomodulatory peptides from plant sources;action mechanisms and recent advances[J].Critical Reviews in Food Science and Nutrition, 2024, 64(20):7220-7236.
[47] Li G S, Zhan J Q, Hu L P, et al.Identification of a new antioxidant peptide from porcine plasma by in vitro digestion and its cytoprotective effect on H2O2 induced HepG2 model[J].Journal of Functional Foods, 2021, 86:104679.
[48] 张梦源, 张新雪, 刘浩宇, 等.食源性肽的稳定性、结构解析及生物活性研究进展[J].食品与发酵工业,2026,52(5):393-402.Zhang M Y, Zhang X X, Liu H Y, et al.Research progress on the stability, structural analysis and biological activity of food-derived peptides[J].Food and Fermentation Industries,2026,52(5):393-402.
[49] Guo R X, Shen L.Potentials of food-derived peptides as novel antihypertensive agents and their acting mechanisms[J].Food Chemistry, 2025, 494:146183.
[50] Luo Y, Song Y Z.Mechanism of antimicrobial peptides:Antimicrobial, anti-inflammatory and antibiofilm activities[J].International Journal of Molecular Sciences, 2021, 22(21):11401.
[51] Wu Y Z, Wang J, Hu Y H, et al.Antimicrobial peptides:Classification, mechanism, and application in plant disease resistance[J].Probiotics and Antimicrobial Proteins, 2025, 17(3):1432-1446.
[52] Zhang J N, Sun-Waterhouse D, Su G W, et al.New insight into umami receptor, umami/umami-enhancing peptides and their derivatives:A review[J].Trends in Food Science &Technology, 2019, 88:429-438.
[53] 刘源, 王文利, 张丹妮.食品鲜味研究进展[J].中国食品学报, 2017, 17(9):1-10.Liu Y, Wang W L, Zhang D N, et al.Progress in food umami research[J].Journal of Chinese Institute of Food Science and Technology, 2017.17(9):1-10.
[54] 林怡秦, 陈秉彦, 王榕, 等.鱼贝类水产鲜味肽的呈味特性、制备、筛选及加工过程呈味变化的研究进展[J].食品工业科技, 2025, 46(21):464-474.Lin Y Q, Chen B Y, Wang R, et.Research progress on the flavor characteristics, preparation, screening, and taste changes during processing of flavor peptides from fish and shellfish[J].Science and Technology of Food Industry, 2025, 46(21):464-474.
[55] Chen J Y, Lyu H, Li J S, et al.Upcycling shrimp processing by-products into dual-functional peptides:Insights into bioactivity and flavor[J].Food Chemistry, 2025, 493:145917.
[56] Xiang H, Wang C X, Wu Y Y, et al.Umami peptide identification and interaction dynamics in traditional fermented seabass:Bridging sensory evaluation with molecular insights[J].LWT, 2025, 228:118028.
[57] Yang D Q, Li C S, Li L H, et al.Discovery and functional mechanism of novel dipeptidyl peptidase Ⅳ inhibitory peptides from Chinese traditional fermented fish (Chouguiyu)[J].Current Research in Food Science, 2022, 5:1676-1684.
[58] 张玮, 郭耀华, 马俪珍, 等.利用酶解和发酵技术从淡水鱼副产物中提取多肽螯合钙的研究现状[J].保鲜与加工, 2017, 17(2):120-125.Zhang W, Guo Y H, Ma L Z, et al.Current research on extraction of peptides chelating calcium from freshwater fish by-products using enzymatic hydrolysis and fermentation technology[J].Storage and Process, 2017, 17(2):120-125.