四甲基吡嗪(2, 3, 5, 6-tetramethylpyrazine,TTMP),又称川芎嗪,是一种含六元杂环且环上带2个对称氮原子的弱碱性吡嗪类化合物,分子式为C8H12N2(图1),TTMP在冷水与乙醚中的溶解度较低,仅能少量溶解,易溶于乙醇、氯仿等溶剂,具吸湿性与升华性,易溶于乙醇、氯仿等溶剂,有吸湿性和升华性,化学性质稳定[1]。TTMP是从中药川芎、姜科植物温莪术根茎等天然植物中提取,是川芎的核心活性生物碱。具有愉悦的特殊香气,主要呈现烤香、坚果香、爆米花香、可可香,还带有甜香和花香[2],能赋予白酒丰富香气层次,对其他香味物质有烘托叠加效应,可丰满白酒香气,强化酱香、芝麻香等香型的典型风格,提升酒体风味复杂度与协调性[3]。
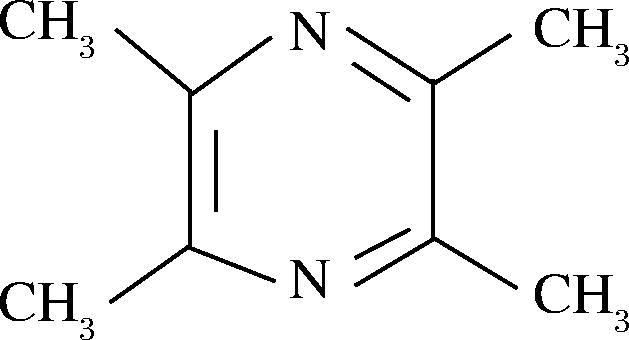
图1 TTMP化学分子式
Fig.1 Chemical formula of tetramethylpyrazine
1 TTMP的功用
在白酒酿造过程中,TTMP主要来源于高温大曲、堆积和发酵过程,并于蒸馏环节富集[4],作为一种具有可可、焙烤等多元复合香气特征的关键风味物质,TTMP对提升酒体焦酱香风味的浓郁度与层次感具有重要作用。研究发现将高产TTMP贝莱斯芽孢杆菌(Bacillus velezensis)DQ-B102接种于酱香型白酒模拟发酵培养基中,不仅能显著提升酒醅中的TTMP产量,增强酒体的焦酱香风味,还能抑制梭菌属、富集芽孢杆菌属,优化微生物群落结构[5]。
TTMP除了作食品风味添加剂,更重要的是对人体健康有益,并已被证明具有多种药理活性。TTMP对动脉粥样硬化和内皮细胞有明显的保护作用,还可与芍药苷组成复方通过上调软骨生成刺激因子1环状RNA(circular stimulator of chondrogenesis 1,circSCRG1),吸附微小RNA-1268b(microRNA-1268b, miR-1268b)抑制其活性,进而下调促血管新生的NR4A1蛋白表达,阻断内皮细胞增殖、迁移及管腔形成,减少斑块内异常血管新生,稳定动脉粥样硬化斑块[6]。TTMP通过激活 Nrf2信号通路,促进γ-谷氨酰半胱氨酸合成酶催化亚基、γ-谷氨酰半胱氨酸合成酶调节亚基表达以增强谷胱甘肽合成,调节葡萄糖代谢维持脑能量供应,降低谷氨酸、丙二醛水平并提高超氧化物歧化酶活性,减轻偏头痛相关氧化应激与神经元损伤,辅助保护神经功能[7]。药理学研究表明,TTMP可透过血脑屏障,通过阻滞电压依赖型钙通道抑制钙超载、提高超氧化物歧化酶活性以拮抗氧自由基损伤、调节NO与内皮素含量,改善缺血区微循环,增强神经保护,还可通过保护海马神经元改善学习记忆等功能[8]。研究表明,TTMP对结直肠癌细胞(SW480、CT26)具有显著抗肿瘤作用,TTMP通过激活p53依赖性线粒体凋亡通路并将细胞周期阻滞于G0/G1期,抑制癌细胞生长增殖并诱导其凋亡[9]。研究表明,低浓度TTMP对缺血再灌注损伤的视网膜神经节细胞具有保护作用,通过激活磷脂酰肌醇-3-激酶/蛋白激酶B/哺乳动物雷帕霉素靶蛋白(phosphoinositide 3-kinase /protein kinase B/mammalian target of rapamycin,PI3K/Akt/mTOR)信号通路,上调通路相关蛋白磷酸化水平,同时下调自噬相关蛋白的表达,抑制细胞凋亡与自噬,可提升细胞活力。减少自噬体数量,抑制细胞凋亡,提升细胞活力[10]。TTMP还可能是治疗2型糖尿病的潜在药物。TTMP对代谢调节有积极作用;可改善全身胰岛素抵抗,抑制白色脂肪组织的脂质分解,降低脂质过氧化程度[11]。TTMP能够对抗高糖诱导的血管平滑肌细胞损伤,其核心保护机制在于抑制细胞内氧化应激,即通过降低丙二醛含量、提高超氧化物歧化酶活性来减少高糖刺激下过量的活性氧生成。更重要的是,TTMP同时抑制了MAPK信号通路中c-Jun氨基末端激酶、p38丝裂原活化蛋白激酶和细胞外信号调节激酶3个关键蛋白的磷酸化,从而有效阻断了由高糖引起的血管平滑肌细胞的异常增殖和迁移,共同构成了其对血管平滑肌的全面保护作用[12]。此外,TTMP对糖尿病小鼠创面愈合的促进作用,通过调节巨噬细胞的表型极化,将伤口处长期存在的促炎型M1巨噬细胞极化为修复型M2巨噬细胞,显著减轻了伤口部位的慢性炎症,并促进了关键的修复过程,包括促进血管新生和胶原蛋白沉积,从而加速了愈合的各个阶段[13]。
2 TTMP形成机制
2.1 美拉德反应
美拉德反应涉及羰基与氨基化合物之间的复杂化学过程,其在加热条件下会经历聚合与缩合等反应,并形成种类丰富的醛类、酮类中间产物。理论分析表明,这些中间产物中存在可作为TTMP合成潜在前体物的羰基化合物,尽管Koehler等[14]在还原糖与铵盐/氨基酸的美拉德反应模型中成功合成甲基吡嗪、2,3 -二甲基吡嗪等烷基吡嗪,却未检测到TTMP,这或许源于TTMP高度对称的分子结构对其形成构成了独特的热力学挑战。美拉德反应作为非酶促过程,通常需在高温(>100 ℃)、碱性(pH≥7)及低水分(<25%)条件下高效进行,而这与中国白酒的实际酿造环境存在差异。但乙偶姻与铵盐的反应动力学研究表明,即便在酸性条件下,TTMP生成路径依然畅通,这为白酒中TTMP的来源提供了关键解释。有研究[15-16]发现微生物不直接生成TTMP,仅通过积累乙偶姻为后续反应提供原料,TTMP主要核心机制是美拉德反应,微生物发酵产生的TTMP含量远低于美拉德反应的含量。白酒中TTMP形成集中于高温制曲、高温堆积、蒸馏阶段。制曲与堆积时,耐高温菌株固态发酵生成TTMP前体乙偶姻;蒸馏阶段TTMP还可经美拉德反应产生并进入白酒。虽酸碱性影响美拉德反应,但酒醅酸性环境下,菌株将氮转为氨,乙偶姻与氨反应仍能生成TTMP[17]。
白酒中TTMP主要源于制曲和堆积发酵的美拉德反应与微生物代谢。高温制曲、堆积发酵中,美拉德反应生成TTMP,糟醅中TTMP经蒸馏进入原酒,是酒中TTMP重要来源[18]。
2.2 微生物代谢转化作用
早在1962年,Kosuge等[19]在日本的发酵豆制品“纳豆”分离得到了1株产TTMP的纳豆芽孢杆菌(Bacillus natto),同时发现,该菌在以天冬酰胺、精氨酸、天冬氨酸等氨基酸及氯化铵为氮源的培养基中均能产TTMP。随着研究的深入,科研人员明确TTMP合成路径以微生物代谢中的乙偶姻合成途径为基础构建。1967年,Demain等[20]报道枯草芽孢杆菌(Bacillus subtilis)培养体系中,TTMP由糖代谢产物3-羟基丁酮与氨基酸的氨基反应生成,证实了这2种物质在TTMP合成中的关键作用。芽孢杆菌合成TTMP的独特途径,其本质是1条由特定基因簇编码的、以中心碳代谢物为直接前体的“乙偶姻途径”。芽孢杆菌合成TTMP的途径分为2个阶段。首先,在细胞内进行酶促反应合成前体:葡萄糖经糖酵解途径生成丙酮酸,由α-乙酰乳酸合酶和α-乙酰乳酸脱羧酶催化,将丙酮酸转化为关键前体乙偶姻。随后,在细胞外/体内自发进行化学转化:乙偶姻与培养环境中的氨进行非酶促反应,最后经空气氧化生成终产物TTMP[21-22](图2)。值得注意的是,该过程的限速步骤在于前体乙偶姻的积累量。通过敲除磷酸烯醇丙酮酸羧化激酶(phosphoenolpyruvate carboxykinase,pckA)编码基因,可以扰动中心碳代谢,增加流向丙酮酸的碳流,从而间接大幅提高乙偶姻的产量,最终显著提升TTMP的合成效率。此途径完美体现了微生物通过核心代谢为自发化学反应提供前体的独特合成逻辑[23]。贡献[24]在对枯草芽孢杆菌产酱香风味代谢通路的研究中发现,pckA基因通过调控三羧酸循环中磷酸烯醇式丙酮酸的生成,对酱香风味起到负向调控作用。实验结果显示,pckA基因敲除菌株发酵的豆豉中,乙偶姻相对含量由 8.618%下降至 7.721%,而TTMP相对含量则由 12.444% 上升至 15.394%。另一方面,调控细胞内外低聚糖转运的 msmE 基因,则通过影响糖酵解途径中丙酮酸的代谢,正向调控酱香风味的形成。在 msmE 敲除菌株中,乙偶姻相对含量显著上升至28.122%,而TTMP相对含量则下降至9.124%。
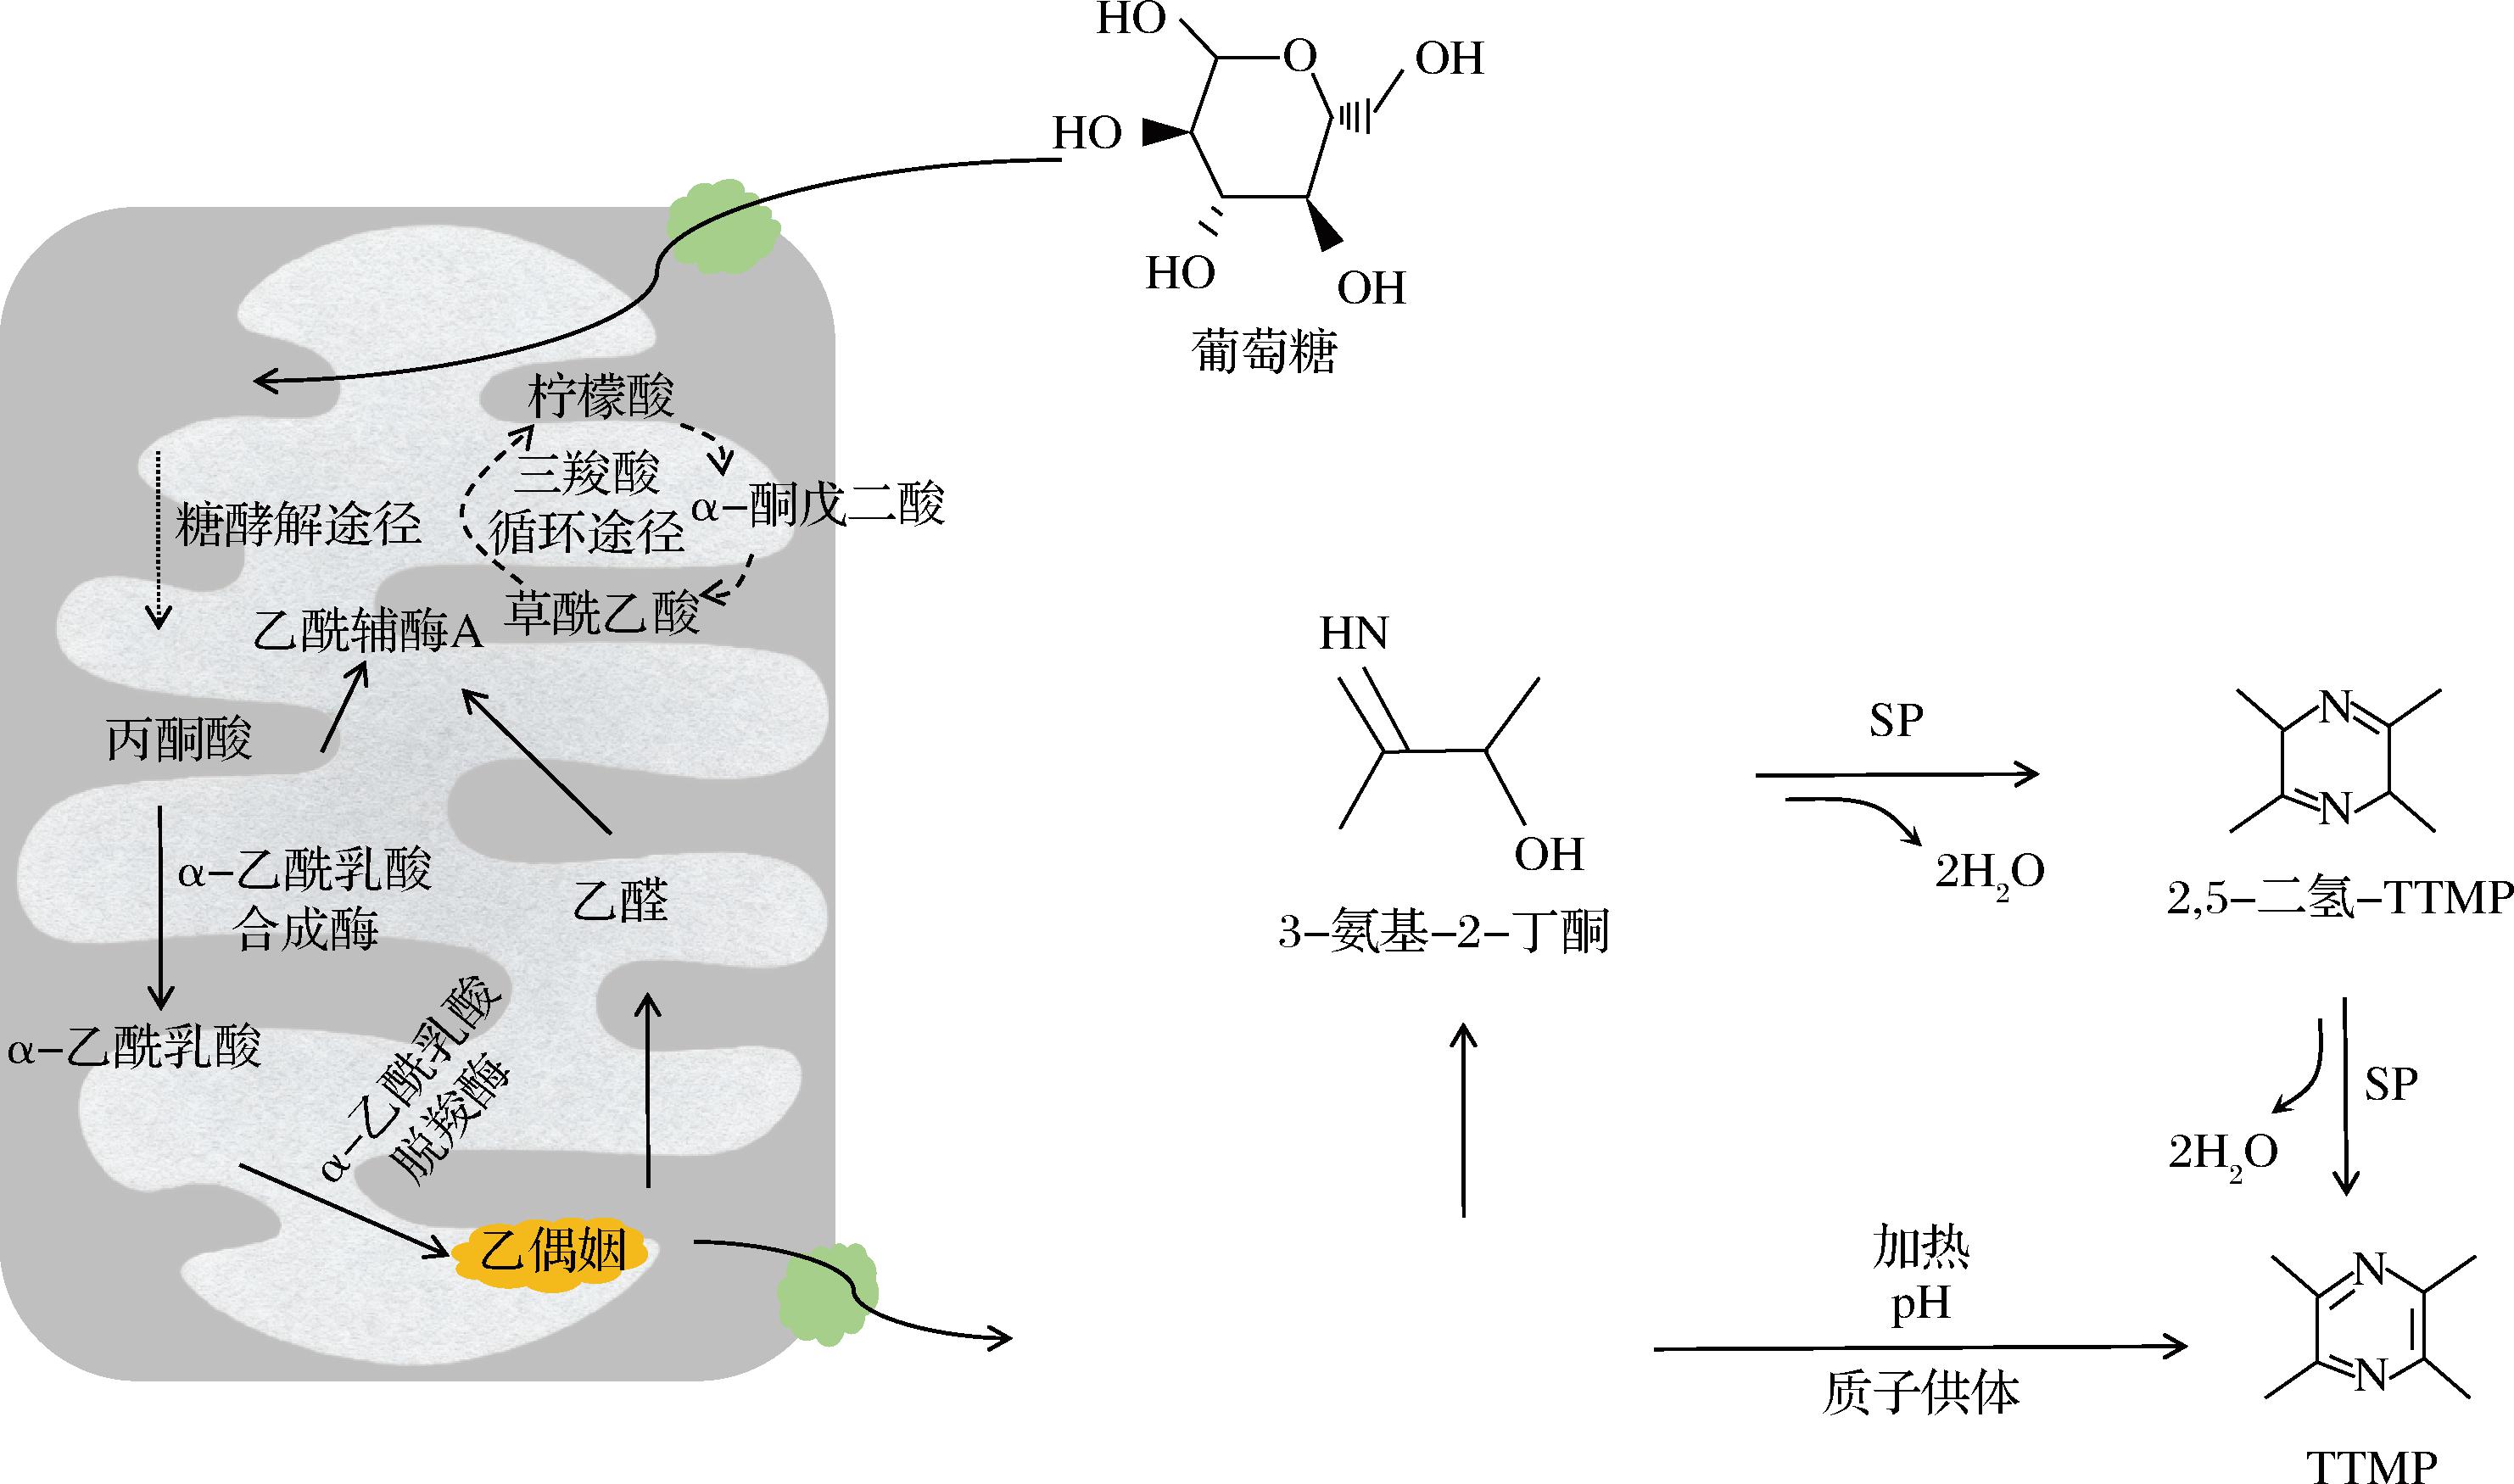
图2 微生物产TTMP代谢途径
Fig.2 Metabolic pathway for microbial production of tetramethylpyrazine
2.3 植物-微生物共代谢合成机制
植物源TTMP的形成并非单一依赖“植物自主合成”或“微生物独立合成”,而是以“共代谢”为核心特征,其中川芎-内生菌体系是典型代表。
肖月[25]通过川芎无菌苗实验证实,川芎自身不具备完整的TTMP合成通路:转录组仅检测到α-乙酰乳酸合成酶(α-acetolactate synthase,AlsS)基因,缺乏关键的α-乙酰乳酸脱羧酶(α-acetolactate decarboxylase,AlsD)基因,代谢组未发现TTMP及前体乙偶姻,证明植物无法独立完成 TTMP 合成。但川芎可通过“招募内生菌”构建共代谢体系:其根部可分泌有机酸、糖类物质吸引根际的枯草芽孢杆菌,菌株通过分泌纤维素酶/果胶酶降解植物细胞壁,定殖于根部细胞内及间隙;随后利用川芎提供的淀粉、蔗糖(碳源)与氨基酸(氮源),通过自身的糖酵解途径生成丙酮酸,再经AlsS催化生成α-乙酰乳酸,随后α-乙酰乳酸在脱羧酶作用下转化为乙偶姻,最终乙偶姻与铵离子反应生成TTMP,进而实现TTMP在植物体内的积累。最终实现TTMP在植物体内的积累。
3 TTMP的制备方法
3.1 植物提取法
川芎为伞形科藁本属多年生草本植物,其干燥根茎是我国传统中医药中的常用药材。截至目前,已从川芎中分离鉴定出200余种化学成分,涵盖酞类、萜类、生物碱、多糖及有机酸等多个类别[26]。TTMP是川芎中主要的生物碱成分,川芎植株中TTMP含量极低。将干燥的川芎根茎粉碎过筛,以乙醇为溶剂进行加热回流提取,合并滤液并减压浓缩,将浓缩液通过大孔吸附树脂柱进行纯化,用体积分数30%乙醇溶液洗脱,最后回收洗脱液即得目标产物[27]。因TTMP易升华,所以要求在提取过程中严格控制温度。
植物源TTMP的产业化应用受多重因素制约。其天然含量低,大规模种植占用耕地且效率不高;原料可利用部位少、质量波动大,影响提取稳定性。工艺上依赖大量有机溶剂,带来环境压力与高处理成本,加之提取率低、周期长,难以满足工业化对效率与成本的控制要求,限制了该技术的规模化推广。而宋煜等[28]采用正交试验设计结合HPLC分析技术,对川芎中TTMP的提取工艺进行系统优化,确定最佳工艺条件为:体积分数80%乙醇溶液、12倍溶剂用量、回流提取2 h。该工艺显著提高了TTMP的提取效率,提取量从超声波提取法的0.498 mg/50 g大幅提升至3.199 mg/50 g,增幅达 6 倍以上,该工艺直接降低了原料成本。同时,回流提取法设备简单、操作简便,更易于在工业车间实现标准化和规模化生产,川芎中TTMP的工业化提取提供了可靠的技术支撑。
3.2 化学合成法
当前,TTMP的工业化生产仍以化学合成路线为主导,其主要合成路径包括以2,3-丁二酮与1,2-二胺类化合物的缩合反应,或以丁酮与亚硝酸乙酯为原料的催化合成体系。虽然化学合成法在产率上显著优于植物提取,但其固有缺陷也十分突出:合成过程涉及有毒试剂的使用,导致环境污染问题;需要高温高压等严苟条件,能耗与设备成本居高不下;且副反应多、产物纯度控制难度大,制约了工艺的稳定性和经济性[26]。
随着消费升级和健康意识的增强,市场对天然来源活性成分的偏好日益凸显。然而,化学合成法所得的TTMP在结构上虽与天然成分一致,却因来源和工艺的限制无法被归类为天然产物,这在食品、保健品和高端化妆品等领域是竞争劣势。因此,开发绿色、高效的天然提取或生物合成新工艺,已成为该领域突破现有瓶颈的重要方向。
3.3 微生物发酵法
诸多微生物虽具备合成TTMP的潜力,然而,能实现高产量的菌株资源却十分稀缺。在白酒酒曲中,芽孢杆菌属是合成TTMP的主要贡献者,其中以B.subtilis和地衣芽孢杆菌(Bacillus licheniformis)最为常见,是相关研究中使用最为广泛的菌种[29]。当前,绿色消费已成为不可逆转的社会趋势。在此背景下,微生物发酵法因其天然、环保的先天优势,被广泛认为是实现TTMP绿色制造的理想解决方案。这一温和、低污染的生产工艺,契合可持续发展要求,展现出巨大的应用潜力与商业价值,因而成为近年来的研究焦点。如今,利用微生物生产TTMP还存在产量低、价格高、生产方式不成熟、产物提取难等问题。针对利用微生物生产TTMP存在的问题,学者们试图通过现代生物技术提高微生物发酵生产TTMP的产量和生产效率[30]。
3.3.1 微生物发酵生产TTMP
张亚辉[31]通过脱脂牛奶平板初筛和V-P实验复筛,从芝麻香型白酒大曲中初步获得50株潜力菌株。经液态发酵与HPLC检测,最终筛选出 10 株高产TTMP的芽孢杆菌。其中B.licheniformis BQ-10产量最高,液态发酵达0.099 7 g/L,固态发酵为0.092 0 g/L,展现出优良的产TTMP能力与应用潜力。冯智伟[32]通过宏基因组学与微生物分离培养技术,系统解析了芽孢杆菌在酱香型白酒酿造中对TTMP生成的关键作用。发现芽孢杆菌是合成TTMP前体物乙偶姻的核心菌属,其对乙偶姻合成关键酶的贡献度最高达30%,乙偶姻在高温条件下与氨基酸反应生成TTMP,为提升酱香型白酒风味与健康成分提供了理论基础与菌种资源。张锦华等[33]从清香型白酒大曲中筛选出31株芽孢杆菌;经发酵培养后,采用气相色谱法筛选出7株产TTMP菌株,其中菌株q94产量最高,为(0.36±0.01) g/L,鉴定为B.subtilis。优化培养基后,其TTMP产量达(3.32±0.18) g/L。
3.3.2 微生物发酵产TTMP关键前体物质——乙偶姻
乙偶姻又名3-羟基-2-丁酮,具有怡人的奶香味,是多种杂环化合物的重要合成前体,在化学合成中应用广泛[34]。研究发现枯草芽孢杆菌通过代谢途径合成乙偶姻,乙偶姻与发酵体系中的氨在无酶催化的条件下发生反应,生成TTMP。该过程不依赖任何微生物酶催化,而是由乙偶姻与氨在酿造环境中通过化学反应自发进行[35]。
Xu等[36]通过代谢工程策略,强化了乙偶姻合成途径表达葡萄糖摄取蛋白(glucose uptake protein,GlcU)、AlsS、AlsD、丙酮酸激酶(pyruvate kinase,PYK)和6-磷酸果糖激酶(6-phosphofructokinase,PFKA);同时弱化了竞争性代谢路径,敲除了乙偶姻还原酶编码基因(bdhA)及乙偶姻脱氢酶复合体基因簇(acoABC)。并结合发酵条件优化,如添加(NH4)2HPO4作为铵源及红豆粉作为辅助氮源,最终使重组枯草芽孢杆菌在微氧发酵中实现川芎嗪产量达到 2.37 g/L。Dickschat等[37]基于基因突变与同位素标记实验,证实了在谷氨酸棒杆菌合成TTMP的过程中,乙偶姻经由二氢吡嗪转化为TTMP的生物合成路径,从而确立了乙偶姻作为关键前体的核心地位。林源[38]针对酿酒酵母乙偶姻合成途径缺陷及与高级醇代谢流竞争问题,定向修饰关键基因:敲除α-酮酸脱羧酶编码基因(THI3)、醇脱氢酶编码基因(ADH5)、2,3 -丁二醇脱氢酶编码基因(BDH1)与氨基酸转移酶编码基因(BAT2),减少乙偶姻分解及竞争代谢流;过表达2,3-丁二醇脱氢酶编码基因(BDH2,强化乙偶姻生成)、氨基酸转移酶编码基因(BAT1,调节氨基酸代谢流向)与醛脱氢酶编码基因(ALD6),同时引入外源枯草芽孢杆菌乙酰乳酸脱羧酶基因(alsD),补充酿酒酵母缺失的AlsD功能,促进α-乙酰乳酸向乙偶姻转化,最终构建的重组菌株BY07、BY08中,乙偶姻产量较初始菌株分别提高4.33、2.45倍。这些合成策略将为增加乙偶姻及TTMP的合成量提供参考。
4 提高微生物合成TTMP产量的方法
4.1 优良菌种筛选和育种
4.1.1 筛选高产TTMP的菌株
张温清[18]以蛋白酶活力和乙偶姻为双筛选标记,结合高温灭活技术,从芝麻香型白酒高温大曲中筛选菌株,经液态、固态发酵验证及16S rDNA和gyrB基因鉴定,获得解淀粉芽孢杆菌(Bacillus amyloliquefaciens)XJB-104。该菌株用于制作功能麸曲可使其TTMP产量达1.28×10³ mg/kg。郭春生等[39]采用传统培养分离结合 HPLC 检测法,经高温灭活预处理,从高温大曲中筛选菌株,通过16S rDNA基因鉴定获得高产TTMP的B.amyloliquefaciens。该菌株用于液态发酵生产 TTMP,经单因素试验和响应面法优化发酵条件后,在初始 pH 7.0、温度39.0 ℃、发酵第6天添加 50.0 g/L 铵盐的条件下,TTMP 产量达(0.166 0±0.002 8) g/L,较优化前提高48%,为其工业化应用提供了理论基础。史洪丽等[40]从高温大曲中筛选芽孢杆菌,通过耐高温试验、透明圈试验、V-P试验及HPLC最终获得高产TTMP B.velezensis,以7%接种量应用于酱醅堆积,最终使酱醅中TTMP含量达11.38 μg/g。
4.1.2 定向育种
针对筛选获得的高产菌株,还可进一步通过诱变或基因工程育种等方法,定向提升其TTMP产量,从而获得性能更优良的菌株。郭维伟[41]通过常压室温等离子体诱变系统对地衣芽孢杆菌进行诱变处理,通过高能粒子作用于微生物细胞,引发DNA突变,从而构建大容量突变体库。经过初筛、复筛及遗传稳定性验证,最终获得1株高产TTMP的突变菌株QYM28,其摇瓶发酵产量达到20.24 g/L,较原始菌株提高了 72.67%。
通过基因工程手段对微生物进行遗传改造,能够精确优化其代谢网络。核心策略包括增强乙偶姻合成路径的代谢通量,同时削弱或阻断与之竞争的旁路途径。此举可显著提高合成基因的表达水平和关键酶的催化效率,使碳源更多地流向乙偶姻的合成,直接为其下游产物TTMP的大量生成提供了充沛的前体供应[28]。Cui等[42]通过基因工程改造酿酒酵母菌株α5-D1B2,敲除BDH1基因并过表达BDH2基因,显著增强了乙偶姻的合成能力,最终使TTMP产量较原始菌株提高了2.6倍。
4.2 发酵工艺的优化
TTMP的合成效率受制于2大要素:菌种的内在代谢潜力与发酵的外部工艺条件。内在潜力决定了理论产率的天花板,而外在工艺则决定了实际产率所能达到的高度。为此,发酵优化致力于通过碳源补料、铵盐筛选、参数控制(温度、pH、溶氧量)等外源干预手段,重塑菌株的代谢行为。所有这些策略都指向1个共同目标:在发酵前期实现前体物质乙偶姻的战略性高量积累,这是成功解锁TTMP高产之路的必经环节。
4.2.1 碳源的优化
发酵培养基中的碳源直接调控从菌体生长到产物合成的代谢流向。其首先保障细胞增殖,并经由糖酵解生成丙酮酸,为合成乙偶姻提供原料。一旦外源碳源耗尽,乙偶姻便会作为替代碳源被代谢,造成其含量下降并直接导致TTMP合成终止。因此,碳源调控的关键在于量的寻求平衡——既要避免不足引发前体损耗[43],也要防止过量所致的高渗透压胁迫。
在大多数实验室发酵产TTMP的研究中,葡萄糖是应用较多的碳源,一般可用来供给菌体生长所需的碳架物质和能量,如,乳酸乳球菌乳亚种(L.lactis subsp. lactis MG1363)可利用葡萄糖作为单一碳源合成乙偶姻与丁二酮,其中NADH氧化在该合成过程中发挥关键调控作用,其通过影响NAD+/NADH平衡,引导碳代谢流流向目标产物合成路径[44]。而针对乳链球菌丁二酮亚种(Streptococcus lactis subsp.diacetylactis CNRZ 124)的研究表明,该菌株以葡萄糖与柠檬酸为复合碳源时,柠檬酸浓度对乙偶姻合成具有显著影响:当柠檬酸浓度从8.8 mmol/L 提升至59.0 mmol/L,乙偶姻合成相关酶的活性随之增强,进而推动乙偶姻产量相应增加[45]。
4.2.2 氮源的优化
氮源作为关键营养因子,广泛参与微生物胞内代谢过程,调节初级与次级代谢产物比例,控制菌体生长速率,并影响产物合成与底物消耗。根据性质,氮源可分为有机氮源与无机氮源。有机氮源直接参与微生物体内的转氨与脱氨代谢,在氮代谢中占比高、作用关键,但其利用率通常低于无机氮源。在发酵过程中添加无机氮源,不仅可补充细胞生长所需氮素,还能有效稳定并调节培养基的pH环境。在TTMP的生物合成中,铵离子与乙偶姻作为前体物质结合生成目标产物,而氨通常来源于氨基酸分解,该途径所产生的铵离子浓度通常较低,成为合成限制因素之一[28]。
4.2.3 发酵条件的优化
发酵过程优化是实现TTMP高产的关键。其中,溶氧量、温度及pH等核心物理化学参数,直接调控生产菌株的代谢行为与生长动力学。通过对这些参数进行精确调控与定向优化,可以实现对目标代谢通路的高效引导,从而在提升TTMP产率的同时保障产品质量,为其规模化生产的工艺开发提供关键支撑。
高溶氧量有利于乙偶姻的生成,减少副产物的产生[46],但是过量的氧供应也会产生更多的细胞团和CO2,降低营养物转化效率。Bao等[47]以运动发酵单胞菌为对象,通过调控摇瓶装液量与转速增加溶氧,乙偶姻产量随供氧提升而显著升高,证明该菌株发酵产乙偶姻的过程为好氧发酵,乙偶姻产量与氧气的供应正相关。
温度是调控微生物发酵过程的关键参数,它通过影响酶动力学特性,直接决定菌体生长速率与代谢产物的合成效率。在TTMP的合成路径中,前体物质乙偶姻与氨的非酶促缩合反应对温度高度敏感,升温可显著加速该热力学驱动过程。然而,鉴于TTMP本身的高挥发性,过高的温度会导致产物从发酵液中大量逸散,造成得率损失。因此,实施精准的温控策略,平衡反应速率与产物保留,是实现TTMP高产的关键。祝赛峰等[48]采用响应面法优化B.subtilis S0507的培养条件,发现培养温度对TTMP产量影响显著,最终确定最优温度为41.75 ℃,搭配低温培养时间33.84 h、水分含量59.63%,TTMP 产量达332.70 mg/kg,与理论值偏差仅0.84%;验证了中高温(41~42 ℃)更利于枯草芽孢杆菌转化前体物为TTMP的结论。
尽管中性pH环境最利于乙偶姻向TTMP转化,但不同菌株的最适生长pH值存在差异。此外,发酵过程中的糖酵解途径会持续产酸,导致培养基pH下降,从而影响转化效率。郭春生等[39]从高温大曲中分离出1株解淀粉芽孢杆菌,编号为1~13,初始pH值为6.5时菌体量较多;初始pH值为7.0时,TTMP及乙偶姻产量均达到最高,分别为0.125 g/L和0.854 g/L。
4.2.4 基于异源微生物从头合成TTMP路径
为实现TTMP的高效生物合成,必须解决其合成路径末端依赖低效自发反应的核心问题。未来的发展方向是利用合成生物学策略,实现全途径的酶促催化。具体而言,可依托于多组学数据与生物信息学工具,从天然微生物体系中挖掘与化学合成中官能团转化功能相同的酶元件,或对现有酶进行定向进化以赋予新功能。最终,通过在模式微生物中理性设计与重构1条完全由酶催化的TTMP合成途径,并对其代谢网络进行系统优化,从而构建出能够实现高产、节能、绿色制造的工程菌株(图3)。
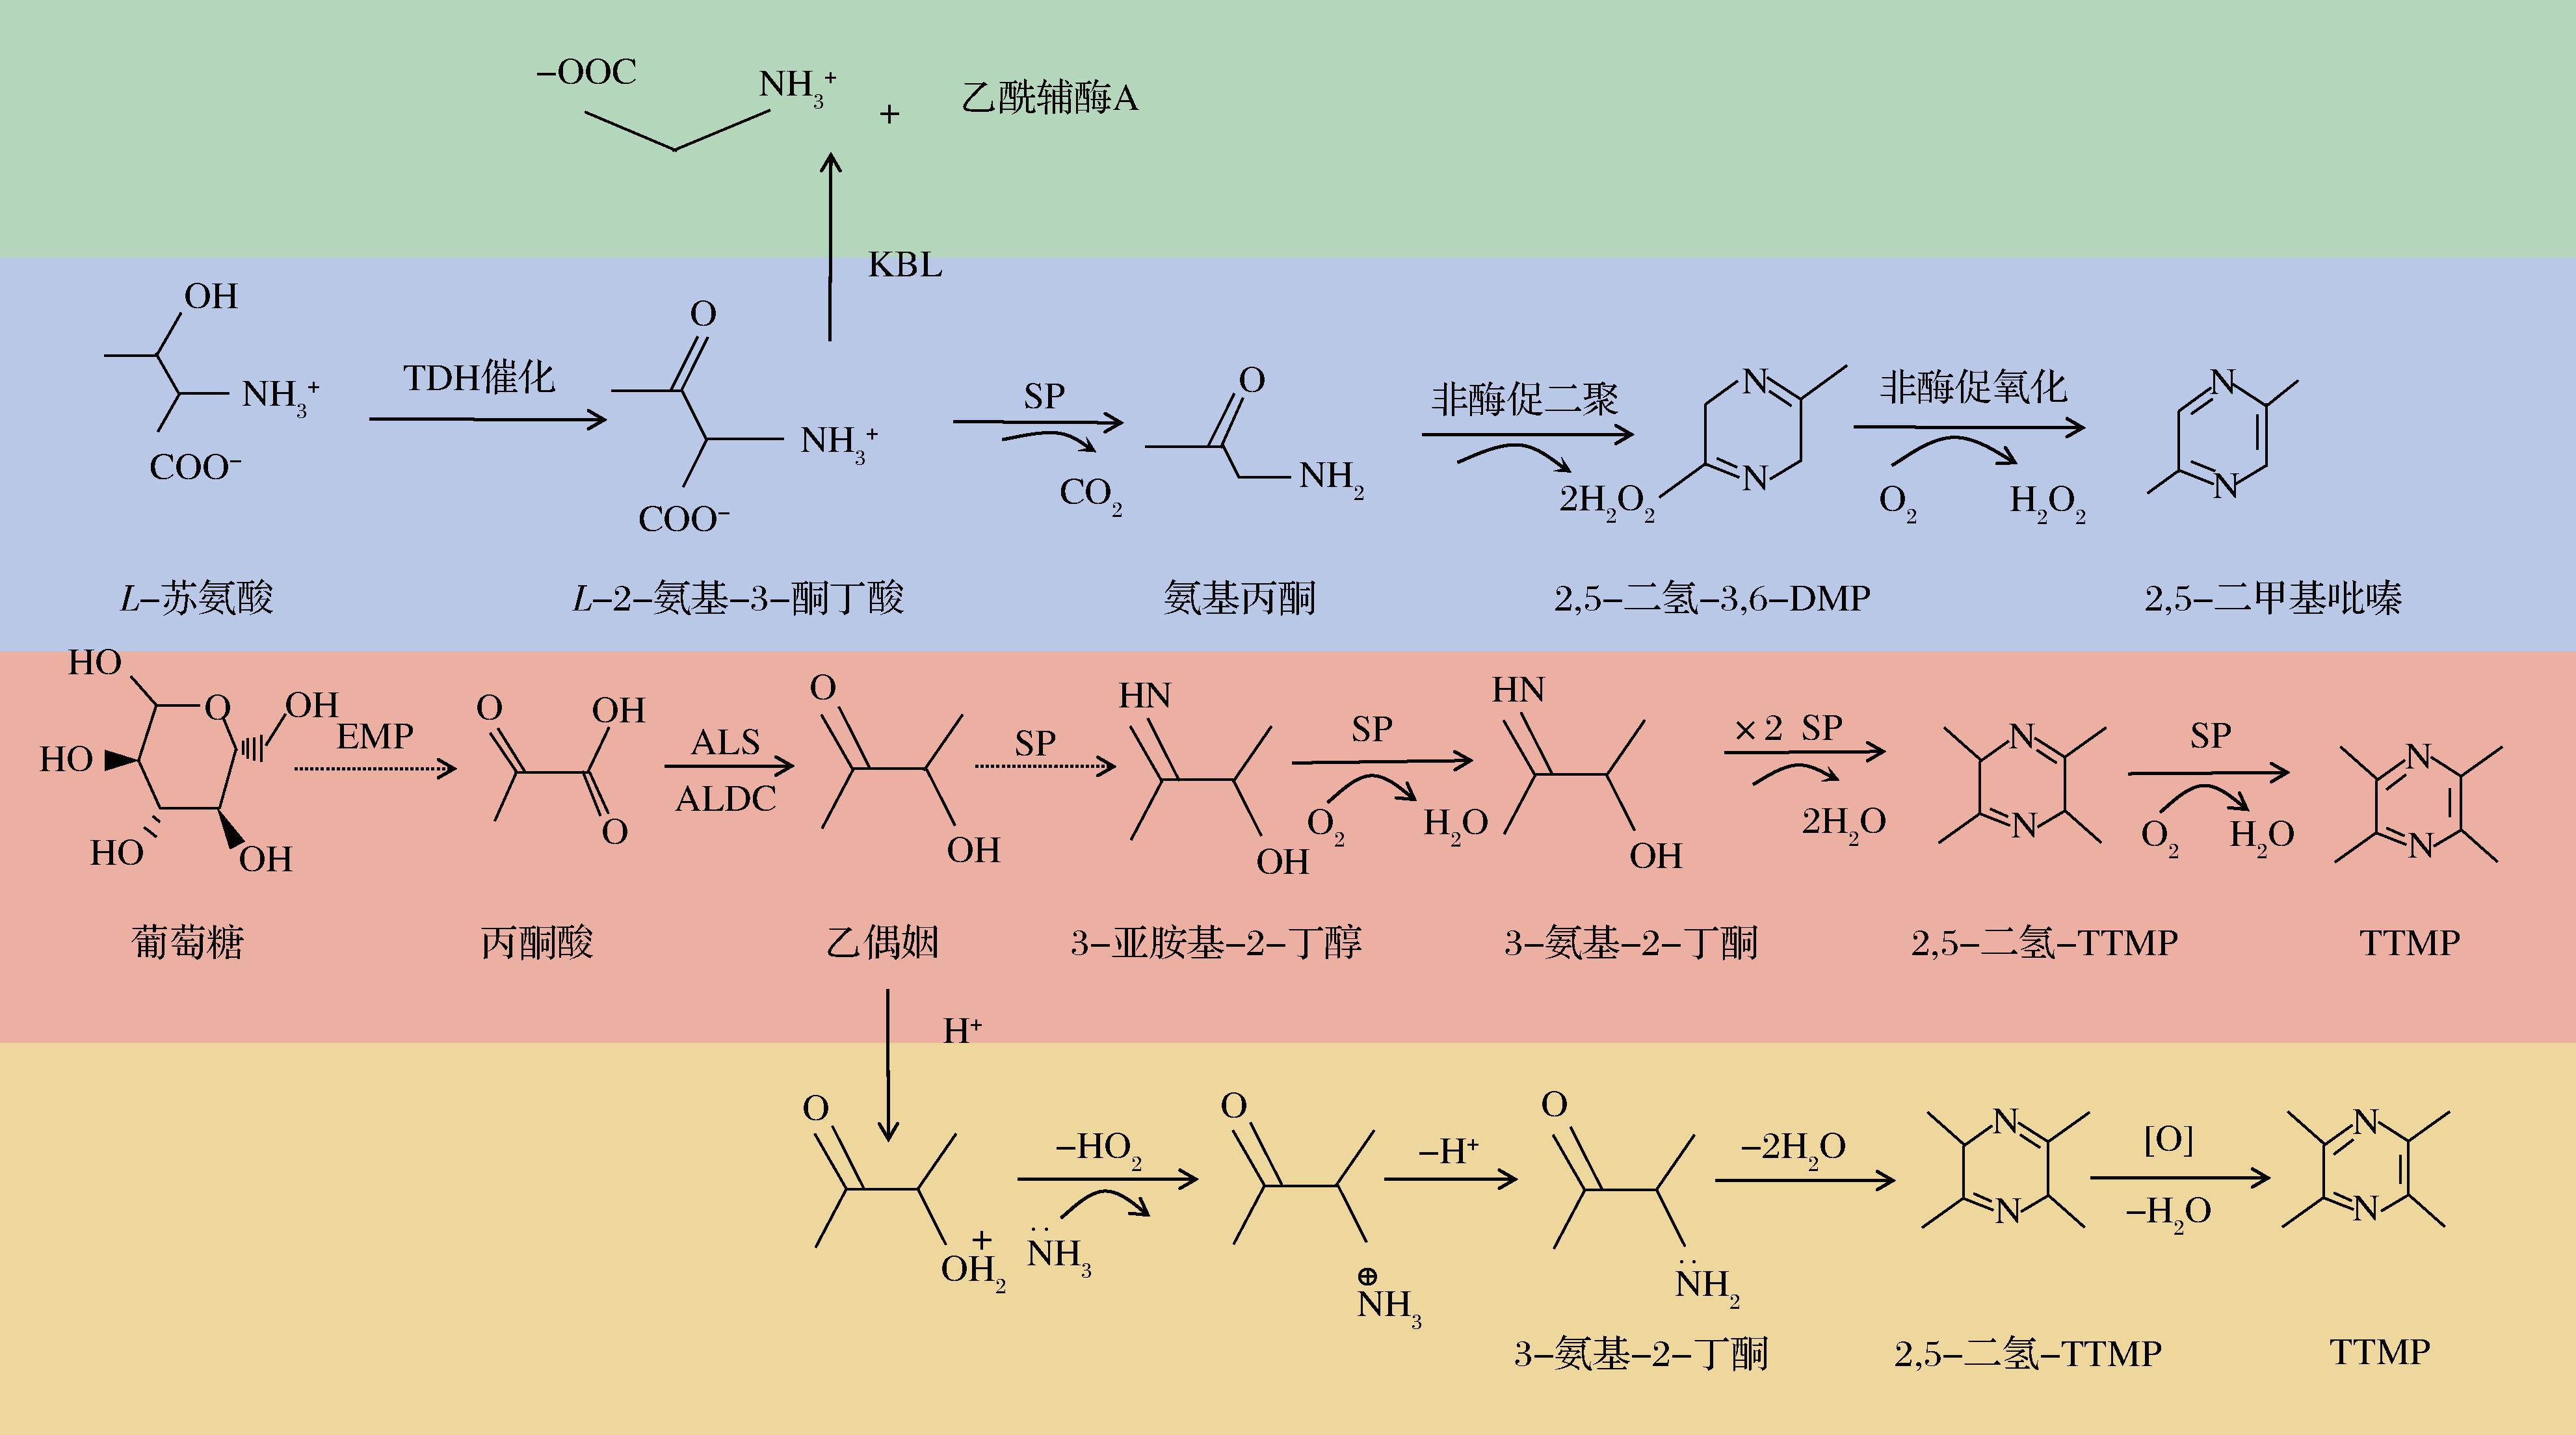
图3 TTMP合成途径
Fig.3 Synthesis route of tetramethylpyrazine
有研究解析了B.subtilis合成 2,5-二甲基吡嗪和 TTMP 的路径:2,5-DMP以L-苏氨酸为底物,经苏氨酸脱氢酶催化生成氨基丙酮,再通过pH依赖的非酶促反应形成;TTMP以葡萄糖为底物,经糖酵解生成乙偶姻,与铵盐自发缩合而成,二者均包含酶促与非酶促反应步骤[49-50]。
5 结论与展望
TTMP作为一种兼具独特风味与多种生物活性的高价值化合物,在食品、医药及酿酒工业中具有重要应用价值。本文系统梳理了TTMP的合成途径,重点阐述了以芽孢杆菌为核心的微生物合成机制,即通过“乙偶姻途径”在胞内酶促合成前体乙偶姻,再于胞外与氨发生非酶促反应生成TTMP。研究显示,通过基因工程改造、发酵条件优化及高效菌株选育,可显著提升乙偶姻积累与TTMP产量。尽管微生物发酵法具备绿色、温和等优势,其产业化仍面临合成路径末端依赖自发反应、代谢网络复杂及产物得率不高等挑战。
未来研究可从3大方向推进:在应用拓展方面,TTMP可超越传统白酒酿造,作为天然风味剂用于植物肉、烘焙食品等现代食品体系;凭借其心脑血管保护、抗氧化等活性,开发功能性食品原料或特膳食品;并探索其在医药领域的新型递送系统,以提高生物利用度。在新功能探索方面,应深入研究TTMP在肠道菌群调节、肝肾等多器官保护及免疫调节方面的潜力,阐明其作用机制。在合成生物学开发方面,需着力构建全酶促合成路径,挖掘关键酶元件,开发动态调控与模块化代谢策略,优化碳流导向;结合非传统微生物底盘与机器学习辅助设计,推动高产工程菌株的构建与筛选。
通过多学科交叉融合,有望突破TTMP生产的技术瓶颈,拓展其在健康食品与生物医药等领域的应用,为酿造产业升级与“健康白酒”实践提供支撑,最终实现TTMP资源的高值化利用。
[1] 甘姗灵. 芽孢杆菌发酵酒糟产四甲基吡嗪的研究[D].桂林:广西师范大学, 2024.Gan S L.Study on the production of tetramethylpyrazine through the fermentatoin of distiller’s grains by Bacillus[D]. Guilin:Guangxi Normal University, 2024.
[2] 刘帮, 王西, 张亚东, 等.中国白酒中四甲基吡嗪的研究进展[J].酿酒科技, 2023 (4):105-109.Liu B, Wang X, Zhang Y D, et al.Research progress in tetramethylpyrazine in Chinese Baijiu[J].Liquor-Making Science &Technology, 2023 (4):105-109.
[3] 龙亚飞, 赵益梅, 冉光耀, 等.中国白酒中健康因子四甲基吡嗪的研究进展[J].酿酒科技, 2023 (12):79-85.Long Y F, Zhao Y M, Ran G Y, et al.Research progress on the health factor tetramethylpyrazine in Chinese liquor[J].Liquor-Making Science &Technology, 2023 (12):79-85.
[4] 薛锡佳, 程伟, 陈雪峰, 等.馥合香型白酒酿造过程中四甲基吡嗪的检测及其溯源分析[J].中国酿造, 2024, 43(12):38-44.Xue X J, Cheng W, Chen X F, et al.Detection and traceability of tetramethylpyrazine in the brewing process of Fuhexiangxing Baijiu[J].China Brewing, 2024, 43(12):38-44.
[5] 宾志强, 李双钰, 张添琦, 等.高产四甲基吡嗪芽孢杆菌的筛选及其在酱香型白酒发酵中的应用[J].食品与发酵工业,2025,51(21):114-122.Bin Z Q, Li S Y, Zhang T Q, et al.Screening of high-yielding Bacillus and its application in the Jiangxiangxing Baijiu fermentation[J].Food and Fermentation Industry, 2025, 51(21):114-122.
[6] Yuan R, Xin Q Q, Ma X C, et al.Identification of a novel angiogenesis signalling circSCRG1/miR-1268b/NR4A1 pathway in atherosclerosis and the regulatory effects of TMP-PF in vitro[J].Molecules, 2023, 28(3):1271.
[7] Xing Z W, Chen Y, Chen J R, et al.Metabolomics integrated with mass spectrometry imaging reveals novel action of tetramethylpyrazine in migraine[J].Food Chemistry, 2024, 460:140614.
[8] 朱可夫, 吴少泽, 娄江杰, 等.川芎嗪预处理对缺血再灌注心肌线粒体功能的保护作用研究[J].心脑血管病防治,2022, 22(1):34-38.Zhu K F, Wu S Z, Lou J J, et al.Research progress in the sereening of high-tetramethylpyrazine-yield strains and their application in Jiangxiang Baijiu production[J].Cardio-cerebrovascular Disease Prevention and Treatment, 2022, 22(1):34-38.
[9] Bian Y Y, Yang L L, Sheng W, et al.Ligustrazine induces the colorectal cancer cells apoptosis via p53-dependent mitochondrial pathway and cell cycle arrest at the G0/G1 phase[J].Annals of palliative medicine, 2020, 10(2):21037.
[10] Du H Y, Wang R, Li J L, et al.Ligustrazine induces viability, suppresses apoptosis and autophagy of retinal ganglion cells with ischemia/reperfusion injury through the PI3K/Akt/mTOR signaling pathway[J].Bioengineered, 2021, 12(1):507-515.
[11] Lin J G, Wang Q Q, Zhou S M, et al.Tetramethylpyrazine:A review on its mechanisms and functions[J].Biomedicine &Pharmacotherapy, 2022, 150:113005.
[12] Liu Y T, Li X, Jiang S L, et al.Tetramethylpyrazine protects against high glucose-induced vascular smooth muscle cell injury through inhibiting the phosphorylation of JNK, p38MAPK, and ERK[J].Journal of International Medical Research, 2018, 46(8):3318-3326.
[13] Chu D, Chen J J, Liu X M, et al.A tetramethylpyrazine-loaded hyaluronic acid-based hydrogel modulates macrophage polarization for promoting wound recovery in diabetic mice[J].International Journal of Biological Macromolecules, 2023, 245:125495.
[14] Koehler E P, Mason E M, Newell A J.Formation of pyrazine compounds in sugar-amino acid model systems[J].Journal of Agricultural and Food Chemistry, 2002, 17(2):393-396.
[15] Liu Y M, Li M K, Hong X F, et al.Screening and identification of high yield tetramethylpyrazine strains in Nongxiangxing liquor Daqu and study on the mechanism of tetramethylpyrazine production[J].Journal of the Science of Food and Agriculture, 2023, 103(14):6849-6860.
[16] 王丽娟. 产乙偶姻功能微生物群落的分离及其在食醋酿造中的应用[D].无锡:江南大学, 2018.Wang L J.Isolation of acetoin-producing microbial community in vinegar Pei and its application in vinegar brewing process[D].Wuxi:Jiangnan University, 2018.
[17] 颛孙皖皖. 白酒酿造过程中微生物菌群与风味化合物的关联性及高产四甲基吡嗪菌株的转录组分析[D].淮北:淮北师范大学, 2023.Zhuansun W W.Correlation between microbial communities and flavor compounds during Baijiu fermentation and transcriptome analysis of high-yield tetramethylpyrazine producing strains[D].Huaibei:Huaibei Normal University, 2023.
[18] 张温清. 芝麻香型白酒四甲基吡嗪形成及其高产TTMP酿造工艺研究[D].合肥:合肥工业大学, 2020.Zhang W Q.Formation of tetramethylpyrazine in sesame-flavored Baijiu and its brewing technology with high-yield TTMP[D].Hefei:Hefei University of Technology, 2020.
[19] Kosuge T, Adachi T, Kamiya H.Isolation of tetramethylpyrazine from culture of Bacillus natto, and biosynthetic pathways of tetramethylpyrazine[J].Nature, 1962, 195(4846):1103.
[20] Demain A L, Jackson M, Trenner N R.Thiamine-dependent accumulation of tetramethylpyrazine accompanying a mutation in the isoleucine-valine pathway[J].Bacteriol, 1967, 94(2):323-326.
[21] Liang S Y, Ling M X, Li L H, et al.Transcriptome sequencing of Bacillus sp. TTMP20 and analysis of the effect of BDH gene on tetramethylpyrazine synthesis[J].Current microbiology, 2024, 82(1):33.
[22] 陶怡, 黄晓润, 佟硕秋, 等.枯草芽孢杆菌lspA影响细菌型豆豉中四甲基吡嗪的合成研究[J].食品与发酵科技, 2022, 58(6):9-15.Tao Y, Huang X R, Tong S Q, et al.Bacillus subtilis BJ3-2 lspA affects the synthesis of tetramethylpyrazine in bacterial-type Douchi[J].Food and Fermentation Science &Technology, 2022, 58(6):9-15.
[23] 黄璐, 贡献, 佟硕秋, 等.枯草芽孢杆菌pckA影响四甲基吡嗪合成的研究[J].食品与发酵工业, 2023, 49(12):47-53.Huang L, Gong X, Tong S Q, et al.Effects of Bacillus subtilis pckA on the synthesis of tetramethylpyrazine[J].Food and Fermentation Industries, 2023, 49(12):47-53.
[24] 贡献. 枯草芽孢杆菌pcKA和msmE基因调控酱香的代谢机制研究[D].贵阳:贵州大学, 2020.Gong X.Study on the metabolic mechanismof soy sauce flavor by knockout pckA and msmE in Bacillus subtilis[D].Guiyang:Guizhou University, 2020.
[25] 肖月. 川芎中川芎嗪生物来源解析与验证[D].雅安:四川农业大学, 2024.Xiao Y.Analysis and verification of biologica source of ligustrazine in Ligusticum chuanxiong Hort[D].Ya’an:Sichuan Agricultural University, 2024.
[26] 李雨佳, 罗丽蓉, 尚常花.微生物发酵生产四甲基吡嗪方法综述[J].广西师范大学学报(自然科学版), 2024, 42(4):32-40.Li Y J, Luo L R, Shang C H.Progress of microbial fermentation for tetramethylpyrazine production[J].Journal of Guangxi Normal University(Natural Science Edition), 2024, 42(4):32-40.
[27] 叶璟. 川芎有效成分的提取技术[J].中国高新技术企业, 2009 (15):55-56.Ye J.Extraction technology of active components from Ligusticum chuanxiong[J].China High-tech Enterprise, 2009 (15):55-56.
[28] 宋煜, 陈建忠, 陆晓红.正交设计优选川芎中川芎嗪提取工艺[J].福建中医学院学报, 2007,(6):33-34.Song Y, Chen J Z, Lu X H.Optimization of extraction process of tetramethylpyrazine from Ligusticum chuanxiong by orthogonal design[J].Rehabilitation Medicine, 2007 (6):33-34.
[29] 吴建峰, 徐岩.白酒酒曲中高产四甲基吡嗪菌株的筛选和鉴定[J].工业微生物, 2013, 43(6):7-13.Wu J F, Xu Y.Screening and identification of high-yield tetramethylpyrazine strains from Chinese jiuqu[J].Industrial Microbiology, 2013, 43(6):7-13.
[30] 侯孝元, 顾如林, 梁文龙, 等.利用发酵法生产四甲基吡嗪研究进展[J].生物技术通报, 2016, 32(1):58-64.Hou X Y, Gu R L, Liang W L, et al.Research progress on production of tetramethylpyrazine by fermentation[J].Biotechnology Bulletin, 2016, 32(1):58-64.
[31] 张亚辉. 芝麻香型白酒高产四甲基吡嗪菌株的筛选及初步研究[D].天津:天津科技大学, 2024.Zhang Y H.Screening and preliminary study on high-yielding tetramethylpyrazine strains of sesame flavor liquor[D].Tianjin:Tianjin University of Science &Technology, 2024.
[32] 冯智伟. 酱香型白酒酿造过程四甲基吡嗪生成规律研究[D].天津:天津科技大学, 2024.Feng Z W.Formation rule of tetramethyl pyrazine during the making processof Jiang-flavour Baijiu[D].Tianjin:Tianjin University of Science &Technology, 2024.
[33] 张锦华, 张潇月, 白宝清, 等.清香型白酒大曲中高产四甲基吡嗪菌株的筛选、鉴定及发酵培养基优化[J].中国酿造, 2023, 42(3):47-52.Zhang J H, Zhang X Y, Bai B Q, et al.Screening, identification and fermentation medium optimization of high yield tetramethylpyrazine strainsfrom light-flavor Baijiu Daqu[J].China Brewing, 2023, 42(3):47-52.
[34] 马长义, 李珊珊, 贡嘉伟, 等.乙偶姻和枯草芽孢杆菌NRCB002的促生机制[J].植物营养与肥料学报, 2023, 29(3):582-590.Ma C Y, Li S S, Gong J W, et al.Mechanism of growth promotion by acetoin and Bacillus subtilis NRCB002[J].Journal of Plant Nutrition and Fertilizers, 2023, 29(3):582-590.
[35] 陈媛媛, 陈德茗, 李子健, 等.产乙偶姻菌株的分离鉴定及其对固态混菌发酵产物的影响[J].中国酿造, 2024, 43(3):84-89.Chen Y Y, Chen D M, Li Z J, et al.Isolation and identification of acetoin-producing strain and its effect on solid-statemulti-microbial fermentation products[J].China Brewing, 2024, 43(3):84-89.
[36] Xu Y Q, Jiang Y F, Li X T, et al.Systematic characterization of the metabolism of acetoin and its derivative ligustrazine in Bacillus subtilis under micro-oxygen conditions[J].Journal of agricultural and food chemistry, 2018, 66(12):3179-3187.
[37] Dickschat S J, Wickel S, Bolten J C, et al.Pyrazine biosynthesis in Corynebacterium glutamicum[J].European Journal of Organic Chemistry, 2010, 2010(14):2687-2695.
[38] 林源. 酿酒酵母乙偶姻、高级醇的协同代谢调控研究[D].济南:齐鲁工业大学, 2024.Lin Y.Synergistic metabolic regulation of acetoinand higher alcohols in Saccharomyces cerevisiae[D].Jinan:Qilu University of Technology, 2024.
[39] 郭春生, 杨舟, 乔月梅, 等.高产四甲基吡嗪微生物的筛选、鉴定及发酵条件优化[J].中国酿造, 2022, 41(9):80-85.Guo C S, Yang Z, Qiao Y M, et al.Screening, identification and fermentation conditions optimization of high yield tetramethylpyrazine microorganism[J].China Brewing, 2022, 41(9):80-85.
[40] 史洪丽, 余梦婷, 王世昕, 等.高温大曲中高产四甲基吡嗪芽孢杆菌的筛选及其在酒醅堆积中的应用[J].中国酿造, 2025, 44(3):59-65.Shi H L, Yu M T, Wang S X, et al.Screening ofhigh yield tetramethylpyrazine Bacillus from high temperature Daqu andits application in the stacking of fermented grains[J].China Brewing, 2025, 44(3):59-65.
[41] 郭维伟. 地衣芽孢杆菌发酵四甲基吡嗪条件研究[D].济南:齐鲁工业大学, 2017.Guo W W.Study on the fermentation conditions of 2,3,5,6-tetramethylpyrazine by Baclicus lincheniformis[D].Jinan:Qilu University of Technology, 2017.
[42] Cui D Y, Wei Y N, Lin L C, et al.Increasing yield of 2,3,5,6-tetramethylpyrazine in Baijiu through Saccharomyces cerevisiae metabolic engineering[J].Frontiers in Microbiology, 2020, 11:596306.
[43] Ricci L, Cen X C, Zu Y X, et al.Metabolic engineering of E.coli for enhanced diols production from acetate[J].ACS synthetic biology, 2025, 14(4):1204-1219.
[44] Lopez De Felipe F, Starrenburg M J C, Hugenholtz J.The role of NADH-oxidation in acetoin and diacetyl production from glucose in Lactococcus lactis subsp.lactis MG1363[J].FEMS Microbiology Letters, 1997, 156(1):15-19.
[45] Petit C, Vilchez F, Marczak R.Influence of citrate on the diacetyl and acetoin production by fully grown cells of Streptococcus lactis subsp. diacetylactis[J].Current Microbiology, 1989, 19(5):319-323.
[46] Häßler T, Schieder D, Pfaller R, et al.Enhanced fed-batch fermentation of 2,3-butanediol by Paenibacillus polymyxa DSM 365[J].Bioresource technology, 2012, 124:237-244.
[47] Bao W W, Shen W, Peng Q Q, et al.Metabolic engineering of Zymomonas mobilis for acetoin production by carbon redistribution and cofactor balance[J].Fermentation, 2023, 9(2):113.
[48] 祝赛峰, 吴建峰, 赵希荣.响应面法优化枯草芽孢杆菌S0507产四甲基吡嗪的培养条件[J].食品科学, 2014, 35(9):218-223.Zhu S F, Wu J F, Zhao X R.Response surface methodology for optimization of culture conditions for the production of tetramethylpyrazine by Bacillus subtilis SO507[J].Food Science, 2014, 35(9):218-223.
[49] Zhang L J, Cao Y L, Tong J N, et al.An alkylpyrazine synthesis mechanism involving L-threonine-3-dehydrogenase describes the production of 2,5-dimethylpyrazine and 2,3,5-trimethylpyrazine by Bacillus subtilis[J].Applied and Environmental Microbiology, 2019, 85(24):e01807-e01819.
[50] Zhang H Z, Zhang L J, Yu X W, et al.The Biosynthesis mechanism involving 2,3-pentanedione and aminoacetone describes the production of 2-ethyl-3,5-dimethylpyrazine and 2-ethyl-3,6-dimethylpyrazine by Bacillus subtilis[J].Journal of Agricultural and Food Chemistry, 2020, 68(11):3558-3567.