睡眠剥夺(sleep deprivation,SD)是指因生理或环境因素导致睡眠部分或全部缺失的状态[1]。它通常由高强度工作、不良生活习惯或学习压力等引起,是睡眠障碍的一种常见表现形式。睡眠障碍已成为影响全球约27%人口的公共卫生挑战,长期SD与心血管疾病、抑郁症及神经退行性疾病风险显著相关[2]。当前临床依赖苯二氮卓类和Z-药物等化学药物疗法,虽可短期改善症状,但存在药物依赖、认知损伤及戒断反应等弊端,而非药物干预(如行为疗法、中医针灸)效果稳定性不足,个体差异性大[3]。在这一背景下,益生菌治疗睡眠障碍展现出突出优势,已有研究证明,双歧杆菌促进增加肠源性γ-氨基酸合成抑制下丘脑-垂体肾上腺轴亢进[4];Dhaliwal等[5]研究表明植物乳植杆菌可以抑制预防应激和SD导致的抑郁、焦虑、学习和记忆能力下降等症状;Li等[6]发现嗜黏蛋白阿克曼菌可以维持短链脂肪酸水平稳定,且通过抑制小胶质细胞激活及免疫调节等多靶点途径缓解SD损伤。本研究鉴于乳酸菌在发酵食品与膳食补充剂中应用广泛,总体安全性高、耐酸耐胆盐能力较强且易实现工业化制备,并具有调控肠道微生态和色氨代谢的潜力[7]。因此选择乳酸菌作为研究对象,不仅具备明确的转化价值,也有助于填补乳酸菌在睡眠干预研究中的空白。此外,益生菌治疗还为替代传统药物的新型睡眠干预策略提供了重要靶点与转化潜力[8]。
据研究,肠道菌群可通过调控色氨酸代谢为多种生物活性物质,靶向肠-脑轴发挥神经调节作用,并通过免疫、内分泌与神经通路及睡眠发生相互作用[9]。色氨酸是一种必要氨基酸,是宿主和微生物代谢过程的关键底物[10]。具体而言,肠道菌群可将色氨酸作为核心底物,将其转化为吲哚-3-乙酸(3-indoleacetic acid, IAA)和色胺(tryptamine, TA)2种吲哚类代谢物,其中IAA可作为芳烃受体的潜在配体,可通过激活肠道上皮/免疫细胞相关信号,增强黏膜屏障、降低促炎因子水平,而炎症状态与小胶质细胞活化被认为与睡眠剥夺后的认知和情绪改变密切相关[11];同时,TA可通过作用于5-羟色胺受体,调节多巴胺递质信号,进而影响觉醒水平与睡眠节律[12]。综上所述,二者通过不同信号通路影响中枢神经系统功能以及肠-脑轴中复杂的调控网络,共同参与睡眠-觉醒周期的维持,从而协同调控睡眠。自2000年以来,果蝇作为一种用于睡眠研究的模型生物,为揭示睡眠的作用和机制提供了新的思路[13]。果蝇与人体在神经系统复杂度、微生物定植生态及药代动力学方面虽存在差异,但果蝇与哺乳动物具有类似的睡眠-觉醒周期和昼夜节律调控机制,其睡眠行为可通过红外光束监测系统以5 min内无活动定义为睡眠进行量化,与人类睡眠的睡眠时长、睡眠片段化参数具有可比性。因此,选用黑腹果蝇作为模型生物在发现新的睡眠调节因子方面具有重要价值[14]。
综合以上研究背景,本研究经体外筛选获得高吲哚产量菌株,以睡眠剥夺果蝇为模型进行有效菌膳食干预,结合行为学与菌群分析,明确其对果蝇表型及肠道菌群结构的调节效应,为解析乳酸菌-吲哚-睡眠调控机制提供支撑,丰富了改善睡眠的益生菌资源多样性。
1 材料与方法
1.1 材料与试剂
39株乳酸菌均筛选自黑龙江地区的自然发酵蔬菜,菌株冻存在本研究室保藏中心,其中植物乳植杆菌HUCF11保藏于广东省微生物菌种保藏中心,保藏编号为GDMCC No:64611;Carton S野生型红眼黑腹果蝇,哈尔滨工业大学生命科学中心KIM实验室提供;BPM吲哚培养基(添加色氨酸100 mg/L);MRS培养基,北京陆桥技术股份有限公司;蔗糖,天津市茂佳食品有限公司;酵母粉,安琪酵母股份有限公司;琼脂粉,合肥兰杰柯科技有限公司;丙酸,国药集团化学试剂有限公司;尼泊金乙酯,正宏生物科技有限公司;无水乙醇,天津市天力化学试剂有限公司;无菌生理盐水,哈尔滨三联药业股份有限公司。
1.2 仪器与设备
LDZX-75高压灭菌锅,上海申安医疗器械厂;TGL-16离心机,上海医疗器械六厂;1260高效液相色谱仪,安捷伦科技中国有限公司;H1650-W酶标仪,赛默飞世尔科技有限公司;SN-RGX-350B果蝇培养箱,上海尚普仪器设备有限公司;UItiMate-3000 UPLC和Q-Exactive plus质谱仪,美国Thermo公司。
1.3 试验方法
1.3.1 乳酸菌的代谢色氨酸潜力评估
将活化后的菌株,接种在含色氨酸的吲哚液体培养基中(37 ℃,24 h),设3次重复。取1 mL发酵液4 000 r/min 离心10 min后取190 μL上清液,加入含10 μL Kovac’s试剂的96孔板中,静置1 min后放入酶标仪测定530 nm下的吸光值。以未接菌培养基为空白,评估各菌株代谢L-色氨酸产吲哚衍生物的潜力。
1.3.2 利用HPLC法筛选具有高产吲哚能力的乳酸菌
取10 mL菌液于4 ℃、4 000 r/min离心10 min,收集上清液。向上清液中加入等体积乙酸乙酯,剧烈振荡混匀后静置分层,取有机相;重复萃取2次,合并有机相。用无水硫酸钠干燥后,40 ℃氮吹至近干,残渣用1 mL初始流动相复溶,经0.22 μm有机滤膜过滤后上机测试[色谱条件:Kin etex C18柱(100 mm×3 mm,2.6 μm),柱温40 ℃;流动相0.1%(体积分数)甲酸水(A相)和0.1%(体积分数)甲酸甲醇(B相),流速1.0 mL/min,进样量10 μL,柱温30 ℃,测定波长280 nm,洗脱时间10 min]。通过建立标准曲线,对不同乳酸菌产IAA和TA能力进行定量分析,最终选择产吲哚能力高的乳酸菌进行后续试验[15]。
1.3.3 果蝇睡眠剥夺模型建立及试验分组
通过夜间重复光照刺激建立果蝇睡眠剥夺模型,具体方法如下:在果蝇培养箱中安装光照控制器,设定时间为:上午7∶00至晚19∶00正常光照,晚19∶00熄灯后,从20∶00开始,每个整点恢复光照10 min,其它时间为黑暗期,持续至次日上午7∶00。果蝇白天正常活动,夜晚睡眠时间不断被打断,不能形成连续的睡眠,导致睡眠被剥夺[16]。
将羽化后5 d的黑腹雄果蝇分为4组,每组100只,除空白组外,其余3组均进行睡眠剥夺。其中1组作为干预组,喂食植物乳植杆菌HUCF11的菌悬液;另一组作为阴性组,喂食植物乳植杆菌F4701的菌悬液;最后2组为空白组和模型组,喂食生理盐水。并各平行5组,具体实验分组如图1所示。
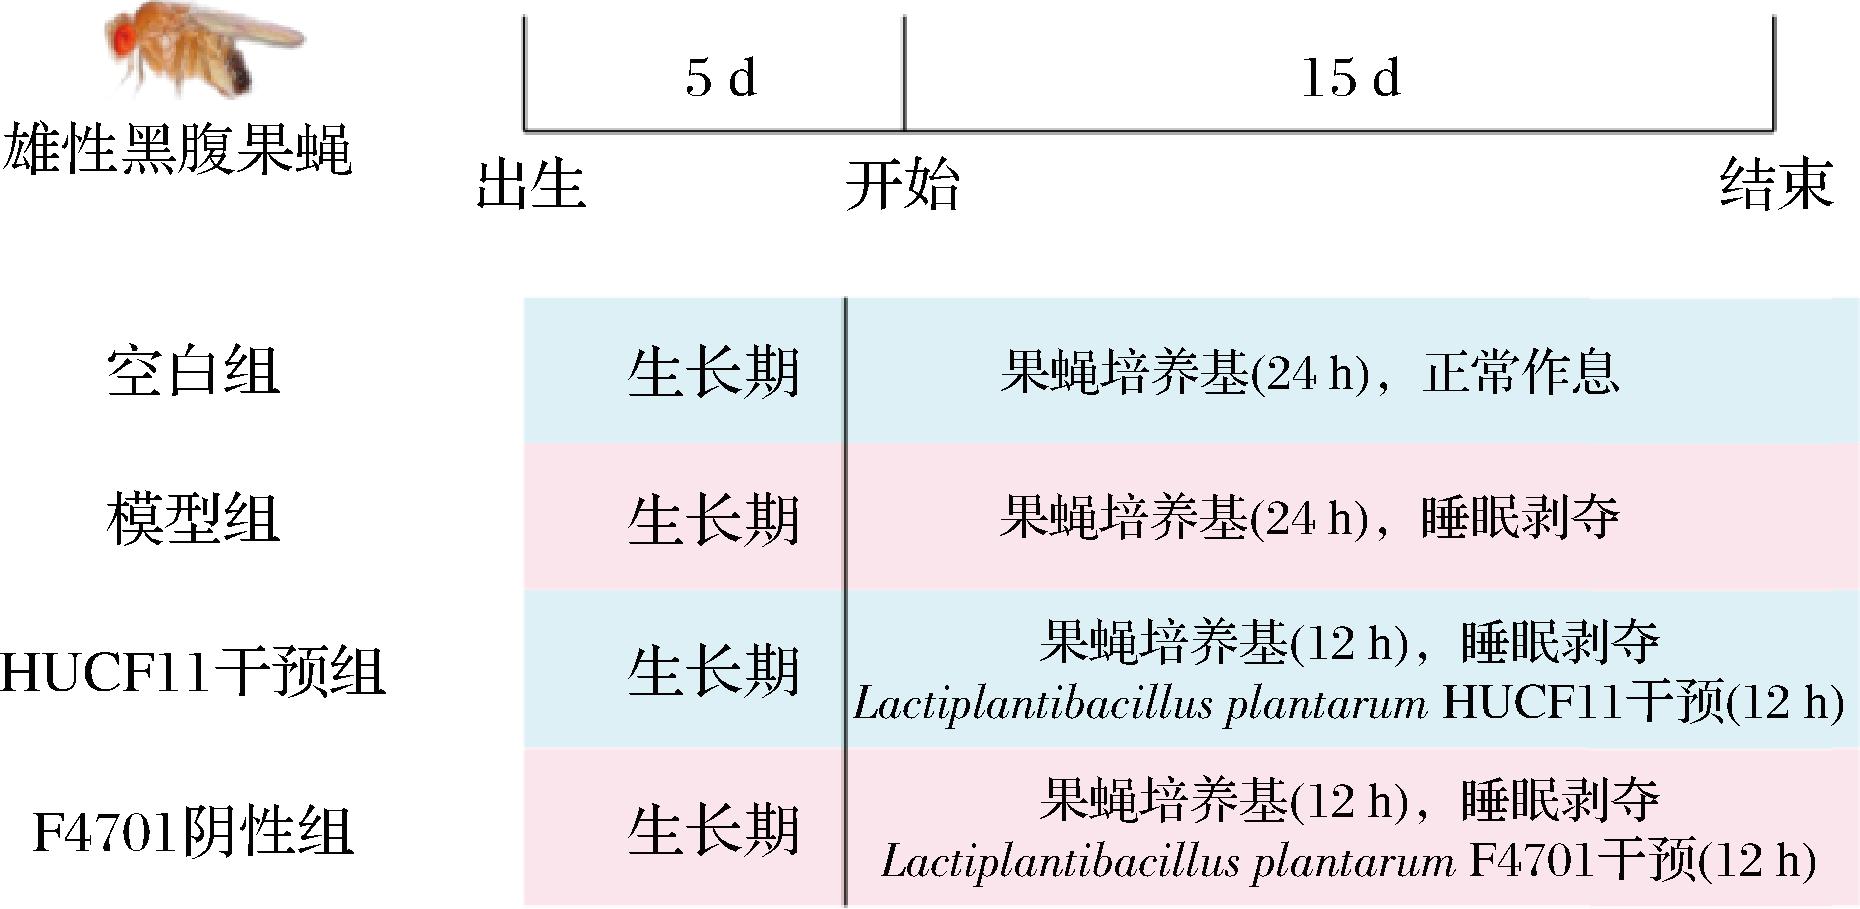
图1 动物实验流程图
Fig.1 Animal experiment flowchart
1.3.4 果蝇行为学表型监测
1.3.4.1 果蝇睡眠监测
参考Donelson等[17]方法稍作修改,将各组实验果蝇放入含有140 μL食物(50 g/L蔗糖和10 g/L琼脂)的96孔白色板中,在25 ℃条件下,适应24 h后在12 h∶12 h的光暗周期中测试24 h,通过相机以10 s的间隔监测果蝇的活动,每10 s记录果蝇的位置变化来计算其活动情况,并使用标准定义计算睡眠(果蝇至少5 min保持不动,则记录为睡眠状态),以记录其睡眠行为。最后将数据用程序SCAMP进行分析,以分析果蝇睡眠行为和昼夜节律。
1.3.4.2 果蝇爬管实验
收集空白组、模型组、干预组和阴性组的果蝇,每组测试前剔除缺翅和畸形果蝇,混匀后随机抽取30只,转至玻璃管中(高:20 cm,内径:3.2 cm),轻拍管使所有果蝇落至底部,统计所有果蝇在管内爬过6 cm线的时间[17]。
1.3.4.3 果蝇蹦跳实验
收集空白组、模型组、干预组和阴性组的果蝇,每组测试前剔除缺翅和畸形果蝇,混匀后随机抽取30只,转至玻璃管中(高:20 cm,内径:3.2 cm),匀速旋转玻璃管使果蝇蹦跳,统计所有果蝇在1 min内蹦跳次数[17]。
1.3.5 肠道菌群16S rRNA测序
按照李秀娟等[18]的方法收集果蝇肠道组织,使用QIA amp DNA Stool Mini Kit提取果蝇肠道DNA。利用细菌特异性引物对16S rRNA的V3~V4区域基因序列进行PCR扩增,扩增产物经Illumina MiSeq PE300平台完成双端测序,测序服务由上海美吉生物医药科技有限公司提供。原始测序数据经QIIME 1.9.1软件进行预处理,以97%的序列相似度将序列聚类为操作分类单元,并利用RDP Classifier算法(置信度阈值设定为0.7)进行物种注释。基于Majorbio云平台开展生物信息学分析:α多样性分析借助mothur 1.30.2软件计算多样性指数;β多样性分析则采用Bray-Curtis距离矩阵进行主坐标分析(principal coordinates analysis,PCoA);组间差异菌群的筛选通过线性判别分析效应量(linear discriminant analysis effect size,LEfSe)分析完成,设定线性判别分析(linear discriminant analysis,LDA)值>3.5且P<0.05为筛选条件,以鉴定属水平的显著性差异分类单元。
1.3.6 数据统计分析
数据均以“平均值±标准误差”表示,在美吉生物云平台与GraphPad Prism 8.0.2 进行统计分析并作图。2组数据进行非配对的双尾t检验,对于多重比较采用单因素方差分析(One-way ANOVA)。所有P值均以95%置信水平计算,P<0.05为差异显著。
2 结果与分析
2.1 乳酸菌代谢L-色氨酸产吲哚衍生物能力的评估
采用比色法对实验室中的乳酸菌进行色氨酸代谢能力初步评估。该方法基于吲哚衍生物与显色剂反应后形成玫瑰花色产物,其生成量可通过检测反应液在530 nm下的紫外吸收进行表征[19],吸光度的高低可作为不同菌株吲哚类衍生物相对生成能力的指标。结果见图2,有39株乳酸菌可检测到吸光度信号,但不同菌株之间存在明显差异,吸光度大致分布于一定的范围内,并呈现由高到低的连续梯度分布,提示不同菌株代谢色氨酸产吲哚的能力存在一定程度上的强弱差异,比色法仅能初步筛选,无法反映具体吲哚衍生物的组成或绝对产量。因此,进一步对具有潜在吲哚生产能力的菌株进行定量评价。
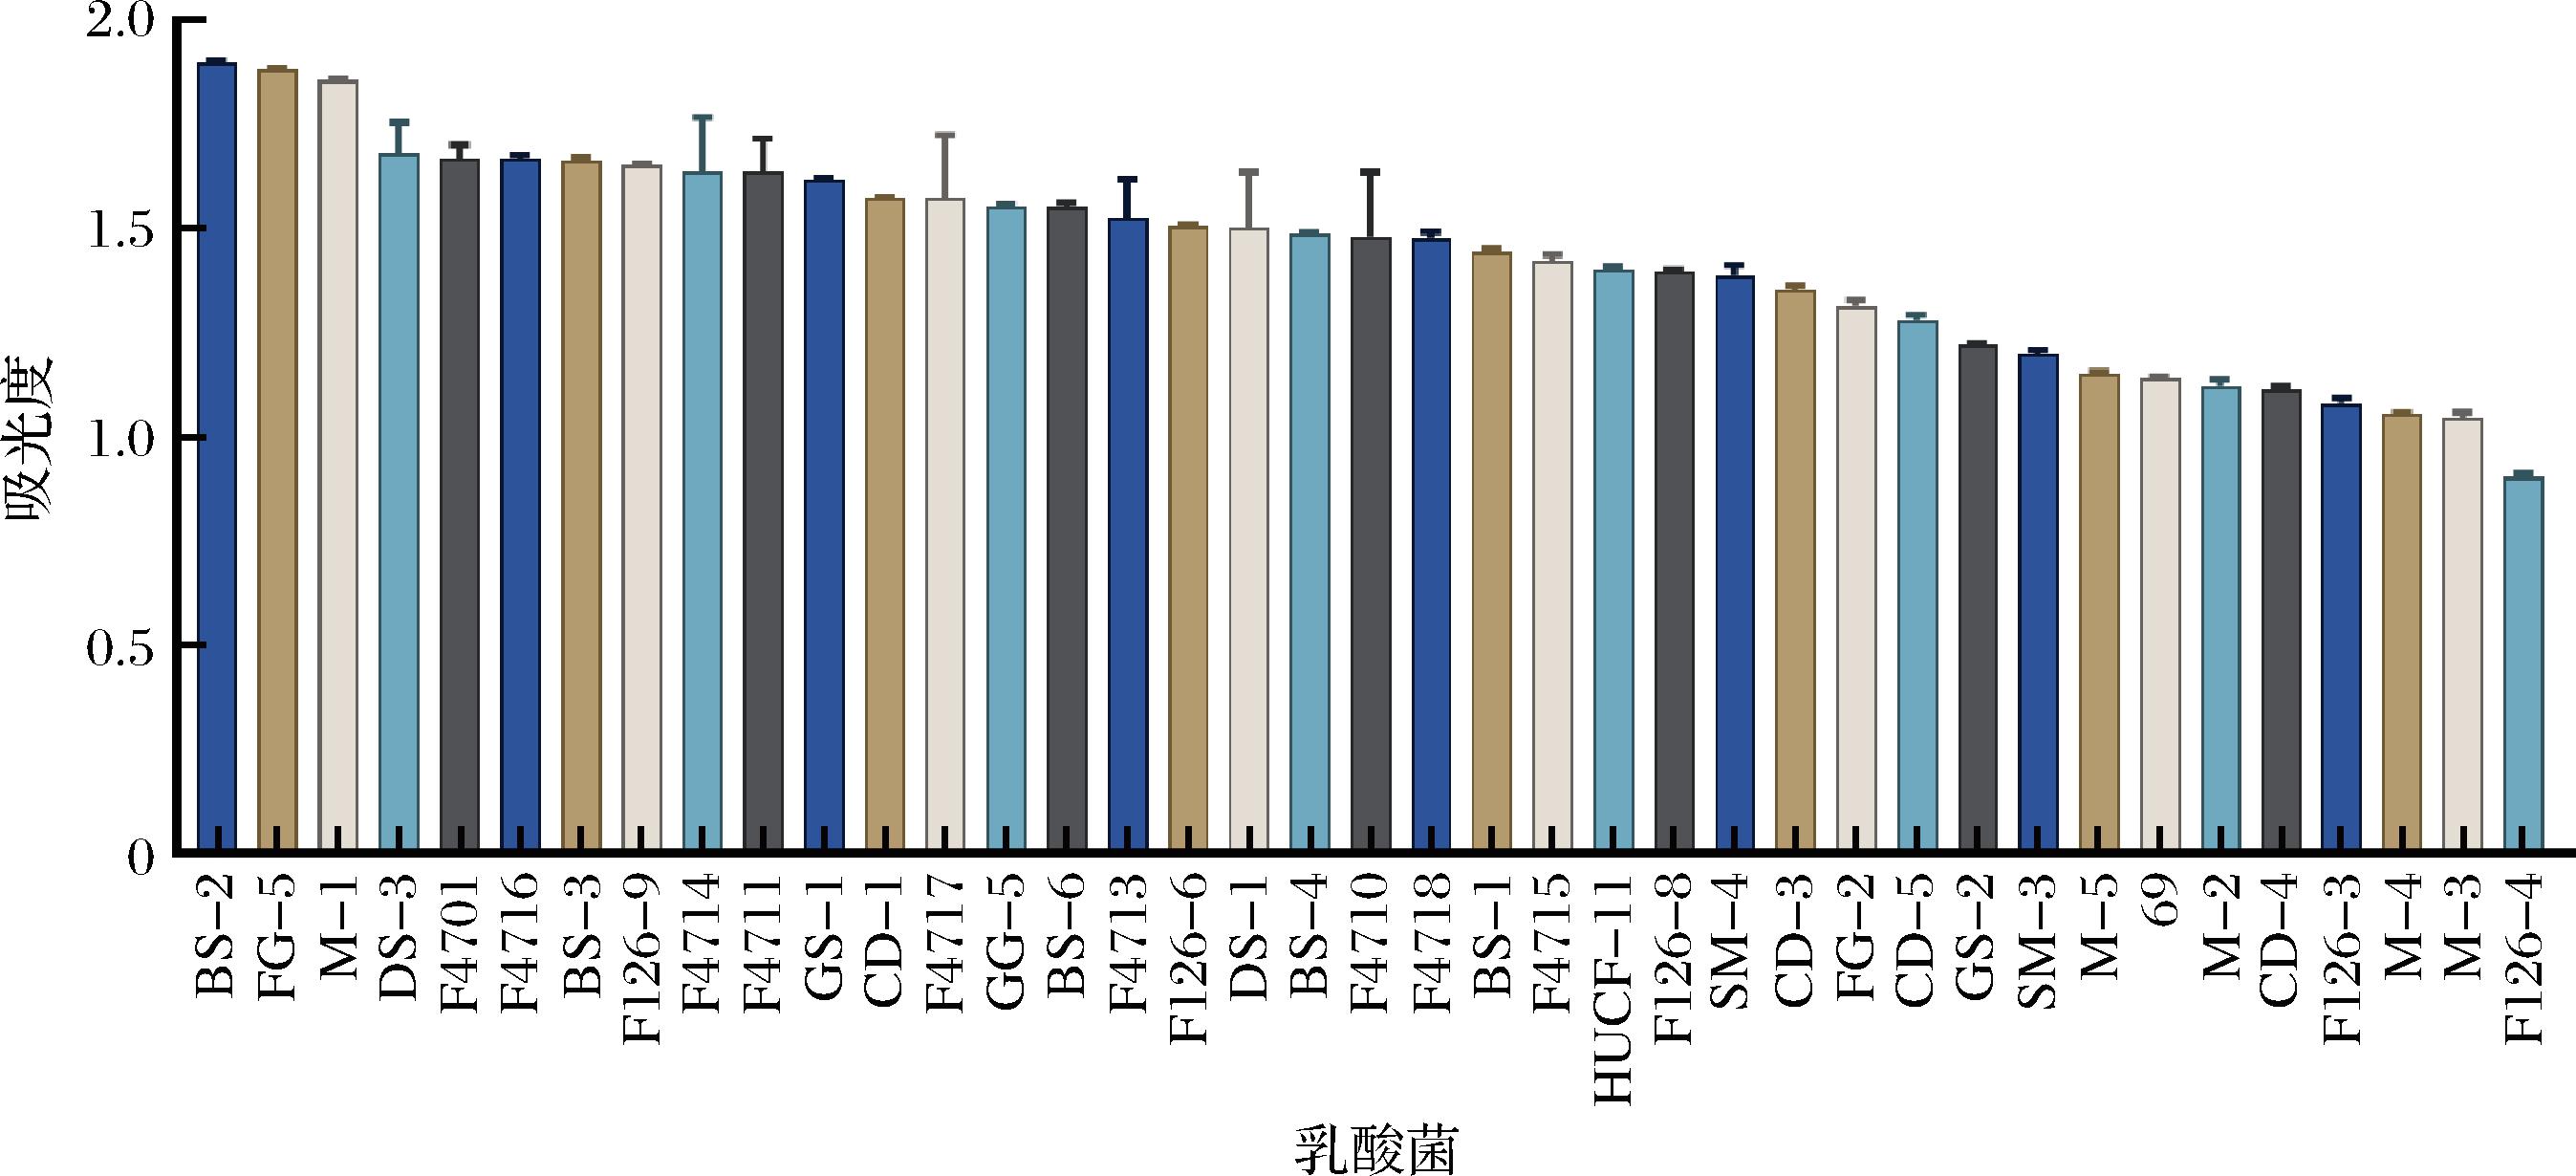
图2 不同乳酸菌产吲哚衍生物能力的差异分析
Fig.2 Analysis of differences in the ability of different lactic acid bacteria to produce indole derivatives
2.2 具有高产吲哚乙酸和色氨能力的乳酸菌筛选
采用高效液相色谱法对各菌株的产IAA和TA的能力进行定量评估。结果如图3所示,筛选的39株菌均具备一定的代谢L-色氨酸产生IAA和TA的能力,植物乳植杆菌HUCF11、GG-5、DS-1、BS-1、CD5等代谢产IAA能力较强,其中菌株HUCF11的TA和IAA产量均最高,将其作为膳食补充剂,继续探究其对睡眠节律的改善能力。
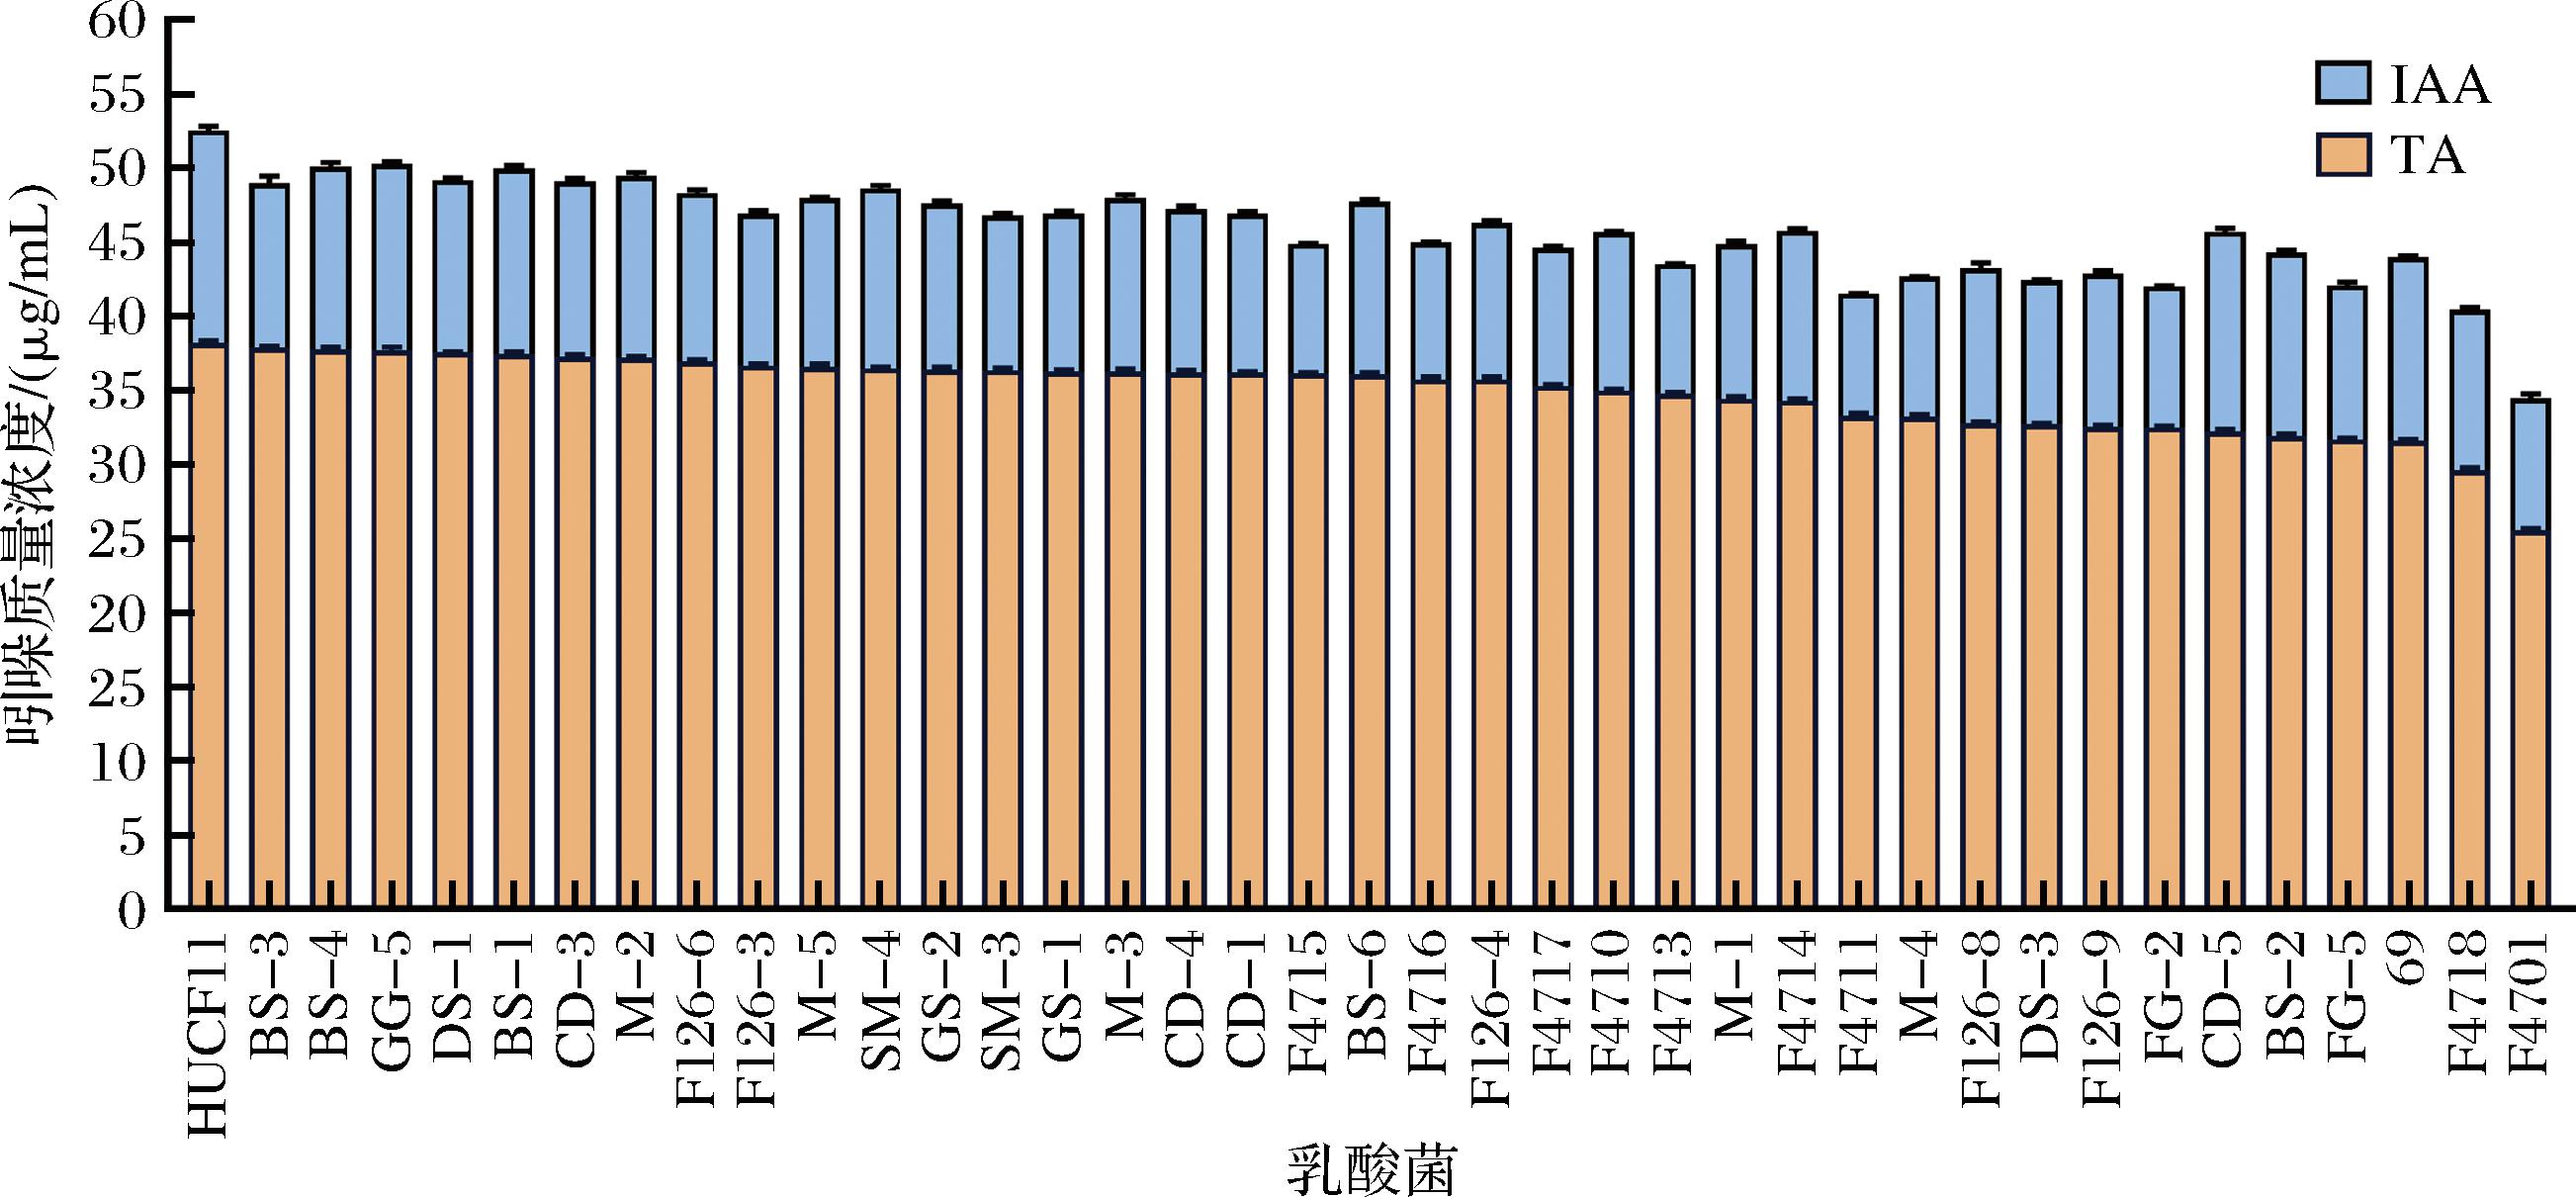
图3 不同乳酸菌产IAA和TA能力的差异分析
Fig.3 Analysis of differences in IAA and TA production capabilities among different lactic acid bacteria
2.3 植物乳植杆菌HUCF11对睡眠剥夺果蝇睡眠行为的影响
通过计算机的活动监测系统对本实验中果蝇的睡眠节律进行量化。结果如图4所示,与健康果蝇比,经睡眠剥夺后的模型组果蝇整体睡眠曲线向下偏移,表明睡眠节律紊乱显著影响睡眠时长(P<0.01),此外,在果蝇日常活动时间内,模型组果蝇的睡眠曲线未呈现显著降低的趋势,提示果蝇的昼夜节律受到显著影响。经植物乳植杆菌HUCF11的膳食补充后,与模型组相比,F4701组果蝇睡眠曲线大致相同,无明显波动;但HUCF11组果蝇睡眠曲线节律趋势趋于正常,且果蝇每30 min的睡眠时间显著提升(P<0.001),表明植物乳植杆菌HUCF11的膳食介入对睡眠节律紊乱果蝇具有显著的安神效果。
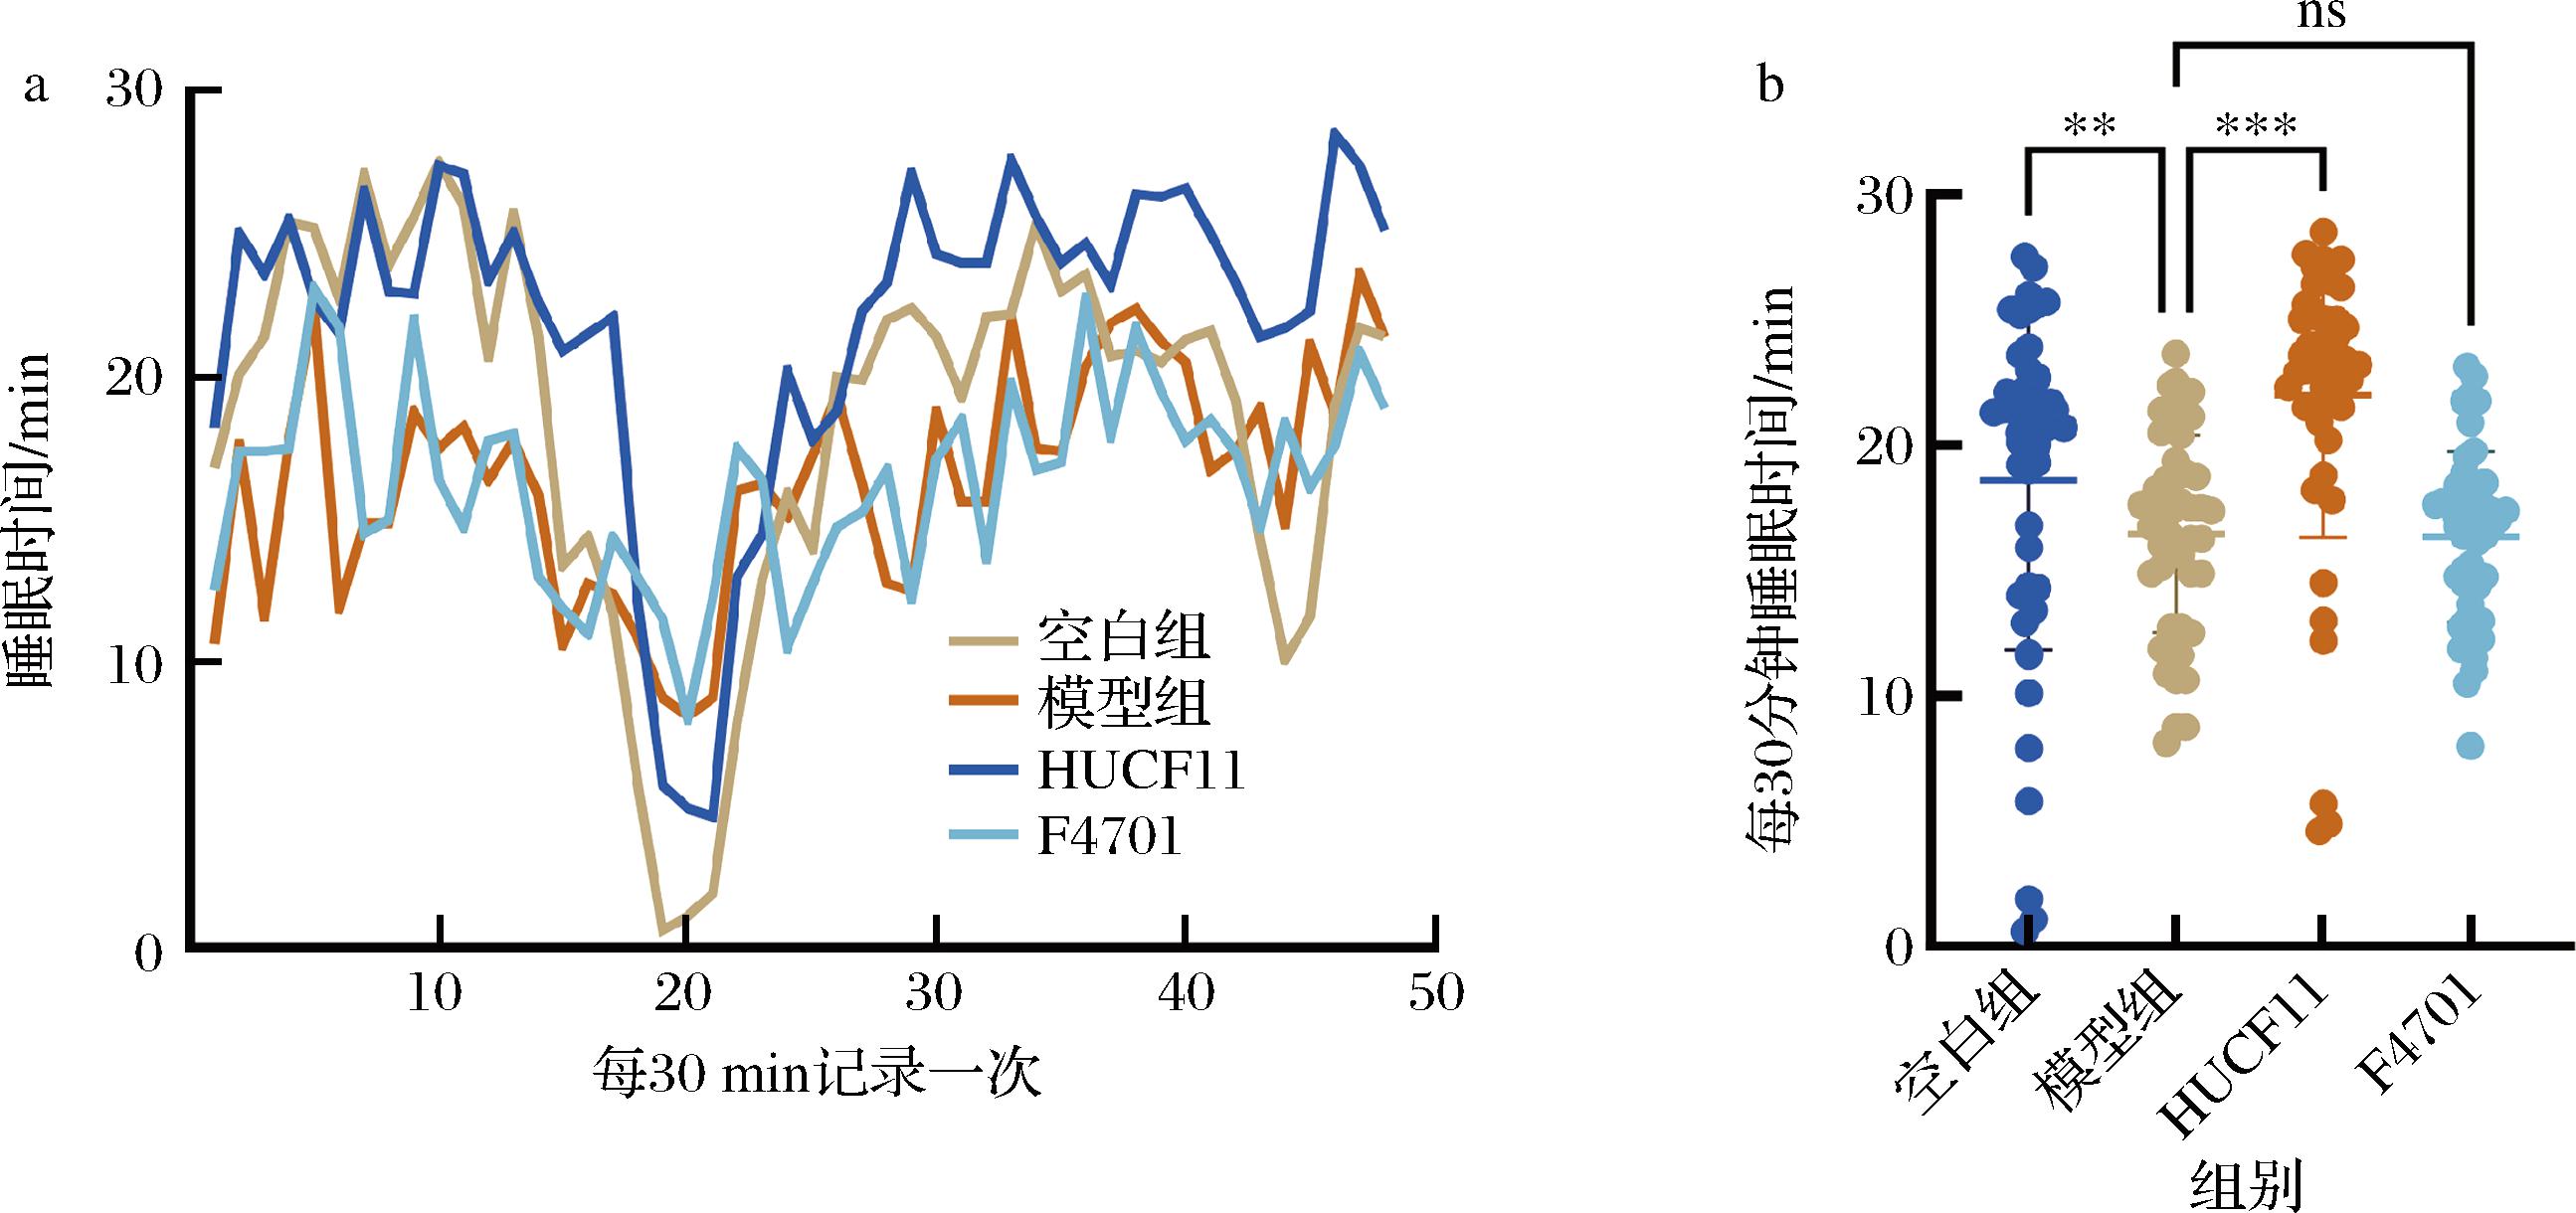
a-果蝇睡眠曲线;b-果蝇平均睡眠时间
图4 HUCF11对睡眠剥夺果蝇睡眠行为的影响
Fig.4 Effect of HUCF11 on sleep behavior in sleep deprivation Drosophila
注:*表示P<0.05,**表示P<0.01,***表示P<0.001(下同)。
2.4 植物乳植杆菌HUCF11对睡眠剥夺果蝇爬管及蹦跳行为的影响
果蝇具有逆重力爬行的特性,其爬行和蹦跳行为能够直接反映被睡眠剥夺后其机体受损伤程度。结果如图5所示,对果蝇进行睡眠剥夺后,果蝇攀爬和蹦跳能力呈现显著下降趋势(P<0.001),表明机体在睡眠剥夺后运动能力受到一定损伤;通过膳食HUCF11干预后,发现对果蝇对抗重力向上攀爬和蹦跳行为均得到显著改善(P<0.01)。表明植物乳植杆菌HUCF11干预可显著提高睡眠剥夺果蝇的攀爬和蹦跳行为,使得因睡眠剥夺引起的运动能力障碍得到改善。与此同时,经植物乳植杆菌F4701组干预后对果蝇运动能力的影响无统计学差异。
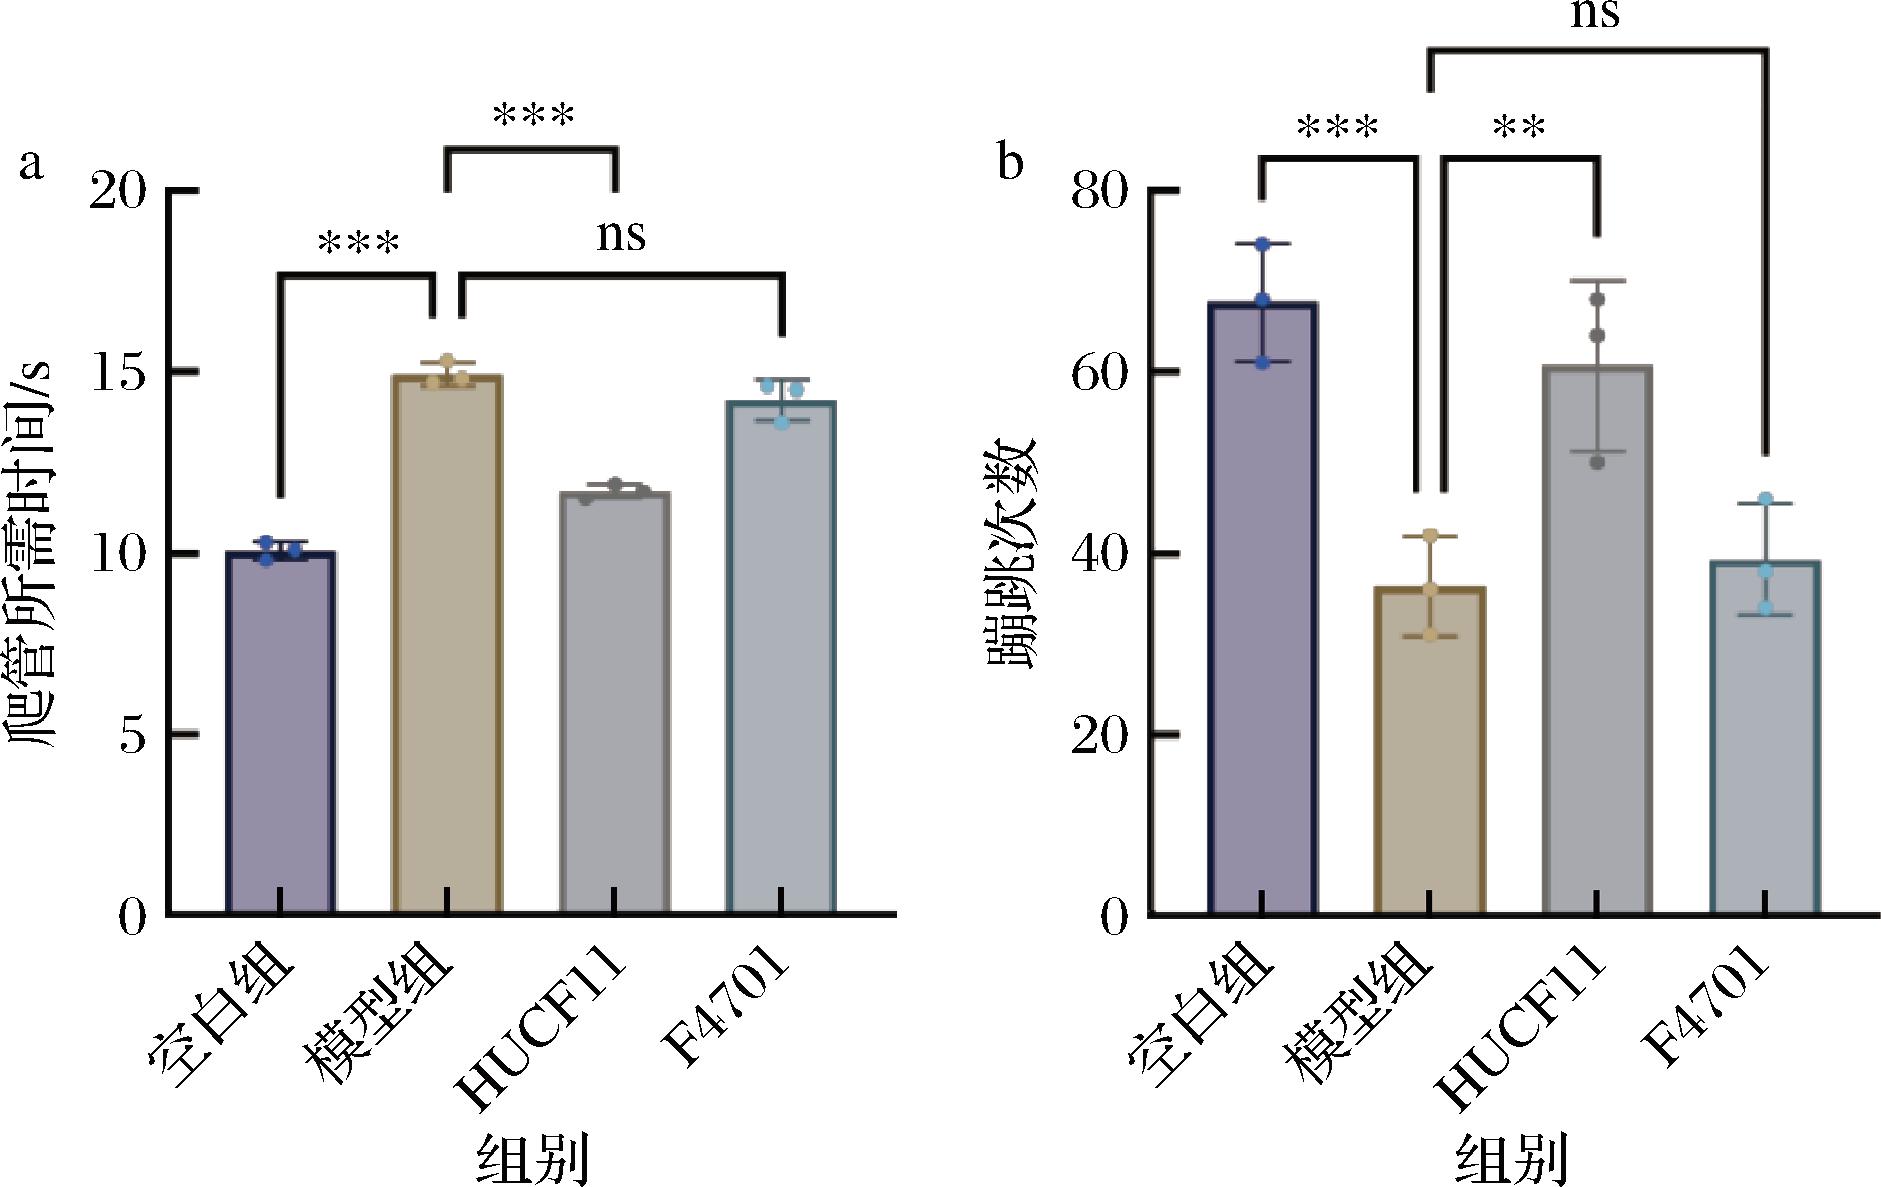
a-果蝇爬管所需时间;b-果蝇蹦跳次数
图5 HUCF11对睡眠剥夺果蝇爬管及蹦跳行为的影响
Fig.5 Effect of HUCF11 on climbing and jumping behavior in sleep-deprived Drosophila
注:ns表示P≥0.05差异不显著(下同)。
2.5 植物乳植杆菌HUCF11对睡眠剥夺果蝇肠道微生态的影响
与健康对照组相比,经过睡眠剥夺的模型组果蝇肠道菌群多样性存在显著异常,表现为丰富度升高,物种多样性显著升高(P<0.01),如图6-a~图6-d所示,与模型组相比,膳食补充植物乳植杆菌HUCF11后,肠道菌群多样性和丰富度均回调,趋近于健康对照组。PCoA结果(图6-e)发现植物乳植杆菌HUCF11的膳食干预可以塑造独特的果蝇肠道微生态体系。提示膳食摄入植物乳植杆菌HUCF11使处于应激状态的果蝇肠道菌群体系发生了显著变化,且膳食调控可以让其肠道微生态环境更趋于健康状态。
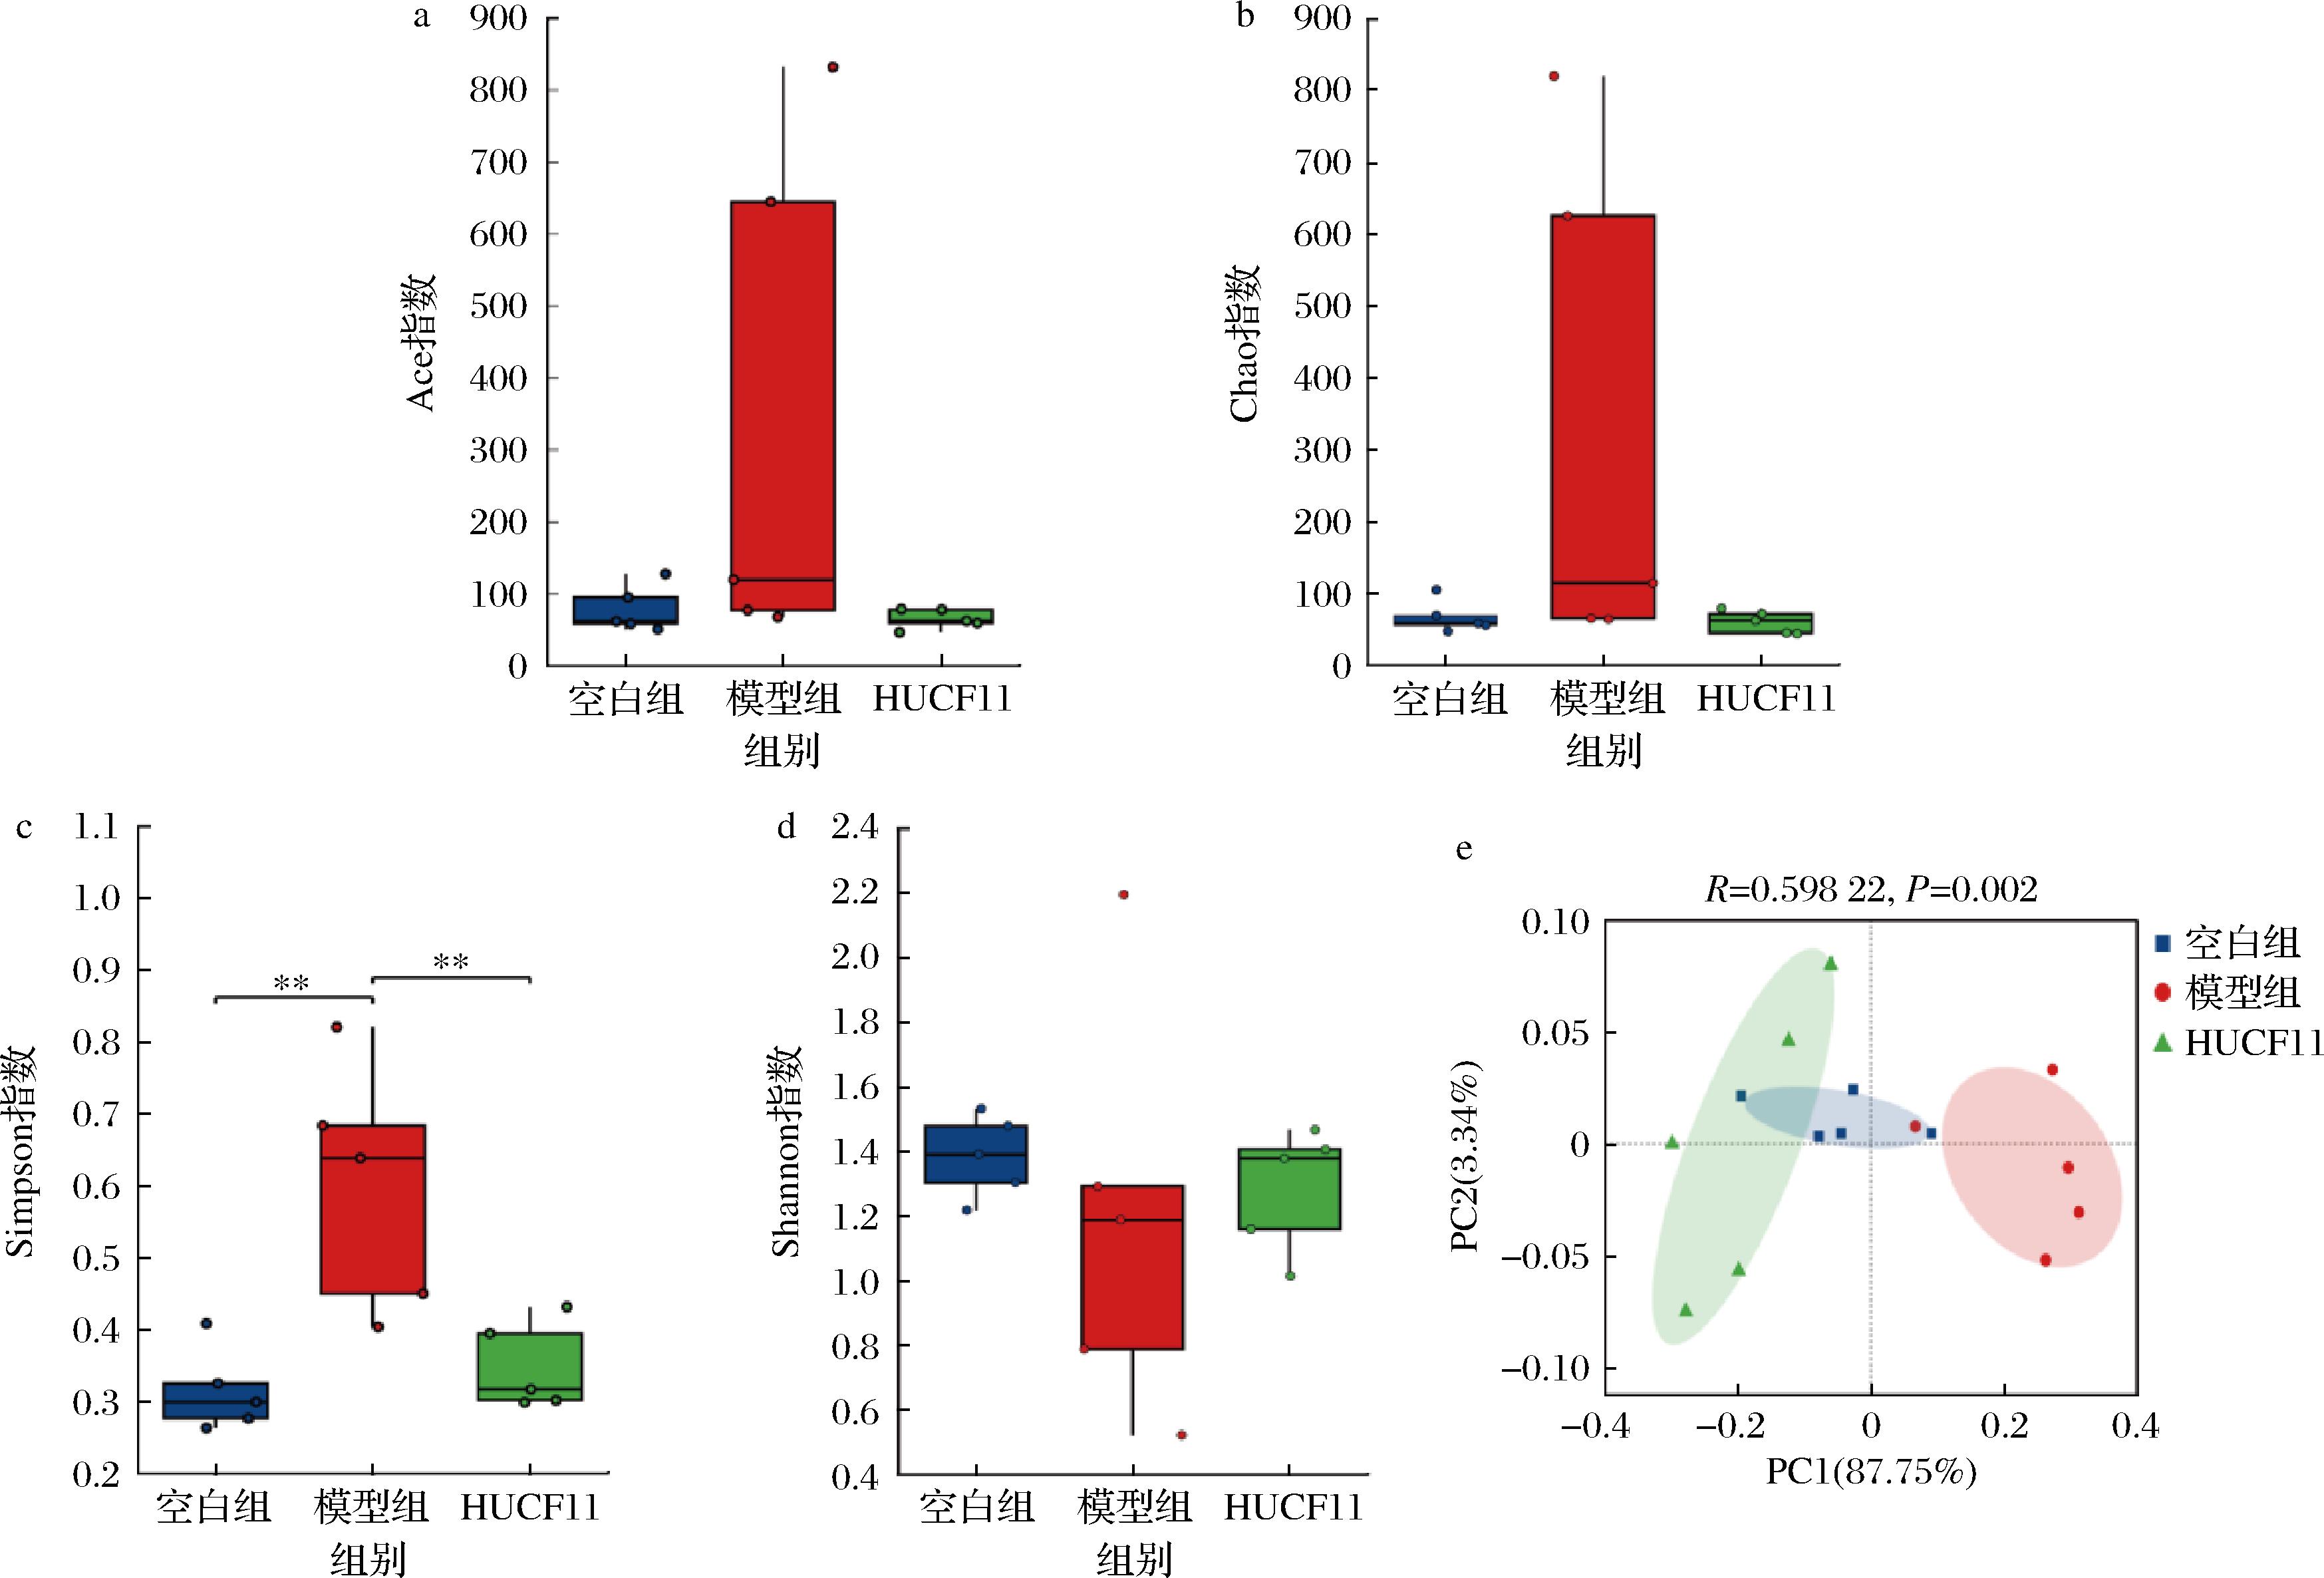
a-Ace指数;b-Chao指数;c-Simpson指数;d-Shannon指数;e-PCoA分析
图6 果蝇肠道菌群α、β多样性分析
Fig.6 Analysis of α and β diversity of gut microbiota in Drosophila
门水平上,结果如图7-a所示,与对照组相比,模型组在假单胞菌门、芽孢杆菌门和酸杆菌门丰度增加,植物乳植杆菌HUCF11膳食干预后假单胞菌门丰度逐步降低,而厚壁菌门和拟杆菌门的丰度则有所提升;属水平上,结果如图7-b所示,模型组表现为魏斯氏菌属(Weissella)和乳植杆菌属(Lactiplantibacillus)丰度降低,同时醋杆菌属(Acetobacter)丰度提升;植物乳植杆菌HUCF11膳食干预后逆转了上述物种的丰度变化,尤其是增加乳植杆菌属和减少醋杆菌属丰度,即植物乳植杆菌HUCF11的干预可显著降低条件致病菌的丰度,提升肠道中益生菌群的丰度,为睡眠节律紊乱果蝇提供肠道益生环境。
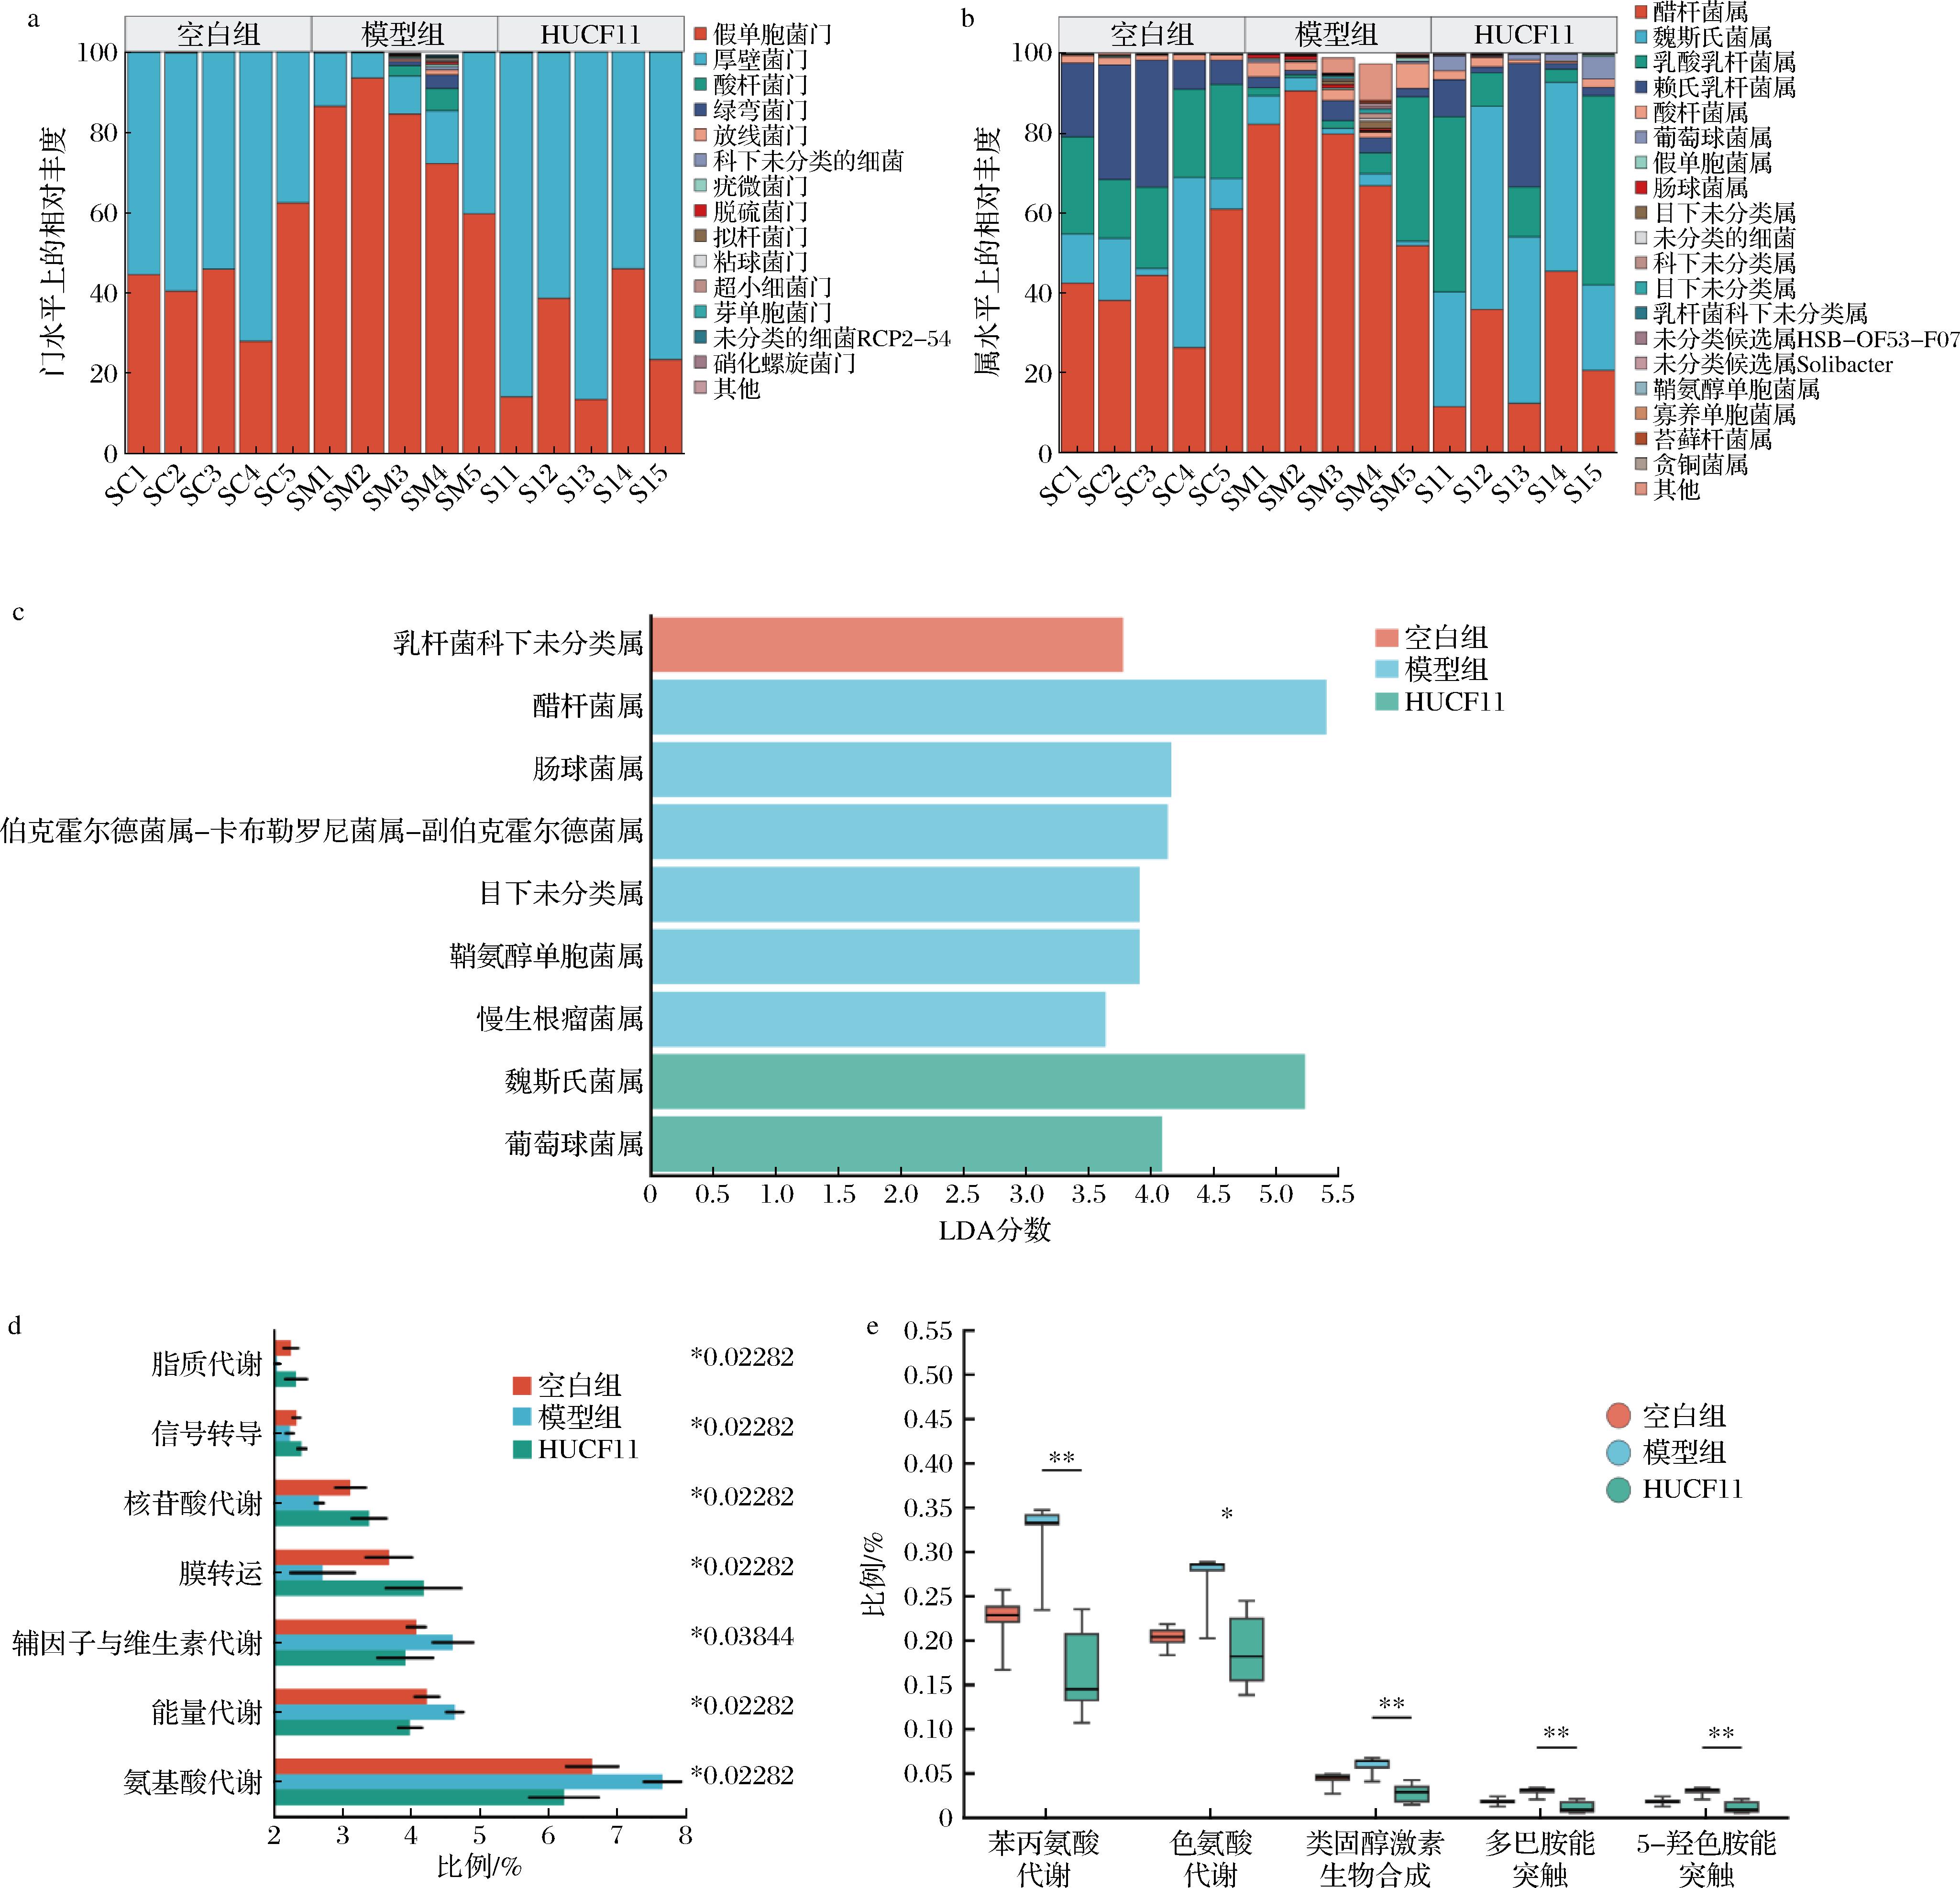
a-门水平;b-属水平;c-LEfSe分析;d-KEGG一级代谢通路分析;e-KEGG三级代谢通路分析
图7 果蝇肠道菌群物种结构
Fig.7 Species structure of gut microbiota in Drosophila
基于Lefse的差异物种分析(LDA Score>3.5),如图7-c所示,显著丰度差异的物种总共有9种。对照组显著差异的菌群为乳杆菌科未分类(g__unclassified_f__Lactobacillaceae);模型组显著差异菌群为醋杆菌属(Acetobacter)、肠球菌属(Enterococcus)、伯克霍尔德菌-卡瓦莱罗尼亚菌-副伯克霍尔德菌属(Burkholderia-Caballeronia-Paraburkholderia)、鞘氨醇单胞菌属(Sphingomonas)和慢生根瘤菌属(Bradyrhizobium);植物乳植杆菌HUCF11干预组显著差异菌群为魏斯氏菌属(Weissella)和葡萄球菌属(Staphylococcus)。
基于KEGG代谢通路菌群功能预测分析,二级通路中,氨基酸代谢、能量代谢、脂质代谢、核苷酸代谢等通路差异显著(图7-d);三级通路中,色氨酸代谢、苯丙氨酸代谢、类固醇激素生物合成、多巴胺突触和5-羟色胺突触等通路差异显著(图7-e)。色氨酸代谢通路在炎症反应中起重要的作用。色氨酸可被细菌分解为吲哚-3-乙酸、吲哚丙酸等,可以维持果蝇的肠壁屏障完整性和免疫细胞活性[20]。苯丙氨酸是必需的氨基酸,代谢产物可以调节体内葡萄糖和脂肪的代谢[21],此外,代谢产生的神经递质多巴胺是神经通路调节运动功能的主要物质之一。由肾上腺皮质合成的皮质醇随昼夜波动与觉醒状态同步[22];中脑腹侧被盖区和黑质的多巴胺神经元通过D1/D2受体,可维持觉醒和奖赏驱动的警觉状态[23];5-羟色胺通过激活5-HT1A和5-HT1B受体调节睡眠阶段转换[24]。基于以上结论,可推演植物乳植杆菌HUCF11通过“吲哚代谢物-神经递质-睡眠行为”途径发挥睡眠调节的潜在机制:HUCF11促进色氨酸向吲哚及其衍生代谢物转化,相关代谢物可能作为肠-脑信号分子,通过影响肠道上皮与神经-免疫相关通路,进而调节宿主神经递质合成、释放或神经环路兴奋性,最终表现为睡眠结构与行为学表型的改善。需要强调的是,当前证据以菌群变化与功能预测为主,缺乏通过靶向代谢组学对关键吲哚代谢物及神经递质水平变化的直接检测与因果链验证。
2.6 相关性分析
利用Spearman相关系数分析果蝇中的优势菌属与行为学指标之间的相互作用,结果如图8所示,BT与Lactiplantibacillus、Levilactobacillus等呈显著负相关(r=-0.716 7,P=0.024 5;r=-0.733 3,P=0.029);与Enterococcus、Acinetobacter等呈显著正相关(r=0.932 3,P=0.000 2;r=0.783,P=0.001 2),但PG与Enterococcus、Acinetobacter、Pseudomonas菌属等呈极显著负相关(r=-0.800 7,P=0.009 6;r=-0.828 5,P=0.005 8;r=-0.845 2,P=0.021 3);SM与Lactiplantibacillus呈显著性正相关(r=0.666 7,P=0.049 8),与Acetobacter、Cupriavidus菌属呈显著性负相关(r=-0.783 3,P=0.012 5;r=-0.714 3,P=0.030 6)。行为学指标均与益生菌群呈现正相关,其中Lactiplantibacillus是肠道重要的菌群之一,可参与色氨酸代谢生成吲哚类衍生物为机体合成褪黑素提供关键原料[25];假单胞菌可通过产生炎症相关分子或引发宿主免疫系统的反应,间接影响睡眠质量[12];提示植物乳植杆菌HUCF11可能通过改变肠道菌群组成和相对丰度,进一步通过相关代谢产物调控睡眠状态。
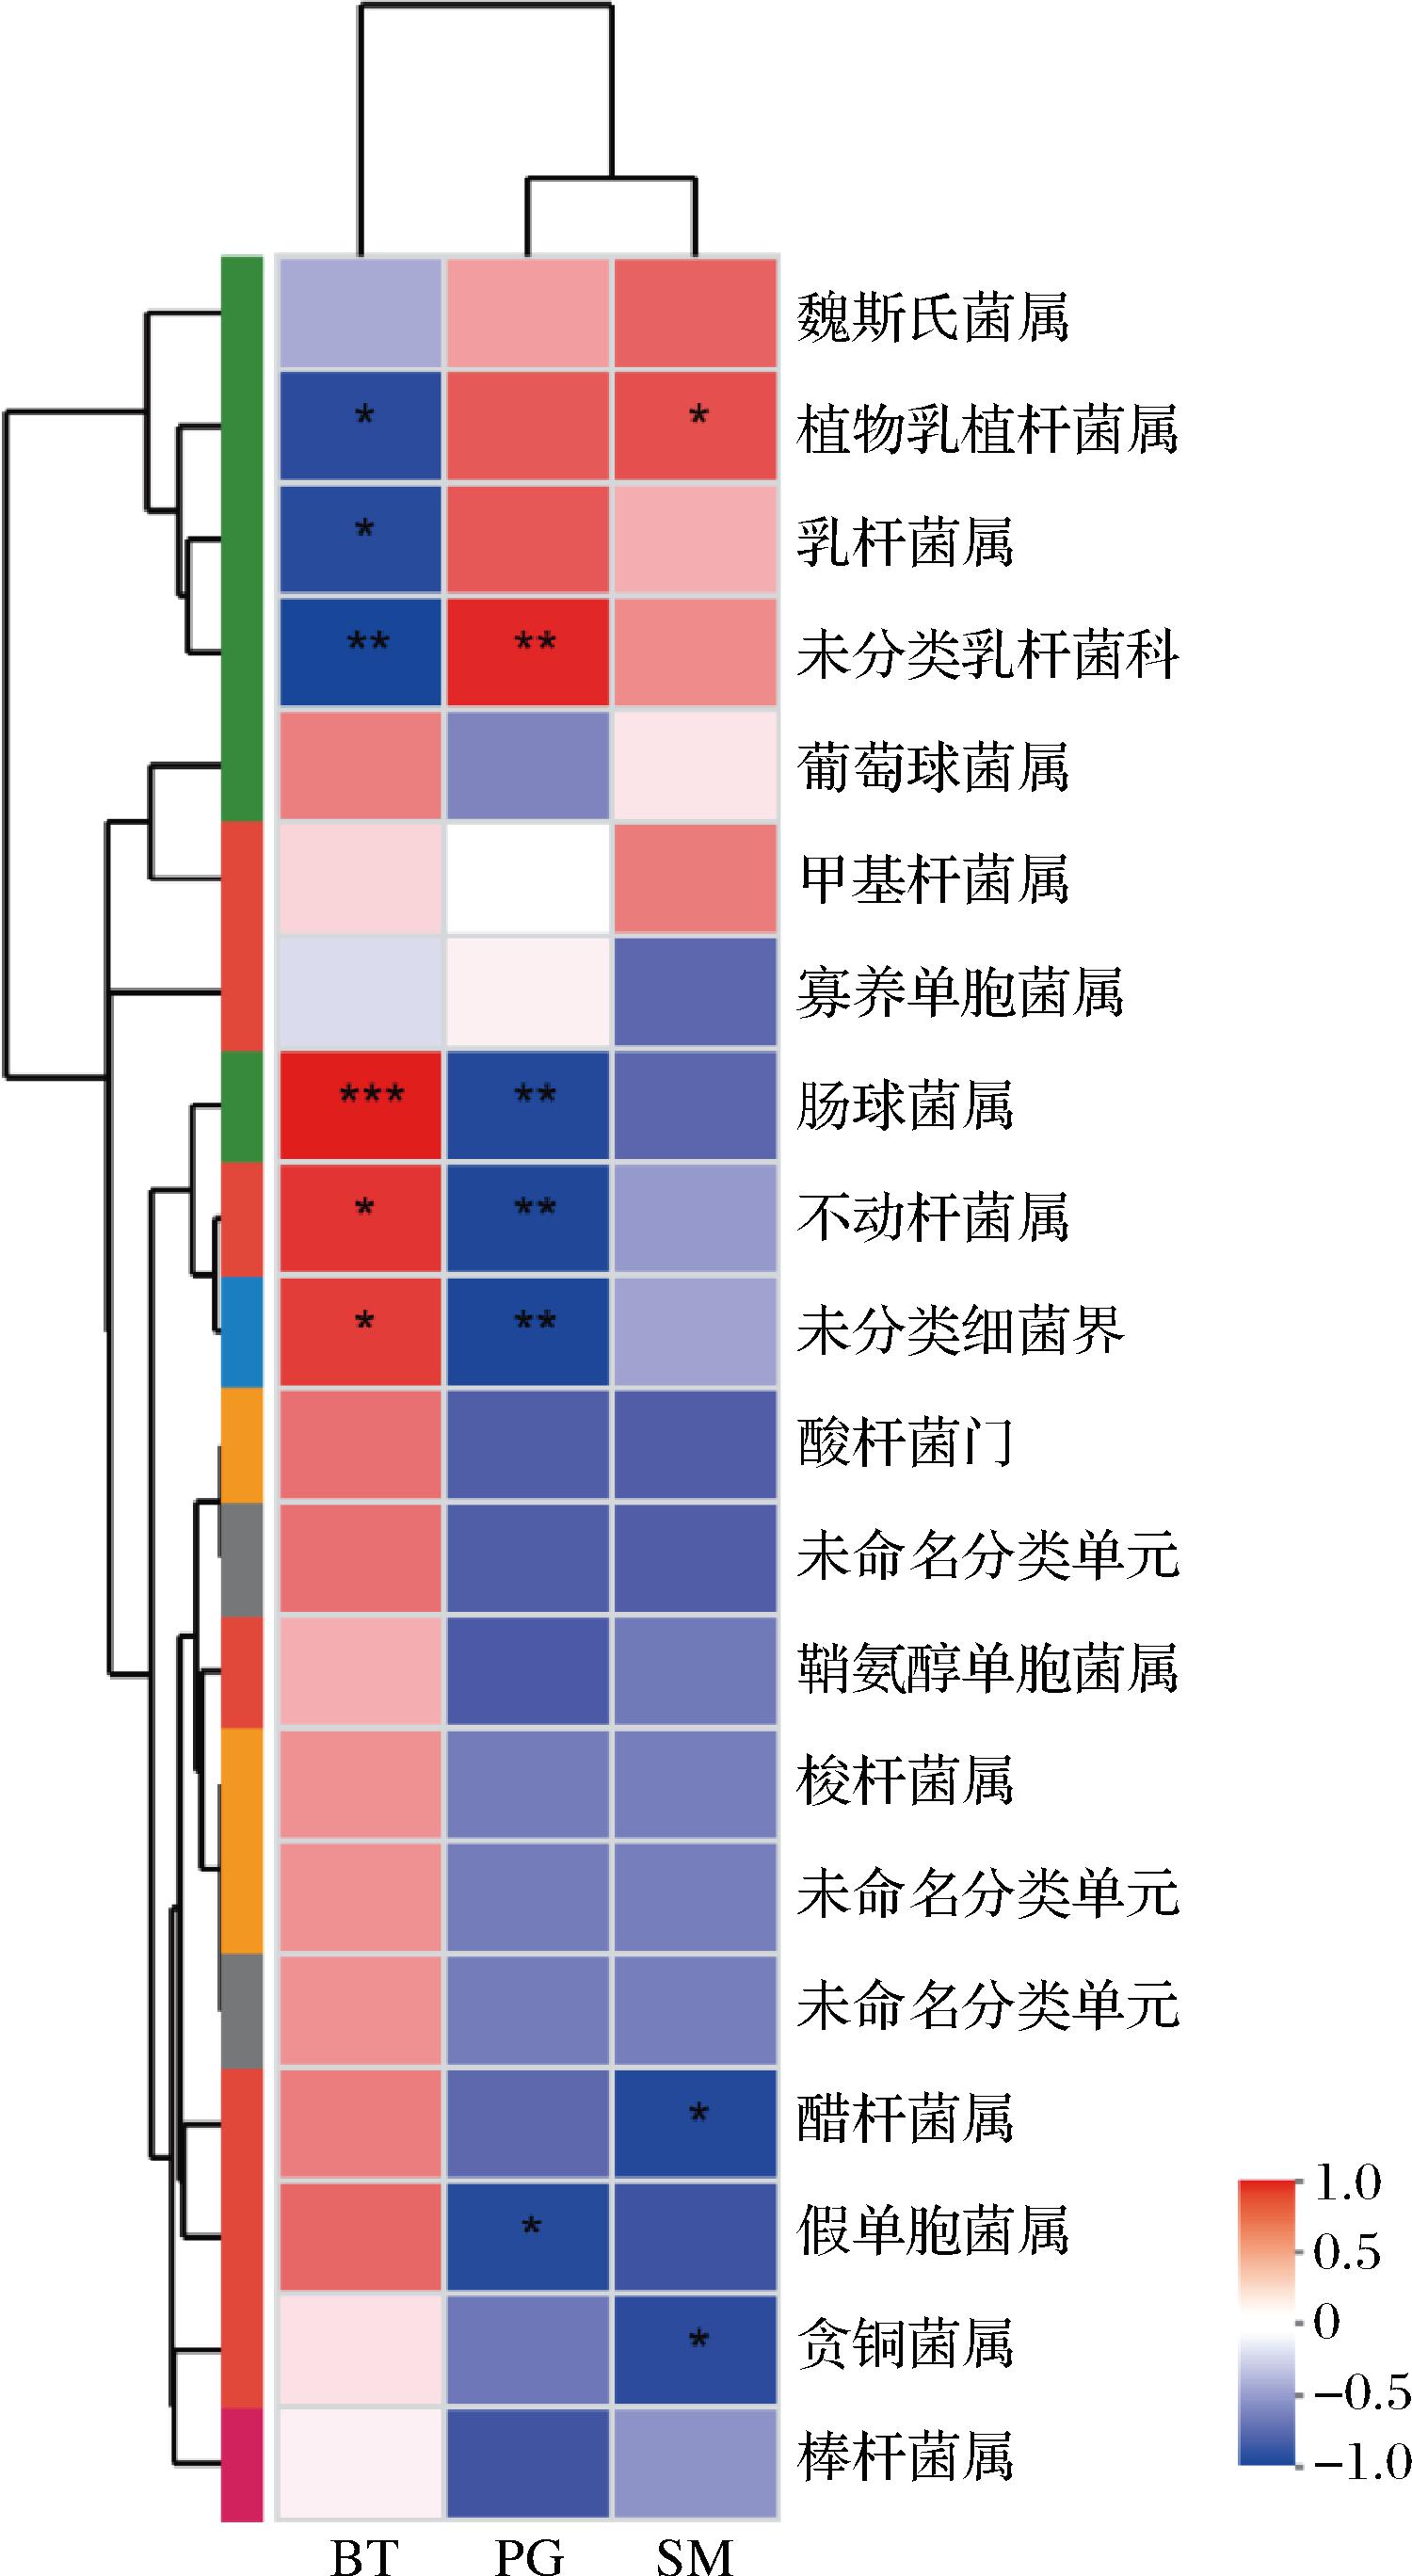
图8 肠道微生物与运动和睡眠指标关联分析
Fig.8 Association analysis of gut microbiota with exercise and sleep
注:BT-蹦跳行为;PG-爬管行为;SM-睡眠行为。
3 结论
本研究从体外筛选获得色氨酸代谢产吲哚能力最优的植物乳植杆菌HUCF11,经睡眠剥夺果蝇模型验证,该菌株可显著改善果蝇睡眠指标与运动能力,同时有效调节肠道菌群结构,提升拟杆菌门、厚壁菌门及乳植杆菌属、魏斯氏菌等有益菌丰度,降低假单胞菌门丰度,恢复菌群多样性。功能预测与相关性分析也显示肠道菌群在改善睡眠节律中发挥关键作用。综上,该菌株为解析乳酸菌-吲哚-睡眠调控机制提供了数据支持,丰富了改善睡眠的益生菌资源多样性,为功能性睡眠调节益生菌产品的研发与产业化应用奠定了重要菌株基础和理论依据。
[1] Chellappa S L, Aeschbach D.Sleep and anxiety:From mechanisms to interventions[J].Sleep Medicine Reviews, 2022, 61:101583.
[2] Aernout E, Benradia I, Hazo J B, et al.International study of the prevalence and factors associated with insomnia in the general population[J].Sleep Medicine, 2021, 82:186-192.
[3] Ngomana C, Komape K D, Bronkhorst E.A review on holistic and pharmacological management of insomnia[J].SA Pharmaceutical Journal, 2025, 92(1):11-16.
[4] 赵宁. 补充益生菌改善睡眠剥夺引起的肠道应激损伤的机制研究[D].武汉:华中科技大学, 2024.Zhao N.Mechanism of probiotics supplementation ameliorating intestinal stress injury induced by sleep deprivation[D].Wuhan:Huazhong University of Science and Technology, 2024.
[5] Dhaliwal J, Singh D P, Singh S, et al.Lactobacillus plantarum MTCC 9510 supplementation protects from chronic unpredictable and sleep deprivation-induced behaviour, biochemical and selected gut microbial aberrations in mice[J].Journal of Applied Microbiology, 2018, 125(1):257-269.
[6] Li N, Tan S W, Wang Y, et al.Akkermansia muciniphila supplementation prevents cognitive impairment in sleep-deprived mice by modulating microglial engulfment of synapses[J].Gut Microbes, 2023, 15(2):2252764.
[7] Mejía-Caballero A, Marco M L.Lactobacilli biology, applications and host interactions[J].Nature Reviews Microbiology, 2026, 24(2):111-126.
[8] Yadav M, Mandeep, Shukla P.Probiotics of diverse origin and their therapeutic applications:A review[J].Journal of the American College of Nutrition, 2020, 39(5):469-479.
[9] Hindson J.A possible link between multiple sclerosis and gut microbiota[J].Nature Reviews Neurology, 2017, 13(12):705.
[10] Xue C, Li G L, Zheng Q X, et al.Tryptophan metabolism in health and disease[J].Cell Metabolism, 2023, 35(8):1304-1326.
[11] Han J, Zhang L J, Lyu Y X, et al.Indole-3-acetic acid exerts protective effects on sleep deprivation-induced cognitive impairment[J].Neuropharmacology, 2026, 283:110747.
[12] Wang Z, Chen W H, Li S X, et al.Gut microbiota modulates the inflammatory response and cognitive impairment induced by sleep deprivation[J].Molecular Psychiatry, 2021, 26(11):6277-6292.
[13] Greenspan R J, Tononi G, Cirelli C, et al.Sleep and the fruit fly[J].Trends in Neurosciences, 2001, 24(3):142-145.
[14] Dubowy C, Sehgal A.Circadian rhythms and sleep in Drosophila melanogaster[J].Genetics, 2017, 205(4):1373-1397.
[15] 徐佳敏, 周桂珍, 田晓菊.葡萄酒酿造中降解生物胺乳酸菌的筛选、鉴定及其特性[J].食品与发酵工业, 2022, 48(21):48-53.Xu J M, Zhou G Z, Tian X J.Screening, identification, and characteristics of lactic acid bacteria with biogenic amines degrading activity in wine brewery[J].Food and Fermentation Industries, 2022, 48(21):48-53.
[16] 许光辉, 李廷利.刺五加对果蝇睡眠剥夺模型睡眠及全基因表达谱的影响[J].中药药理与临床, 2012, 28(5):119-122.Xu G H, Li T L.Effects of Acanthopanax senticosus on sleep and gene expression profiles of sleep-deprivated Drosophila[J].Pharmacology and Clinics of Chinese Materia Medica, 2012, 28(5):119-122.
[17] Donelson N C, Kim E Z, Slawson J B, et al.High-resolution positional tracking for long-term analysis of Drosophila sleep and locomotion using the “tracker” program[J].PLoS One, 2012, 7(5):e37250.
[18] 李秀娟, 魏晶晶, 柴学军, 等.元宝枫油对衰老果蝇生理指标及肠道菌群的影响[J].食品科学, 2024, 45(3):76-83.Li X J, Wei J J, Chai X J, et al.Effect of Acer truncatuom seed oil on physiological indicators and intestinal flora in aging Drosophila melanogaster[J].Food Science, 2024, 45(3):76-83.
[19] 谭才邓. 微生物学基础[M].北京:化学工业出版社, 2024.Tan C D.Fundamentals of Microbiology[M].Beijing:Chemical Industry Press, 2024.
[20] Gao J, Xu K, Liu H N, et al.Impact of the gut microbiota on intestinal immunity mediated by tryptophan metabolism[J].Frontiers in Cellular and Infection Microbiology, 2018, 8:13.
[21] Liu Y L, Hou Y L, Wang G J, et al.Gut microbial metabolites of aromatic amino acids as signals in host-microbe interplay[J].Trends in Endocrinology &Metabolism, 2020, 31(11):818-834.
[22] Hucklebridge F, Hussain T, Evans P, et al.The diurnal patterns of the adrenal steroids Cortisol and dehydroepiandrosterone (DHEA) in relation to awakening[J].Psychoneuroendocrinology, 2005, 30(1):51-57.
[23] Keiflin R, Pribut H J, Shah N B, et al.Ventral tegmental dopamine neurons participate in reward identity predictions[J].Current biology:CB, 2019, 29(1):93-103.
[24] Ragini, Sakshi, Saini A, et al.Endocytosis and signaling of 5-HT1A receptor[J].Progress in Molecular Biology and Translational Science, 2023, 196:113-123.
[25] Ahmadi S, Taghizadieh M, Mehdizadehfar E, et al.Gut microbiota in neurological diseases:Melatonin plays an important regulatory role[J].Biomedicine &Pharmacotherapy, 2024, 174:116487.