幽门螺旋杆菌(Helicobacter pylori)是一种革兰氏阴性、微需氧型细菌[1],主要定植于人体胃黏膜中[2],是慢性胃炎、胃溃疡及胃癌的重要致病因子[3],已被世界卫生组织认定为I类致癌物[4]。清除H.pylori不仅可以预防胃部疾病的发生,还能降低慢性胃炎等疾病的复发率[5]。近年来,由于抗生素的广泛使用,现行的四联疗法对H.pylori的清除率逐渐降低[6],因此,人们开始从植物中提取天然活性成分抑制H.pylori[7-8]。
沙棘(Hippophae rhamnoides L.)是胡颓子科、沙棘属落叶灌木[9],别名醋柳[10],我国沙棘占世界沙棘资源的90%以上[11]。沙棘是一种药食同源植物,其果实富含多酚、多糖、维生素及不饱和脂肪酸等活性成分[12],在中国民间常用于治疗胃部疾病。课题组前期研究表明,沙棘提取物能够抑制H.pylori活性[13-14],并发现其中主要抑菌活性成分为多酚[15]、黄酮[16]、有机酸[17]等物质。
团队前期采用超声波乙醇提取法提取沙棘多酚,以沙棘多酚粉为主要原料,开发了一款酸甜适宜、口感良好的沙棘多酚压片糖果,并进行抑菌圈实验,结果表明,其具有良好的抑菌效果。因此,本研究基于前期工作,利用超高效液相色谱-串联高灵敏度质谱(ultra-high-performance liquid chromatography-tandem mass spectrometry,UPLC-MS/MS)对沙棘多酚压片糖果成分进行了分析,并通过探究其对H.pylori膜结构及脲酶活性的作用以阐明抑菌机制,旨在为沙棘活性物质抑制H.pylori的相关产品开发提供参考。
1 材料与方法
1.1 材料与仪器
沙棘(中国沙棘亚种)鲜果,采摘于青海省海东市(海拔高度3 000~3 300 m,36.37° N,102.27° E);H.pylori ATCC 43504,商城北纳创联生物科技有限公司(菌种编号 BNCC339501)。
实验试剂:布氏肉汤培养基,青岛海博生物技术有限公司;胎牛血清,浙江天杭生物科技股份有限公司;万古霉素、两性霉素B、多黏菌素B、甲氧苄啶、尿素,北京索莱宝科技有限公司;p-碘硝基四唑紫,上海麦克林生化科技有限公司;N-苯基-1-萘胺,上海源叶生物科技有限公司;甲酚红,上海展云化工有限公司;乙二胺四乙酸,天津市河东区红岩试剂厂。
主要仪器与设备:HNY-100B恒温培养振荡器,天津市欧诺仪器仪表有限公司;DGL-75B立式蒸汽灭菌锅,江苏登冠医疗器械有限公司;Varioskan LUX多功能酶标仪,美国Thermo Fisher公司;JSM-7900F场发射扫描电子显微镜,日本电子株式会社。
1.2 实验方法
1.2.1 沙棘多酚提取
采用超声波提取法提取沙棘多酚,提取条件为:乙醇体积分数52%,料液比1∶20(g∶mL),超声波时间38 min,提取温度60 ℃,超声波功率350 W。提取液经旋蒸后冻干,所得沙棘多酚粉于低温下保存备用。
1.2.2 沙棘多酚压片糖果制备
沙棘多酚压片糖果配方工艺为:沙棘多酚粉0.39 g,羊奶粉添加量0.289 g,微晶纤维素添加量0.242 g,木糖醇添加量0.062 g,硬脂酸镁添加量0.017 g。产品硬度(74.91±0.38) N、脆碎度(0.29±0.02)%和崩解时间(782±12.77) s均符合《中国药典》2020年版的要求。
1.2.3 沙棘多酚压片糖果组分分析
待测样液的制备:沙棘多酚压片糖果用水充分溶解后,用0.22 μm滤膜过滤,得到样品溶液。
采用UPLC-MS/MS对样液进行分析。液相色谱参数:UPLC Kinetex C18色谱柱(2.1 mm×50 mm,2.6 μm);流动相A:体积分数0.01%乙酸水溶液,流动相B:乙腈-异丙醇(体积比1∶1);柱温箱温度25 ℃,进样器温度4 ℃,进样体积1 μL,流速0.3 mL/min。质谱参数:采用H-ESI离子源,以平行反应监测模式进行质谱分析。喷雾电压3.8 kV/-3.4 kV;鞘气流量50 Arb;辅助气体流量15 Arb;扫吹气流量1 Arb;离子传输管温度320 ℃;汽化器温度400 ℃。
1.2.4 沙棘多酚压片糖果体外抑菌效果测定
H.pylori液体培养:参考谢坤豪等[15]的方法稍作修改。在灭菌、冷却后的布氏肉汤培养基中加入10%(体积分数)胎牛血清和1%(体积分数)混合抗生素(1.6 g/L万古霉素、1.6 g/L两性霉素B、0.06 g/L多粘菌素B、0.8 g/L甲氧苄啶),混匀后接种H.pylori菌种,将接种后的培养基置于含有微需氧产气袋的培养盒中,37 ℃振荡培养48 h。
沙棘多酚压片糖果工作液(sea buckthorn polyphenol candy extract,SPC)制备:取沙棘多酚压片糖果4 g,溶于10 mL水中,充分振荡溶解后,用0.22 μm滤膜过滤,制备质量浓度为400 mg/mL的SPC。
最小抑菌浓度(minimum inhibitory concentration,MIC)和最小杀菌浓度(minimum bactericidal concentration,MBC)的测定:分别采用肉汤稀释法和p-碘硝基四唑紫溶液指示法测定SPC的MIC和MBC,用布氏肉汤培养基将400 mg/mL的SPC分别稀释为200、100、50、25、12.5、6.25、3.125 mg/mL,在96孔板中依次加入100 μL不同质量浓度的SPC,每个孔中加入50 μL OD600值=1.00±0.02的H.pylori菌悬液,以不添加SPC的孔作为空白对照,以阿莫西林为阳性对照,混匀后微需氧37 ℃培养48 h,以无菌落生长的最低SPC浓度定义为MIC。进一步基于MIC实验结果进行MBC测定:向各孔中加入50 μL 0.2 mg/mL p-碘硝基四唑紫溶液,相同条件下继续培养2 h,将无颜色变化的最低SPC浓度定义为MBC。
沙棘多酚压片糖果对H.pylori生长的影响:通过测定OD600值来反映H.pylori的生长状况。H.pylori培养48 h后,用布氏肉汤培养基调节至菌液OD600值=1.00±0.02,将菌液与阿莫西林(MIC)和SPC(0、1/4MIC、1/2MIC、MIC、2MIC和4MIC)混合,37 ℃培养48 h后测定OD600值,阿莫西林为阳性对照。
1.2.5 沙棘多酚压片糖果体外抑菌机制研究
细胞外膜渗透率的影响:用PBS洗涤培养48 h的H.pylori 2次,制成菌悬液(OD600值=1.00±0.02)。将菌悬液与SPC(0、1/4MIC、1/2MIC、MIC、2MIC和4MIC)混合,37 ℃培养4 h后,PBS洗涤2次,分别加入每孔含有40 μL N-苯基-1-萘胺的96孔板中,37 ℃培养30 min,利用多功能酶标仪进行荧光值测定。荧光强度检测的操作参数:激发波长350 nm,发射波长420 nm。
细胞膜完整性测定:用PBS洗涤培养48 h的H.pylori 2次,制成菌悬液(OD600值=1.00±0.02)。将菌悬液与SPC(0、1/4MIC、1/2MIC、MIC、2MIC和4MIC)37 ℃培养12 h。离心取上清液,用酶标仪在260、280 nm波长下测定吸光值。
膜蛋白测定:用PBS洗涤培养48 h的H.pylori 2次,制成菌悬液(OD600值=1.00±0.02)。将菌悬液与不同浓度的KI溶液(0、0.2、0.4、0.6、0.8、1.0 mol/L)和SPC(0、1/4MIC、1/2MIC、MIC、2MIC和4MIC)37 ℃培养1 h,在280、296 nm处测定荧光发光值。
脲酶活性测定:用9 g/L NaCl溶液调节培养48 h 的H.pylori浓度为OD600值=1.00±0.02。将菌液与SPC(0、1/4MIC、1/2MIC、MIC、2MIC和4MIC)37 ℃培养2 h后,加入混合溶液(1.5 g/L甲酚红、1 g/L乙二胺四乙酸、0.2 g/L尿素)继续培养,20 min后在590 nm处测定吸光值。
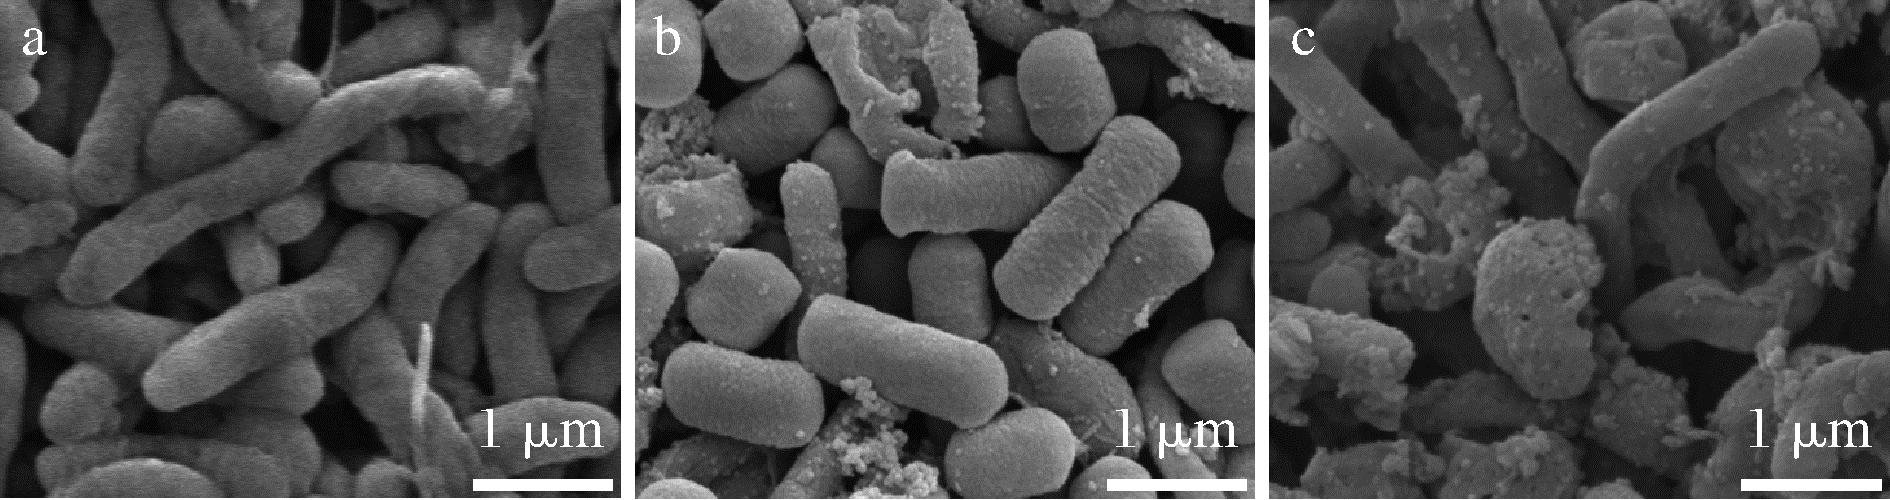
细胞结构分析:H.pylori培养48 h后,用布氏肉汤培养基调节至菌液OD600值=1.00±0.02,将菌液与SPC(0、MIC和2MIC)混合,37 ℃培养12 h后,离心弃去上清液,加入25 g/L戊二醛,混匀后避光保存12 h。PBS洗涤3次后,再依次使用体积分数25%、45%、65%、85%、95%和100%的乙醇进行洗脱,弃去上清液,在样品台上固定冻干后的样品,溅射镀金后用场发射扫描电镜观察细胞结构。
1.3 数据处理
所有试验组均平行测定3次,数据均以“平均值±标准偏差”形式表示。采用SPSS 26.0和Origin 2025对数据进行统计分析和绘图。
2 结果与分析
2.1 沙棘多酚压片糖果组分分析
2.1.1 离子色谱图分析
对质控样本的总离子流图(total ion chromatogram,TIC)进行叠加分析,以此验证代谢物提取和仪器检测是否具有良好的重现性。如图1所示,各质控样本色谱峰的保留时间与峰面积均重叠,结果表明本研究的代谢物提取与检测过程处于有效的质量控制之下,数据质量可靠。
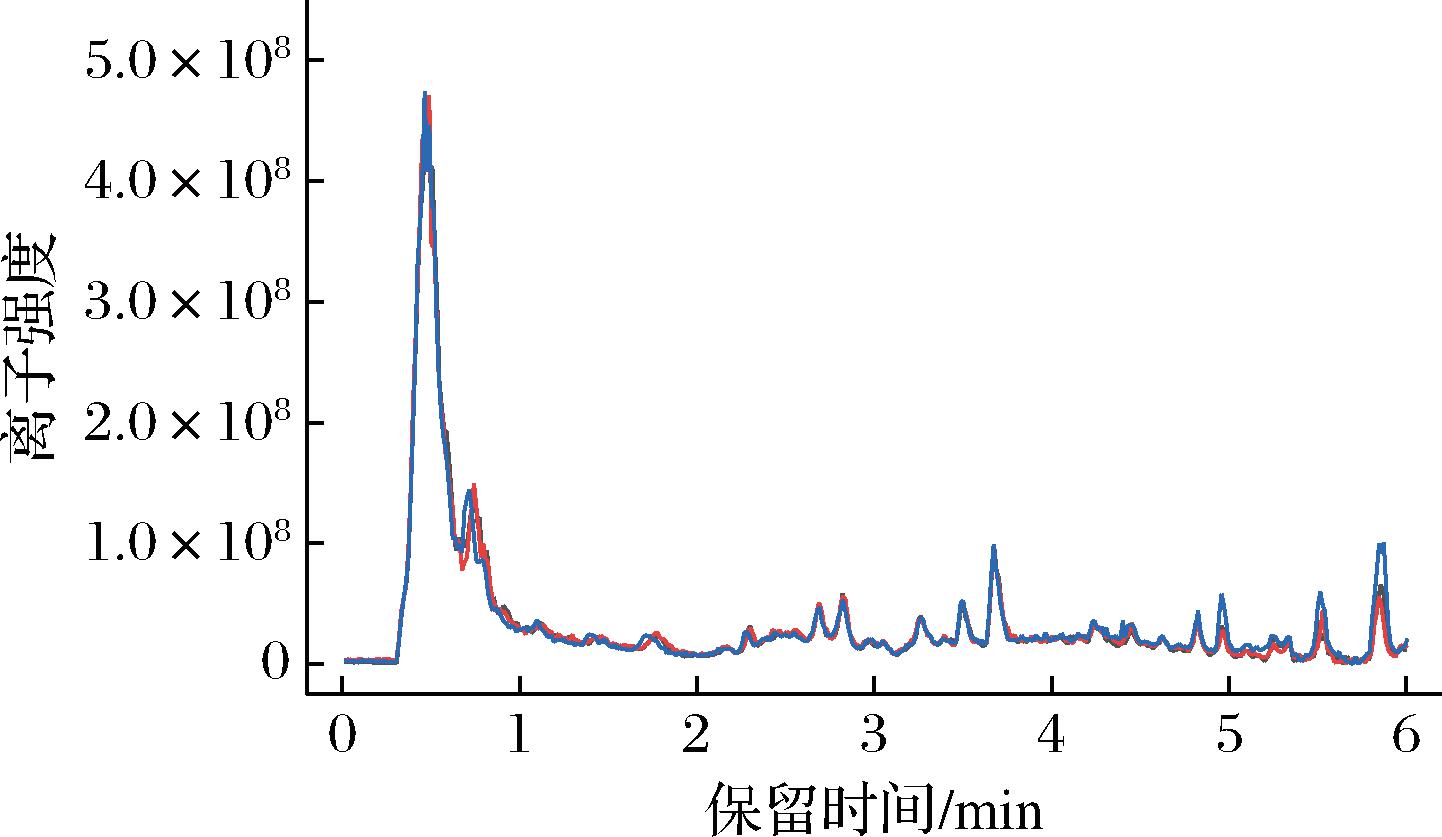
图1 负离子模式下质控样本的TIC
Fig.1 TIC of quality control sample in negative ion mode
2.1.2 沙棘多酚压片糖果主要多酚成分
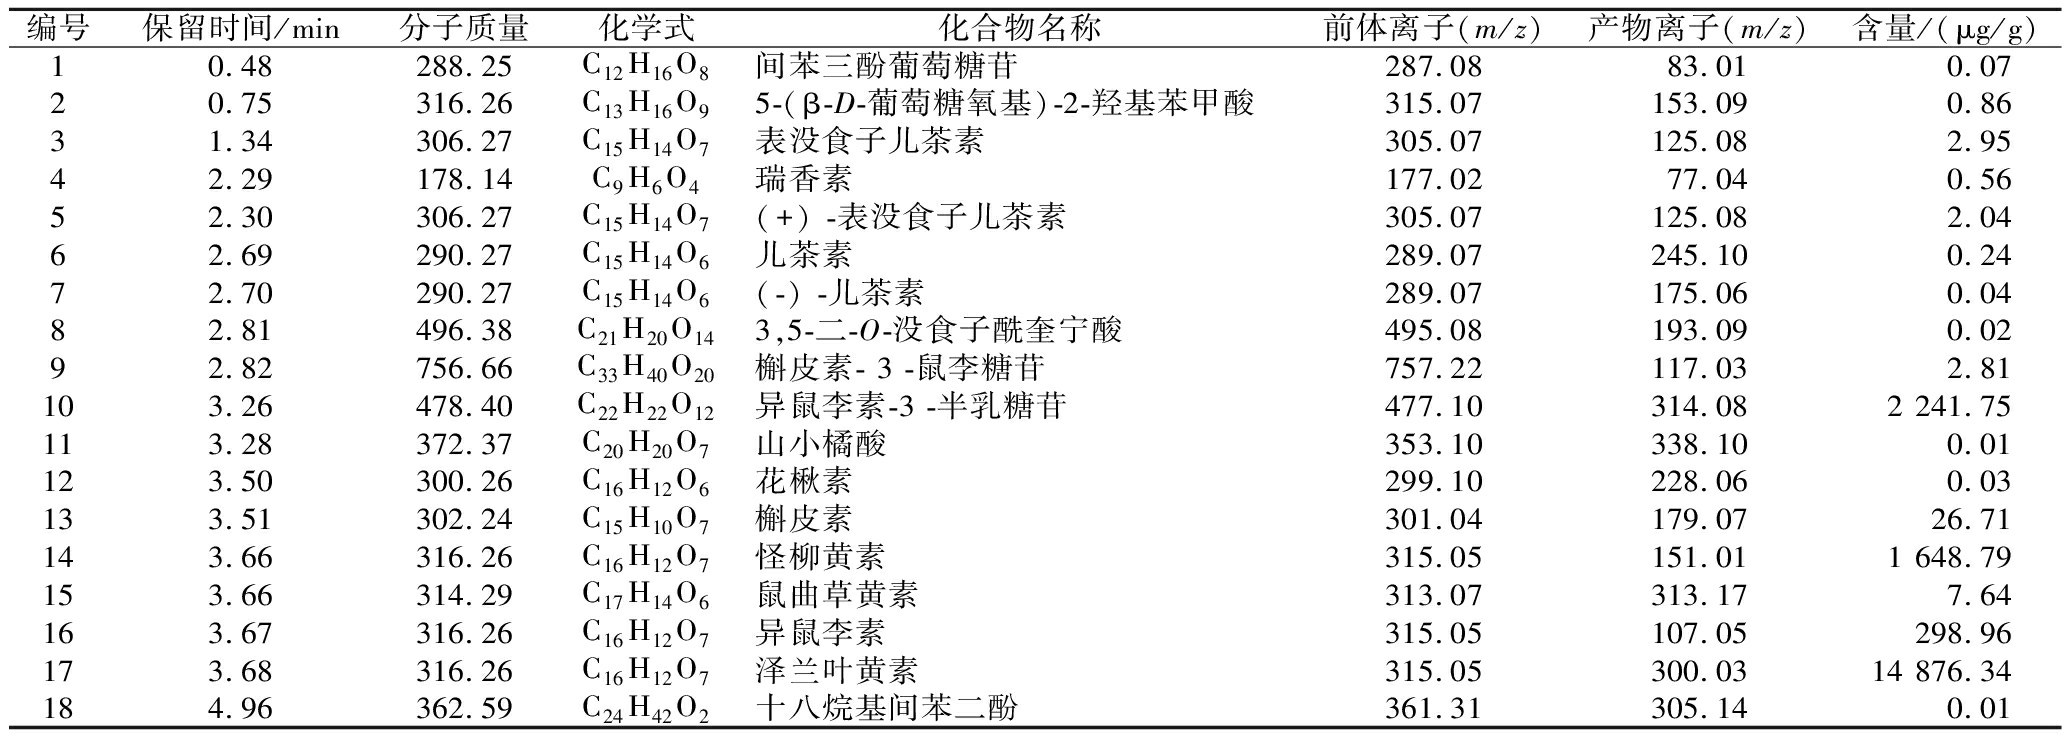
采用UPLC-MS/MS对沙棘多酚压片糖果进行成分分析,结合保留时间、准确定量的前体离子(m/z)及产物离子(m/z),辅以Biotree PDB v6.0数据库和文献数据比对,如表1和图2所示,共检测到18种主要多酚化合物,包括12种黄酮类、2种酚酸类、1种间苯三酚类、1种香豆素类、1种木脂素、1种芳香聚酮。其中泽兰叶黄素(14 876.34 μg/g)、异鼠李素-3-半乳糖苷(2 241.75 μg/g)、怪柳黄素(1 648.79 μg/g)和异鼠李素(298.98 μg/g)含量较高。
表1 沙棘多酚压片糖果主要成分定量结果
Table 1 Quantitative results of the major constituents in sea buckthorn polyphenol tablet candy
编号保留时间/min分子质量化学式化合物名称前体离子(m/z)产物离子(m/z)含量/(μg/g)10.48288.25C12H16O8间苯三酚葡萄糖苷287.0883.01 0.0720.75316.26C13H16O95-(β-D-葡萄糖氧基)-2-羟基苯甲酸315.07153.090.8631.34306.27C15H14O7表没食子儿茶素305.07125.082.9542.29178.14C9H6O4瑞香素177.0277.040.5652.30306.27C15H14O7(+) -表没食子儿茶素305.07125.082.0462.69290.27C15H14O6儿茶素289.07245.100.2472.70290.27C15H14O6(-) -儿茶素289.07175.060.0482.81496.38C21H20O143,5-二-O-没食子酰奎宁酸495.08193.090.0292.82756.66C33H40O20槲皮素- 3 -鼠李糖苷757.22117.032.81103.26478.40C22H22O12异鼠李素-3 -半乳糖苷477.10314.082 241.75113.28372.37C20H20O7山小橘酸353.10338.100.01123.50300.26C16H12O6花楸素299.10228.060.03133.51302.24C15H10O7槲皮素301.04179.0726.71143.66316.26C16H12O7怪柳黄素315.05151.011 648.79153.66314.29C17H14O6鼠曲草黄素313.07313.177.64163.67316.26C16H12O7异鼠李素315.05107.05298.96173.68316.26C16H12O7泽兰叶黄素315.05300.0314 876.34184.96362.59C24H42O2十八烷基间苯二酚361.31305.140.01
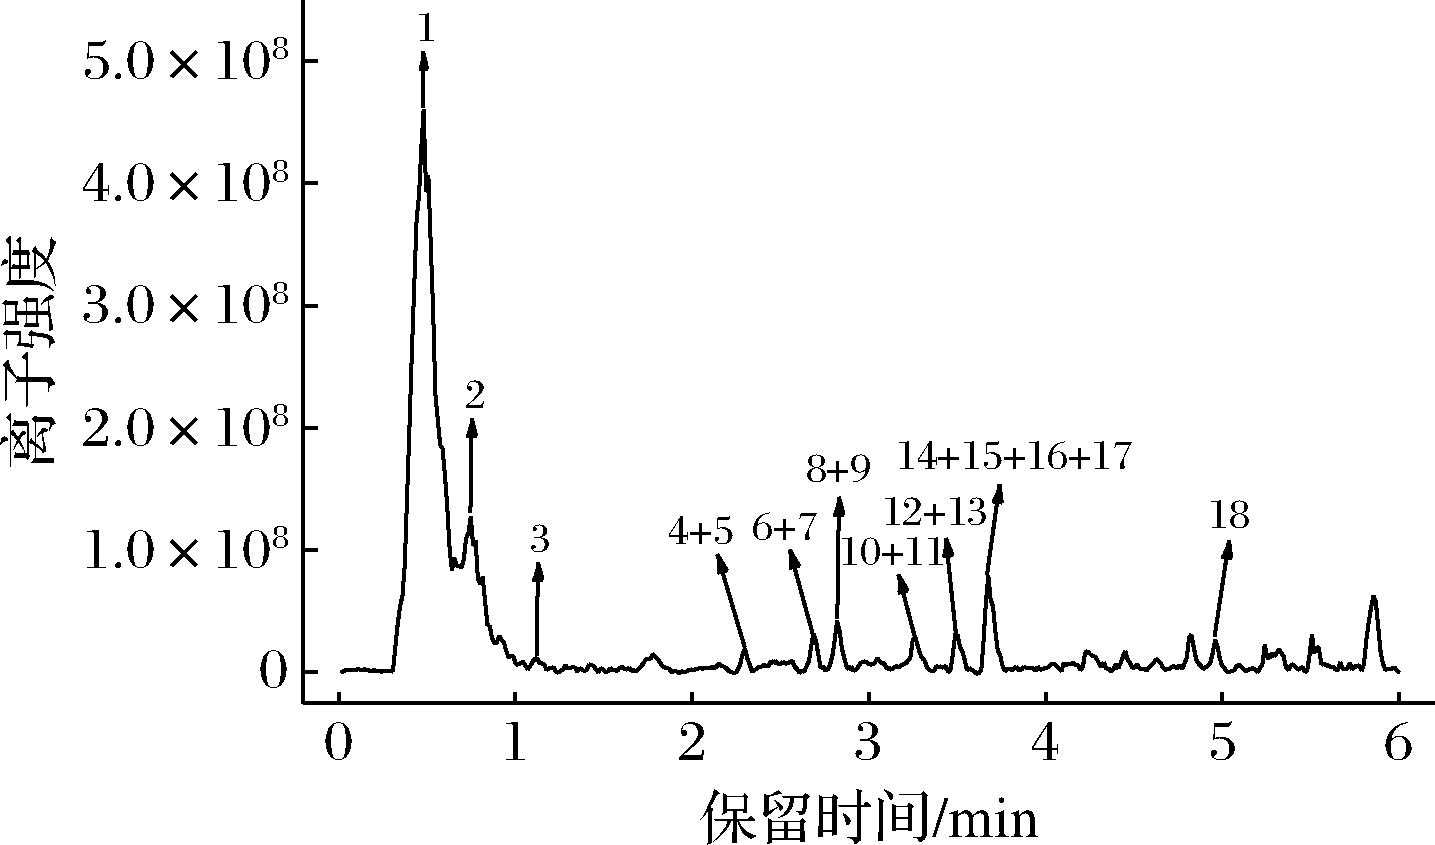
图2 沙棘多酚压片糖果在负离子模式下的TIC
Fig.2 TIC of the sea buckthorn polyphenol tablet candy in negative ion mode
注:图中编号同表1。
18种多酚化合物均具有抑菌能力,如Mayorga等[18]发现泽兰叶黄素可以抑制金黄色葡萄球菌、鼠伤寒沙门氏菌、肠炎沙门氏菌和大肠杆菌,其中对肠炎沙门氏菌抑菌效果最强,推测其抑菌作用与细胞膜完整性和通透性有关。Song等[19]发现怪柳黄素可以通过抑制金黄色葡萄球菌活性、降低小鼠肺组织负荷和炎症因子的浸润来有效保护小鼠免受金黄色葡萄球菌肺炎的侵害。异鼠李素[20]、槲皮素[21]、儿茶素[22]等物质则已被证明具有抑制H.pylori的能力。
2.2 沙棘多酚压片糖果对H.pylori的体外抑菌活性
2.2.1 沙棘多酚压片糖果对H.pylori MIC和MBC的测定
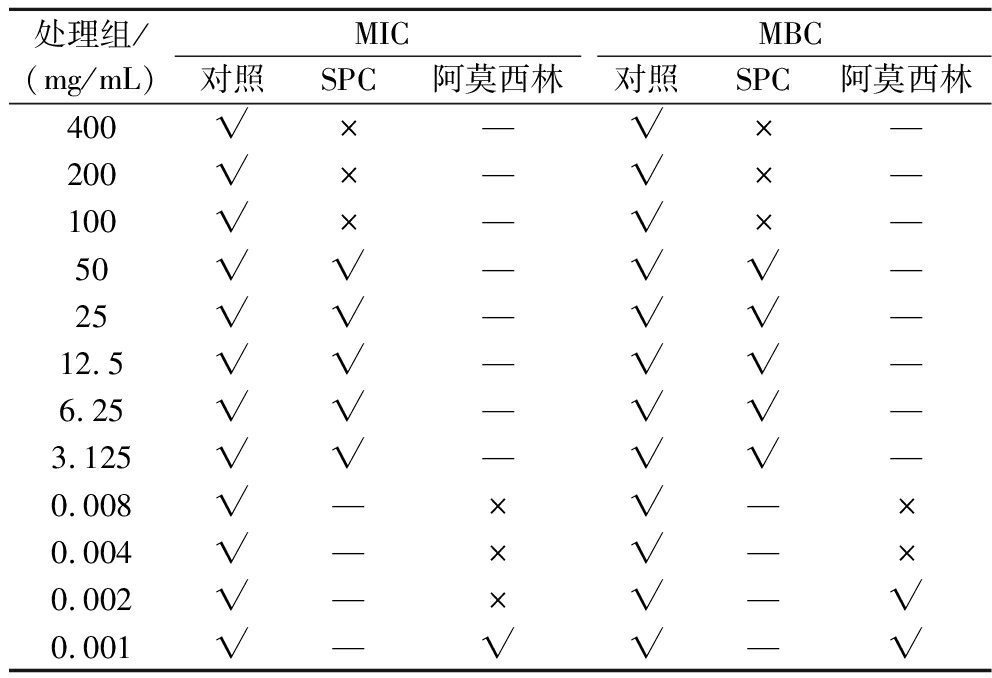
由表2可以看出,当SPC质量浓度≥100 mg/mL,阿莫西林质量浓度≥0.002 mg/mL时,无明显浑浊出现,说明没有H.pylori生长繁殖。添加p-碘硝基四唑紫溶液继续培养2 h后,SPC质量浓度≥100 mg/mL时无颜色变化,阿莫西林质量浓度≥0.004 mg/mL时也无明显颜色变化。由此可以确定SPC的MIC和MBC均为100 mg/mL,阿莫西林的MIC为0.002 mg/mL,MBC为0.004 mg/mL。
表2 SPC MIC和MBC的测定
Table 2 MIC and MBC determination of SPC
处理组/(mg/mL)MICMBC对照SPC阿莫西林对照SPC阿莫西林400√×—√×—200√×—√×—100√×—√×—50√√—√√—25√√—√√—12.5√√—√√—6.25√√—√√—3.125√√—√√—0.008√—×√—×0.004√—×√—×0.002√—×√—√0.001√—√√—√
注:“—”表示未进行相关浓度试验;MIC中“√”表示浑浊,“×”表示无浑浊;MBC中“√”表示有颜色变化,“×”表示无颜色变化。
2.2.2 沙棘多酚压片糖果对H.pylori生长的影响
由图3可见,随着SPC质量浓度的增加,H.pylori生长受到抑制的程度增加,1/4 MIC和1/2 MIC与对照组相比差异显著(P<0.05),说明低浓度的SPC对H.pylori生长也有抑制作用。当SPC浓度≥MIC时,H.pylori的OD600值低于初始菌浓度,说明48 h内H.pylori未能生长繁殖。阿莫西林(MIC)处理组菌浓度低于MIC下的SPC处理组,但高于2MIC和4MIC下的SPC处理组,表明均处于MIC浓度时,阿莫西林抑制H.pylori效果优于沙棘多酚压片糖果,但高浓度沙棘多酚压片糖果仍然具有显著的抑制H.pylori的能力。
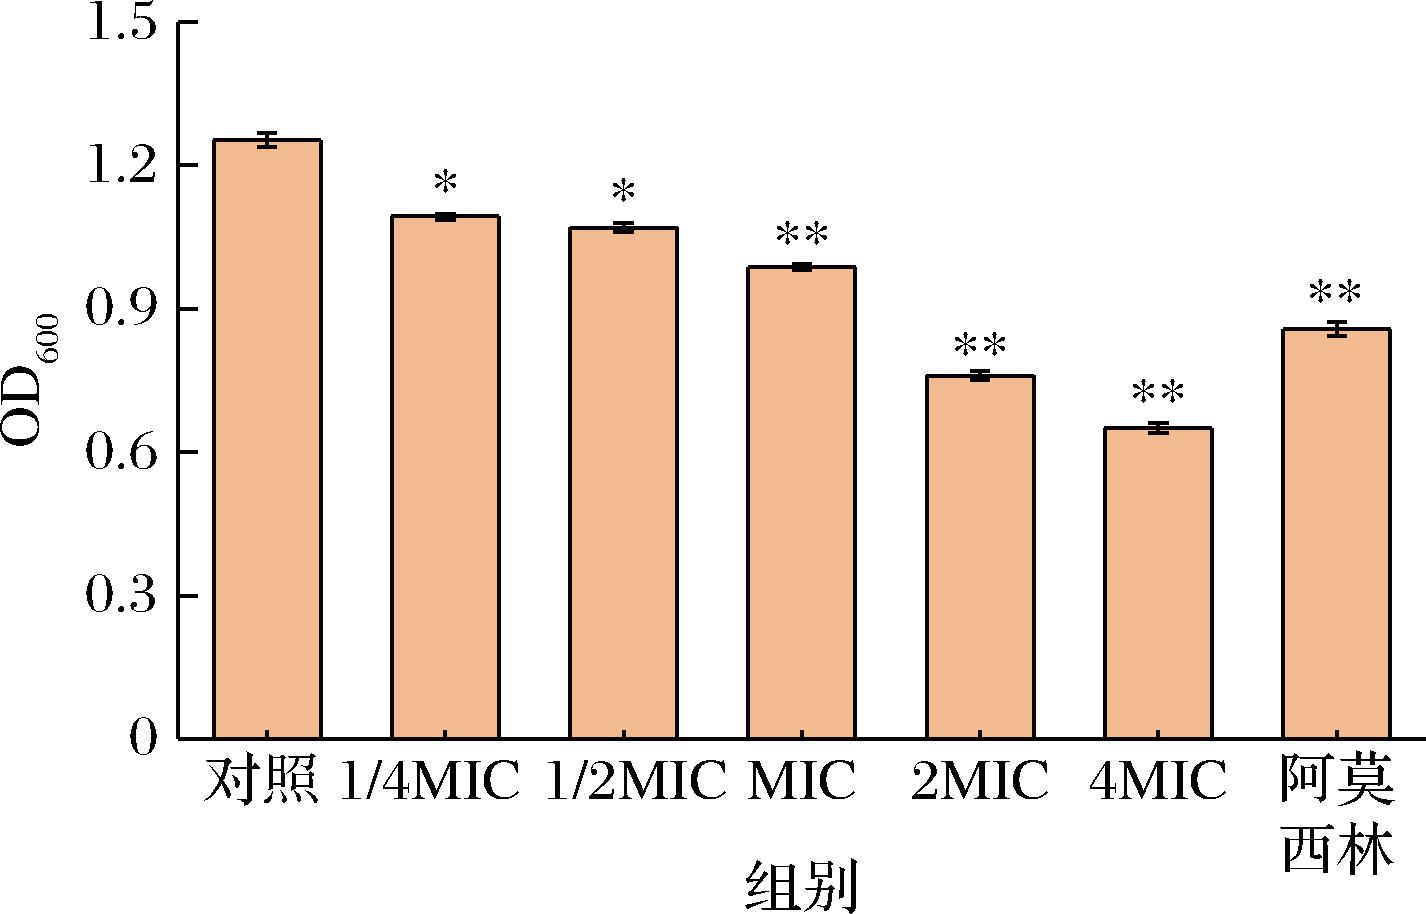
图3 SPC对H.pylori生长的影响
Fig.3 Effect of SPC on H.pylori growth
注:*表示处理组与对照组相比差异显著(P<0.05);**表示处理组与对照组相比差异极显著(P<0.01)(下同)。
2.3 沙棘多酚压片糖果对H.pylori的体外抑菌机制
2.3.1 沙棘多酚压片糖果对H.pylori细胞外膜渗透率的影响
N-苯基-1-萘胺是一种疏水性荧光探针,在完整细胞膜的限制下,探针无法有效嵌入;一旦膜结构因损伤而出现缺陷,探针便能渗透至磷脂双分子层内部,荧光强度增强,因此可以用来判断细菌细胞外膜通透性。
由图4可知,细胞内的荧光强度随着SPC浓度的增大而增大,各处理组荧光强度明显高于对照组(P<0.01)。与对照组相比,2 MIC处理组和4 MIC处理组荧光强度分别提高了1.26、1.31倍。说明SPC在高质量浓度下可以破坏H.pylori细菌膜,提高细胞外膜通透性。此结果与Yang等[23]对山奈酚抑制H.pylori机制探讨结果一致,均是通过增强细胞外膜通透性,进而达到抑制H.pylori的效果。
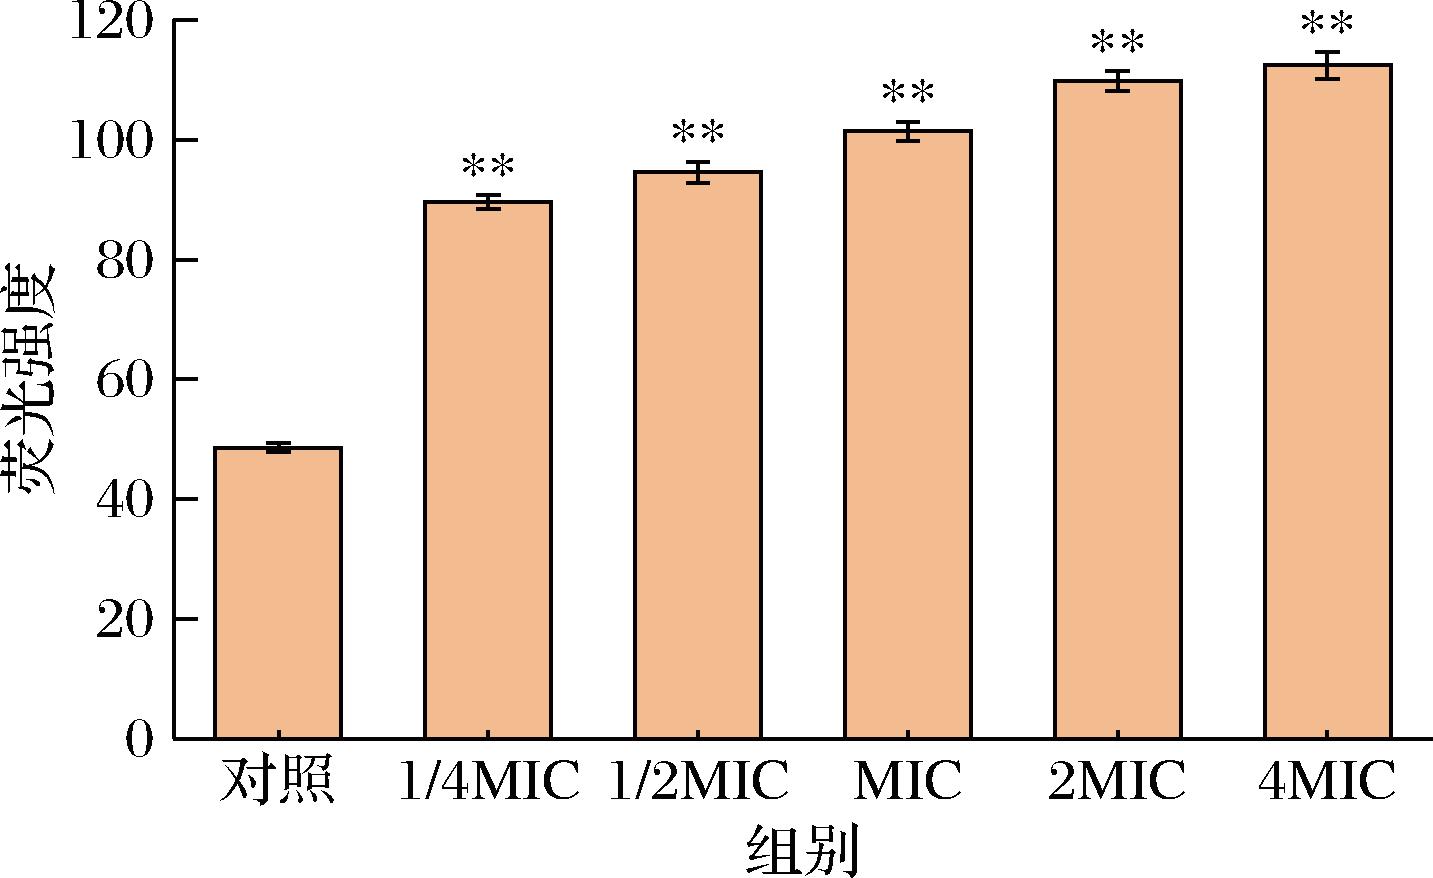
图4 SPC对H.pylori细胞外膜渗透率的影响
Fig.4 Effect of SPC on outer membrane permeability of H.pylori
2.3.2 沙棘多酚压片糖果对H.pylori细胞膜完整性的影响
细胞膜完整性是细菌正常生长繁殖的关键,核酸是细胞遗传信息的携带者,蛋白质则执行几乎细胞所有的生理功能,当细胞膜完整性受到损害时,核酸和蛋白质等物质就会从膜内泄漏到细胞膜外。通过对细胞核酸(260 nm)和蛋白质(280 nm)泄漏量进行测定,从而间接评估沙棘多酚压片糖果对H.pylori细胞膜完整性的影响。
由图5可看出,随着SPC处理组质量浓度的增大,核酸(图5-a)和蛋白质(图5-b)的泄露程度均逐渐增大。当SPC浓度为1/4MIC时,与对照组相比H.pylori核酸泄露量增加并不明显(P>0.05),但当质量浓度为1/2MIC及以上时,H.pylori核酸泄露明显严重(P<0.01)。同时,与对照相比,当SPC浓度为1/4MIC及以上时,H.pylori蛋白质泄露均严重(P<0.01),当SPC浓度为4MIC时,H. pylori核酸和蛋白质泄露分别增加了15%和18%。结果表明,高质量浓度的SPC处理会破坏H.pylori的细胞膜完整性,导致细胞内的蛋白质和核酸等大分子流失,直接造成胞内渗透压失衡和代谢功能障碍,最终导致细胞裂解死亡。此结果与Qi等[24]发现相似,即原儿茶醛能够破坏环脂芽孢杆菌属的细胞膜完整性,导致细胞内电解质、蛋白质、乳酸脱氢酶和活性氧泄露,从而导致细胞死亡。
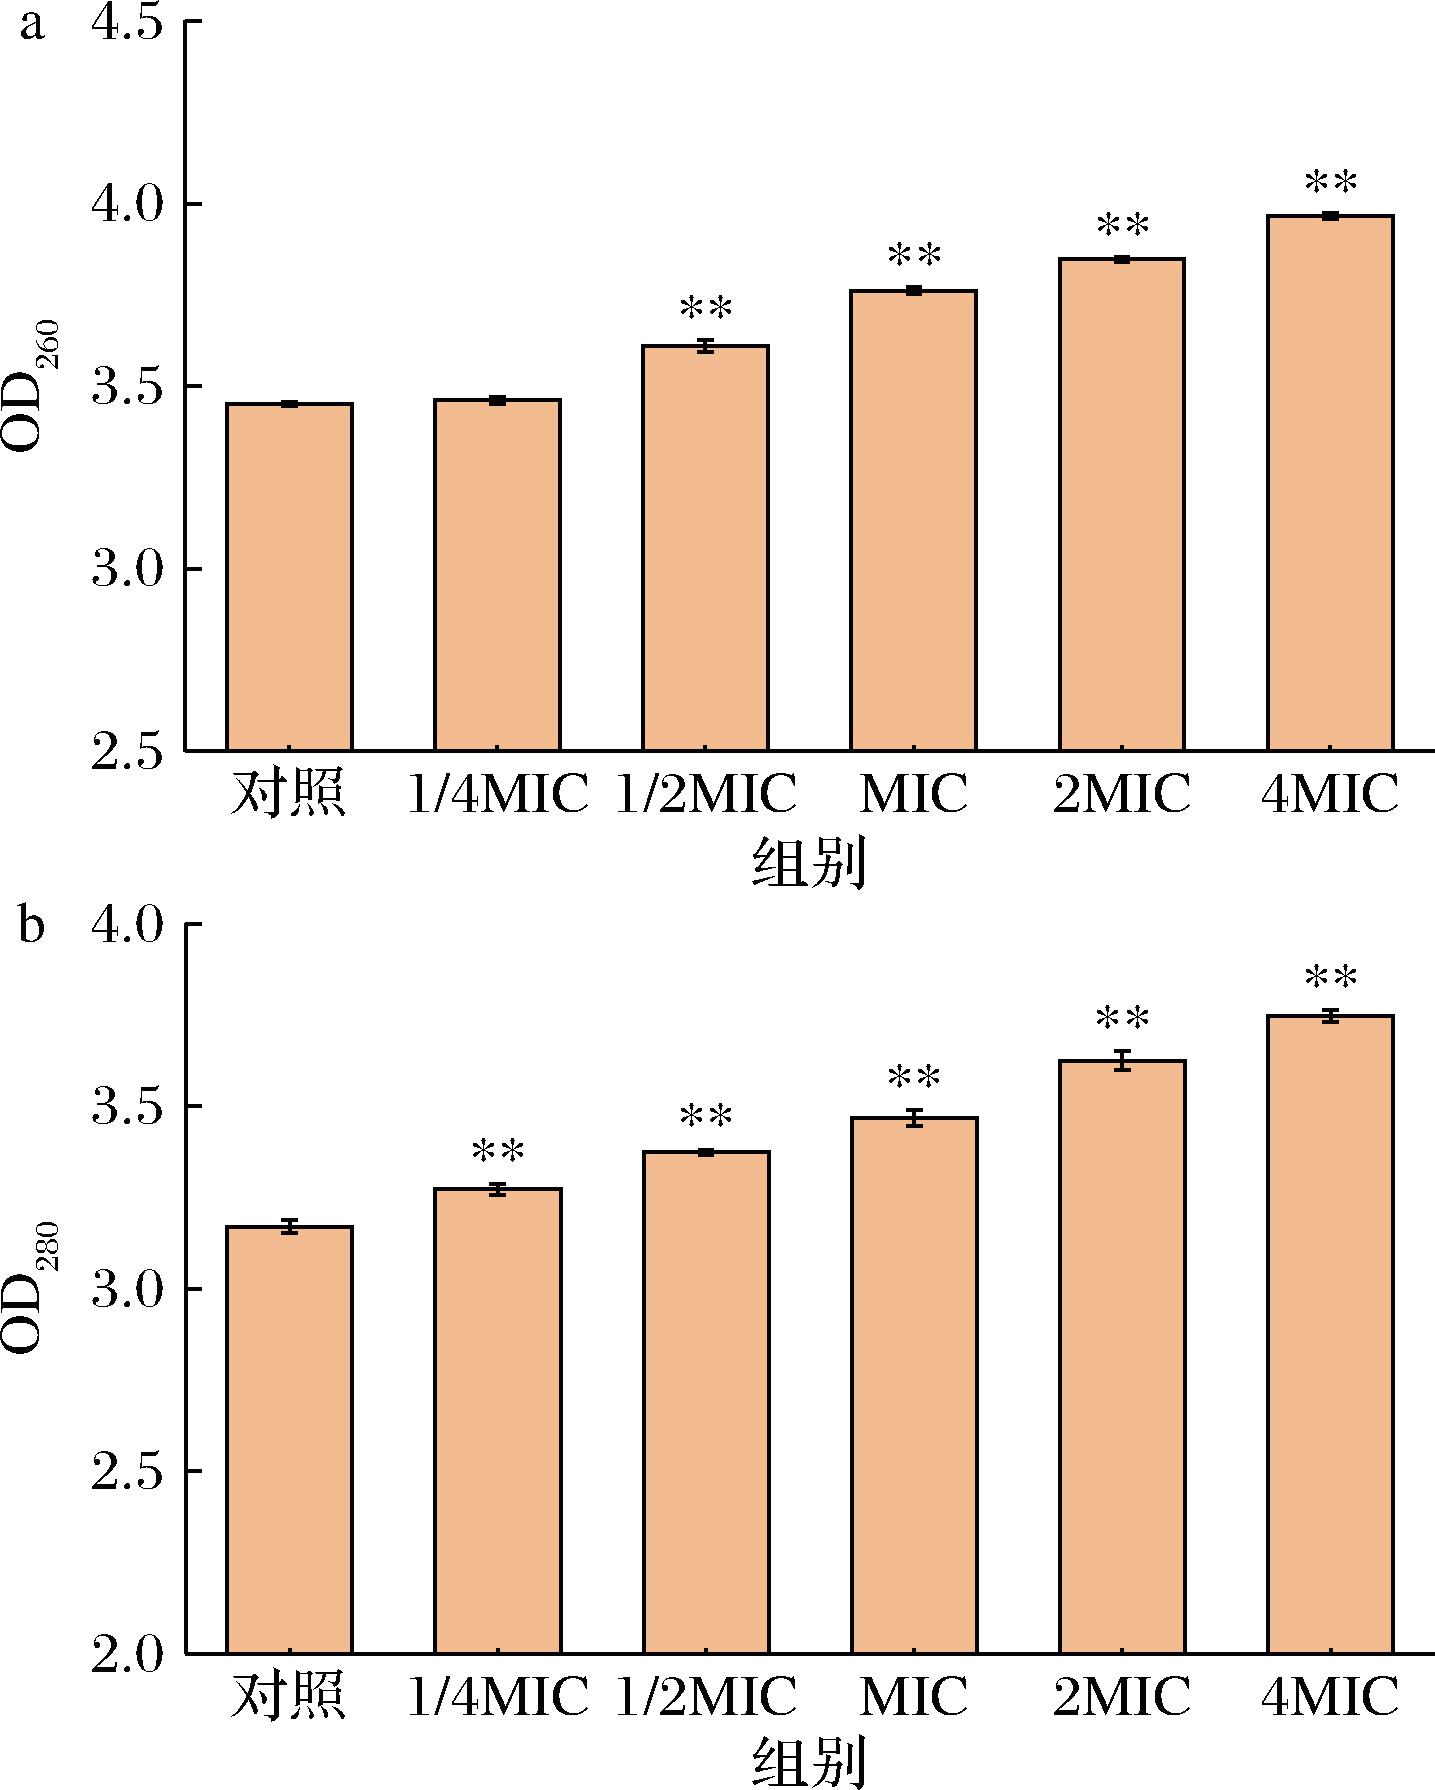
a-细胞内核酸泄露;b-细胞内蛋白质泄露
图5 SPC对H.pylori细胞内容物泄露的影响
Fig.5 Effect of SPC on cell content leakage of H.pylori

a-KI对色氨酸荧光光谱的影响;b-KI对酪氨酸荧光光谱的影响;c-SPC对色氨酸荧光光谱的影响;d-SPC对酪氨酸荧光光谱的影响
图6 SPC对H.pylori膜蛋白氨基酸残基荧光光谱的影响
Fig.6 Effect of SPC on fluorescence intensity of the H.pylori membrane protein at λem 280 and 296 nm
2.3.3 沙棘多酚压片糖果对H.pylori膜蛋白的影响
利用色氨酸和酪氨酸残基的荧光对微环境极性敏感这一特性,可间接探测膜蛋白的构象状态,KI是一种仅可以猝灭膜表面蛋白残基荧光的荧光猝灭剂[25]。
图6-a和图6-b为KI荧光猝灭实验的荧光光谱图,结果表明在固定激发波长280 nm和296 nm下,色氨酸与酪氨酸残基的荧光未被明显猝灭,据此推断它们主要位于膜的内部。图6-c和图6-d结果表明,在SPC处理下,相同激发条件所获得的荧光光谱中,2种残基的最大荧光发射强度随SPC质量浓度增加而降低。以上结果说明SPC破坏了H.pylori的细胞膜结构,增强了膜的通透性,致使原本被限制在膜外的荧光猝灭剂KI进入膜内部,进而猝灭了位于膜蛋白疏水区的色氨酸与酪氨酸残基的荧光。由此可以说明SPC是通过改变膜构象与完整性,增大其通透性,最终引发细胞膜功能障碍,从而达到抑菌效果。该结果与Peng等[26]发现油茶壳多酚破坏李斯特菌膜结构作用机制相同。
2.3.4 沙棘多酚压片糖果对H.pylori脲酶活性的影响
脲酶是H.pylori在胃酸环境中存活的关键酶,能分解尿素产生氨,中和胃酸[14]。由图7可见,随着SPC处理组质量浓度的增大,H.pylori的脲酶活性呈现下降的趋势。当SPC质量浓度达到MIC时,与对照组相比脲酶活性降低到32.25%。当质量浓度为4MIC时,脲酶活性降低了81.83%。这些结果表明SPC能够很好的抑制H.pylori的脲酶活性,进而达到抑菌效果。这与Lu等[27]发现葡萄中天然多酚白皮杉醇通过抑制脲酶活性进而抑制H.pylori结果一致。
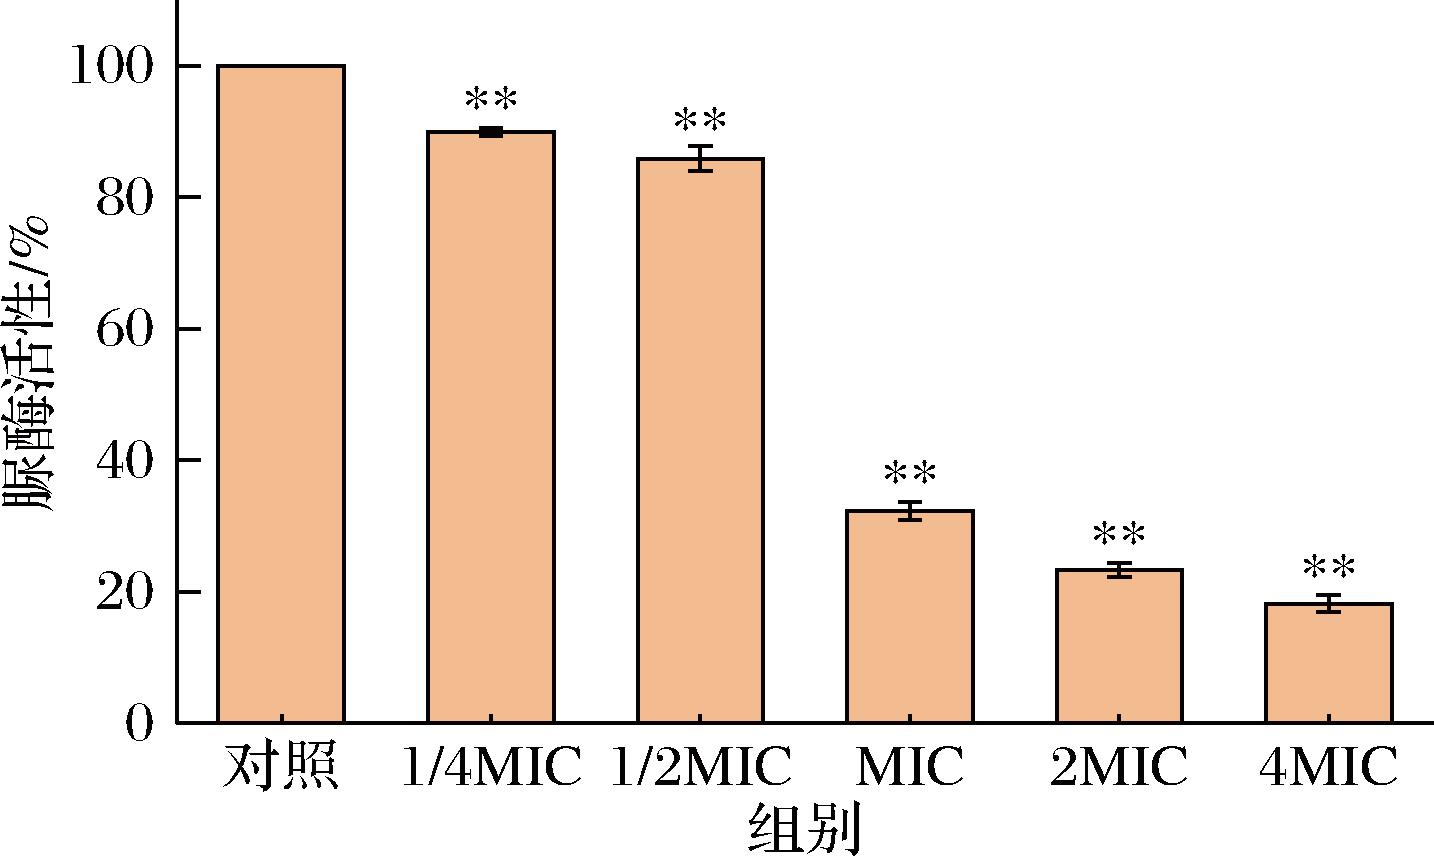
图7 SPC对H.pylori脲酶活性的影响
Fig.7 Effect of SPC on the urease activity of H.pylori
2.3.5 沙棘多酚压片糖果对细胞结构的影响
如图8-a所示,对照组培养12 h的H.pylori细胞呈完整杆状,边缘清晰。然而,经质量浓度MIC的SPC处理12 h后(图8-b),H.pylori细胞出现轻微皱缩,部分出现裂解现象,且表面黏附少量颗粒。经质量浓度为2MIC的SPC处理12 h后(图8-c),H.pylori细胞形态被完全破坏,多数菌体裂解死亡,这与Luo等[28]研究结果类似。结果表明,SPC可以抑制H.pylori生长,改变其细胞形态和结构,最终杀死细胞。
a-对照组;b-SPC MIC处理组;c-SPC 2MIC处理组
图8 SPC处理下H.pylori形态的扫描电镜观察
Fig.8 Representative SEM images of H.pylori incubated with SPC
3 结论
本研究表明沙棘多酚压片糖果中的主要多酚物质是泽兰叶黄素、异鼠李素-3-半乳糖苷、怪柳黄素、异鼠李素和槲皮素等,并表现出较强的抗H.pylori能力。其抑菌作用归因于增加膜渗透性、破坏膜完整性、改变膜蛋白结构、抑制脲酶活性及改变细胞形态等多重机制。沙棘多酚压片糖果在体外对H.pylori具有明确的抑制作用,可作为一款具有辅助调节H.pylori感染相关健康问题的功能性产品,具备良好的开发与应用价值。然而,该抑菌效果是源于多酚的协同作用还是单一成分(如泽兰叶黄素)的高抑菌效果,尚需进一步分离验证。同时,本研究结论源于体外实验,后续需通过动物模型实验进一步评估其体内抑菌效果及安全性,以全面评价其应用潜力。
[1] Gisbert J P.Helicobacter pylori and gastric disease[J].Medicina Clínica, 2025, 165(1):106974.
[2] Gong J W, Wang Q, Chen X, et al.Helicobacter pylori vaccine:Mechanism of pathogenesis, immune evasion and analysis of vaccine types[J].Vaccines, 2025, 13(5):526.
[3] Sadeghloo Z, Fatemi N, Raeisi H, et al.Coccoid H.pylori:A key driver of recurrent infections and a target for novel therapies[J].Virulence, 2025, 16(1):2566964.
[4] Subsomwong P, Asano K, Akada J, et al.Proteomic profiling of extracellular vesicles reveals potential biomarkers for Helicobacter pylori infection and gastric cancer[J].Helicobacter, 2025, 30(2):e70022.
[5] 梁家瑞, 温明赫, 陈玮萱, 等.益生菌及后生元对胃部幽门螺杆菌感染的改善作用[J].现代食品科技, 2025, 41(7):101-108.Liang J R, Wen M H, Chen W X, et al.Efficacy of probiotics and postbiotics in alleviating Helicobacter pylori infection of the stomach[J].Modern Food Science and Technology, 2025, 41(7):101-108.
[6] 王泉鑫, 苗正飞, 高翔, 等.抗幽门螺旋杆菌黏附活性玉米蛋白水解物的制备及其理化性质分析[J].食品工业科技, 2025, 46(14):224-233.Wang Q X, Miao Z F, Gao X, et al.Preparation and physicochemical properties of corn protein hydrolysates with anti-adhesive activity against Helicobacter pylori[J].Science and Technology of Food Industry, 2025, 46(14):224-233.
[7] Chen B R, Li W M, Li T L, et al.Fucoidan from Sargassum hemiphyllum inhibits infection and inflammation of Helicobacter pylori[J].Scientific Reports, 2022, 12:429.
[8] Thacharoen C, Inkaewwong T, Jumpathong W, et al.Metabolomic profiling and anti-Helicobacter pylori activity of Caulerpa lentillifera (sea grape) extract[J].Marine Drugs, 2025, 23(7):282.
[9] 刘晓凤, 李楠艺, 张嘉宁, 等.沙棘黄酮的提纯及生物活性研究进展[J].食品与发酵工业, 2025, 51(13):392-399.Liu X F, Li N Y, Zhang J N, et al.Research progress on extraction, purification, and bioactivity of sea buckthorn flavonoids[J].Food and Fermentation Industries, 2025, 51(13):392-399.
[10] Zhu P Y, Ren Y M, Wei C Q, et al.Compounds from sea buckthorn and their application in food:A review[J].Food Chemistry, 2025, 476:143428.
[11] 文静, 赵馨馨, 张琴, 等.沙棘黄酮超声复合酶法提取工艺及抗氧化活性、稳定性研究[J].中国调味品, 2025, 50(9):227-234.Wen J, Zhao X X, Zhang Q, et al.Study on extraction process of flavonoids from sea buckthorn by ultrasonic composite enzyme method and their antioxidant activity and stability[J].China Condiment, 2025, 50(9):227-234.
[12] Schubertov S, Krepsov Z, Janotkov L, L, et al.Exploitation of sea buckthorn fruit for novel fermented foods production:A review[J].Processes, 2021, 9(5):749.
[13] 常应九, 高庆超, 曹效海, 等.沙棘活性成分及其对胃肠微生物影响的研究进展[J].包装工程, 2019, 40(21):15-22.Chang Y J, Gao Q C, Cao X H, et al.Advances in research on active ingredients of Hippophae rhamnoides Linn.and their effects on gastrointestinal microorganisms[J].Packaging Engineering, 2019, 40(21):15-22.
[14] 刘欣, 常应九, 王树林, 等.沙棘提取物对幽门螺杆菌脲酶活性的抑制[J].食品与发酵工业, 2022, 48(3):85-91.Liu X, Chang Y J, Wang S L, et al.Inhibition of Hippophae rhamnoides extracts on urease activity of Helicobacter pylori[J].Food and Fermentation Industries, 2022, 48(3):85-91.
[15] 谢坤豪, 代爽, 席康博, 等.沙棘多酚类儿茶素化合物体外抑制幽门螺旋杆菌的效果及机理研究[J].食品与发酵工业, 2025, 51(8):112-118.Xie K H, Dai S, Xi K B, et al.Effects and mechanisms of inhibition on Helicobacter pylori by polyphenolic catechin from sea buckthorn in vitro[J].Food and Fermentation Industries, 2025, 51(8):112-118.
[16] 马贺, 雷梅英, 王家娟, 等.沙棘乙酸乙酯萃取物化学成分分析及体外抑制幽门螺杆菌机理研究[J].食品与发酵工业, 2024, 50(5):59-66.Ma H, Lei M Y, Wang J J, et al.Mechanism of chemical components and anti-Helicobacter pylori sea buckthorn berries extract in vitro[J].Food and Fermentation Industries, 2024, 50(5):59-66.
[17] Gao Q C, Ma Y W, Liu H C, et al.A potential anti-Helicobacter pylori strategy:Exploring the antibacterial mechanism of organic acids in sea buckthorn (Hippophae rhamnoides L.)[J].Microbiological Research, 2025, 296:128133.
[18] Santos Mayorga O A, da Costa Y F G, da Silva J B, et al.Kalanchoe brasiliensis Cambess., a promising natural source of antioxidant and antibiotic agents against multidrug-resistant pathogens for the treatment of Salmonella gastroenteritis[J].Oxidative Medicine and Cellular Longevity, 2019, 2019(1):9245951.
[19] Song W, Wang B M, Sui L Y, et al.Tamarixetin attenuated the virulence of Staphylococcus aureus by directly targeting caseinolytic protease P[J].Journal of Natural Products, 2022, 85(8):1936-1944.
[20] Ustün O, Ozçelik B, Akyön Y, et al.Flavonoids with anti-Helicobacter pylori activity from Cistus laurifolius leaves[J].Journal of Ethnopharmacology, 2006, 108(3):457-461.
[21] Zhang S, Huang J, Xie X Q, et al.Quercetin from Polygonum capitatum protects against gastric inflammation and apoptosis associated with Helicobacter pylori infection by affecting the levels of p38MAPK, BCL-2 and BAX[J].Molecules, 2017, 22(5):744.
[22] Silvan J M, Gutiérrez-Docio A, Moreno-Fernandez S, et al.Procyanidin-rich extract from grape seeds as a putative tool against Helicobacter pylori[J].Foods, 2020, 9(10):1370.
[23] Yang R J, Li J J, Wang J R, et al.Kaempferol inhibits the growth of Helicobacter pylori in a manner distinct from antibiotics[J].Journal of Food Biochemistry, 2022, 46(9):e14210.
[24] Qi J R, Xu H, Wu X D, et al.Antimicrobial activity and mechanism of protocatechualdehyde against Alicyclobacillus spp.and its effect on apple juice physicochemical properties[J].Food Control, 2025, 175:111289.
[25] Li L, Song X, Yin Z Q, et al.The antibacterial activity and action mechanism of emodin from Polygonum cuspidatum against Haemophilus parasuis in vitro[J].Microbiological Research, 2016, 186:139-145.
[26] Peng J M, Chen G W, Guo S X, et al.Antibacterial activity of Camellia oleifera shells polyphenols against Listeria monocytogenes and its application for preserving sea bass during cold storage[J].LWT, 2025, 219:117562.
[27] Lu Q, Xie Y H, Wang X F, et al.Piceatannol, a natural polyphenol from grape, inhibits Helicobacter pylori through targeted suppression of its secreted urease[J].Food Science &Nutrition, 2025, 13(9):e70932.
[28] Luo S H, Pan M L, Xu Y H, et al.Edible rose (Rosa rugosa cv.‘Plena’) aqueous extract, a potential antibacterial agent against multidrug-resistant Helicobacter pylori with anticancer activities[J].Journal of Functional Foods, 2025, 130:106902.