在全球气候变暖的背景下,温暖产区葡萄原料酸度不足的问题日益凸显,这不仅增加了有害微生物滋生引发腐败的风险,还会导致葡萄酒口感平淡、风味品质下降[1-2]。为缓解葡萄酸度偏低带来的产业挑战,添加有机酸(尤其是酒石酸)的化学增酸方法已被广泛应用[3],但该方法仅能实现对酸度的暂时改善,且化学增酸法的实施也受国际葡萄与葡萄酒组织的相关条例及各国葡萄酒生产法规的严格约束[4]。因此,筛选兼具增酸能力、优良发酵性能及正向风味贡献的微生物,成为解决葡萄酒酸度不足问题的替代方案。
耐热拉钱斯氏酵母(Lachancea thermotolerans)因其具有将糖类物质转化为乳酸的能力,成为热门生物增酸菌种[5-6]。该酵母的乳酸产量受菌株来源[7]、接种量[8]及接种方式[9]等多种因素影响。为实现理想的增酸效果,以往研究主要聚焦于耐热拉钱斯氏酵母与酿酒酵母(Saccharomyces cerevisiae)接续发酵的时间间隔对乳酸产量的影响[8-11]。然而,接续发酵需2次接种酵母,增加了实际生产中操作的复杂度和管控要求。因此,研发配比合理的混合增酸发酵剂,成为推动生物增酸技术落地生产的关键途径。
本研究以全球种植面积最广的红葡萄品种赤霞珠为材料,利用本土耐热拉钱斯氏酵母与酿酒酵母制备的混合增酸发酵剂开展中试发酵,对比分析不同混合发酵剂处理下发酵过程中的酵母菌群动态演替规律,以及成品酒的基本理化指标、挥发性化合物与感官品质。通过双因素方差分析和正交偏最小二乘判别分析(orthogonal partial least squares discriminant analysis,OPLS-DA),量化菌株组成与配比对葡萄酒品质的影响程度,旨在揭示混合增酸发酵剂配制要素与葡萄酒风味的内在关联,为混合增酸发酵剂的研发与产业化应用提供科学依据和理论支撑。
1 材料与方法
1.1 材料与试剂
1.1.1 葡萄原料
赤霞珠葡萄种植于新疆石河子产区(86.1 °E,44.2 °N),采摘时间为2024年9月25日,果粒新鲜,无霉烂果。葡萄除梗破碎并进行均质化后检测基本理化指标,数据如下:还原糖含量(239.0±4.5) g/L,可滴定酸含量(以酒石酸计)(3.82±0.23) g/L,pH 3.92±0.09,游离SO2含量(28.2±8.6) mg/L。
1.1.2 菌株来源
耐热拉钱斯氏酵母A38,西北农林科技大学葡萄酒学院;酿酒酵母CECA、NX16,安琪酵母股份有限公司。
1.1.3 试剂
Wallerstein实验室营养培养基、酵母浸粉、蛋白胨、葡萄糖,北京奥博星生物技术有限责任公司;NaCl(分析纯)、甘油(分析纯),天津市恒兴化学试剂制造有限公司;氯霉素,北京博奥拓达科技有限公司;偏亚硫酸钾,意大利Enartis公司;香气标准品(色谱纯),上海Sigma-Aldrich公司。
1.2 仪器与设备
PHBJ-260型pH计,上海雷磁仪器厂;Trace 1610-ISO7610 气相色谱-质谱联用仪,美国Thermo Fisher公司。
1.3 实验方法
1.3.1 混合增酸发酵剂配制方法
将各酵母菌株分别制备成活性干酵母粉,再按配制比例称量活性干酵母粉(表1),混匀后备用。
表1 混合增酸发酵剂的配制比例
Table 1 The formulation proportion of mixed acidifying starter culture
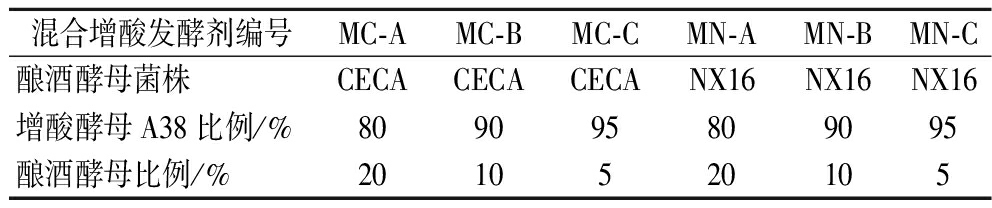
混合增酸发酵剂编号MC-AMC-BMC-CMN-AMN-BMN-C酿酒酵母菌株CECACECACECANX16NX16NX16增酸酵母A38比例/%809095809095酿酒酵母比例/%2010520105
1.3.2 发酵方法及进程监控
在除梗破碎的过程中,添加偏亚硫酸钾使葡萄醪中游离SO2质量浓度达到约30 mg/L。分别向6个洁净的50 L发酵罐中加入35 L葡萄醪,搅拌均匀后检测其基础理化指标。待葡萄醪温度回升至15 ℃后,向各发酵罐中添加200 mg/L(约2×107 CFU/mL)不同的混合增酸发酵剂。发酵过程中,每24 h取汁检测1次比重,持续监测至残糖含量低于4 g/L。
1.3.3 酵母菌群动态演替分析
在接种混合增酸发酵剂后,每24 h取发酵样品制备稀释梯度为10-2~10-6的稀释液,取100 μL各梯度稀释液分别涂布于含100 mg/L氯霉素的Wallerstein实验室营养琼脂平板。28 ℃培养5 d后,选择菌落数量适宜的平板(30~300 CFU)进行菌落形态的初步分类及计数。从每个形态中选取3株代表性酵母菌株,采用石英砂破壁法[12]提取其DNA,对其26S rDNA D1/D2区进行PCR扩增后,交由擎科生物科技有限公司测序鉴定。测序结果提交至NCBI GenBank数据库,与已知序列进行BLAST同源性比对。基于平板计数结果,计算发酵过程中不同种属酵母的相对丰度。
1.3.4 基本理化指标检测
还原糖、总酸、pH、挥发酸、游离SO2按照GB/T 15038—2006《葡萄酒、果酒通用分析方法(含第1号修改单)》进行检测,酒精度参照GB 5009.225—2023《食品安全国家标准 酒和食用酒精中乙醇浓度的测定》进行检测,所有指标测定3次。
1.3.5 挥发性化合物检测与分析
参考庞红勋等[13]使用顶空固相微萃取-气相色谱-质谱联用法对葡萄酒中的挥发性化合物进行测定。采用气味活性值(odor activity value,OAV)评估挥发性化合物对葡萄酒香气轮廓的贡献,OAV为葡萄酒中挥发性化合物的含量与其在葡萄酒中气味阈值的比值。挥发性化合物的嗅觉特性及气味阈值参考已有研究数据确定[13-16]。
1.3.6 感官品评
品评团队由15名经专业葡萄酒品鉴培训的人员组成(男生7人,女生8人),采用评估适合项目(rate-all-that-apply,RATA)法开展葡萄酒品质感官评估[17]。品评团队需结合酒样特征,并参考ISO 11035:1994《葡萄酒感官分析标准》和专业品鉴术语,筛选感官属性词汇池,构建精准的品评风味轮。正式品评时,品评员需先判断样品是否具备各感官属性并勾选对应选项,再对勾选属性进行强度评分;评分采用五分制评分体系,分数越高表示属性强度越大。每个样品的品鉴限时8 min,品评员完成1个样品品鉴后需间隔2 min,再进行下一样品的评估。利用几何平均值评估每个葡萄酒感官属性的强度,几何平均值计算如公式(1)所示:
几何平均值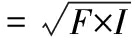
(1)
式中:F,描述词出现次数占总数的百分比;I,描述词强度占最大强度的百分比。
1.4 数据分析
数据整理分析和品评风味轮绘制由Excel 2022软件完成,方差分析由SPSS 17.0软件完成,OPLS-DA由SIMCA 14.0软件完成;所有点线图、散点图、柱状图和相对丰度图均由Origin 2023软件绘制。
2 结果与分析
2.1 发酵动力学
发酵比重监测数据显示,尽管所有发酵体系均在第11天完成发酵进程,但在混合发酵剂配比相同时,含酿酒酵母CECA的发酵剂(MC)比重下降时间早于含NX16的发酵剂(MN),发酵启动效率更高。在相同的酵母组成体系中,酿酒酵母比例与发酵速率呈现明显正相关,酿酒酵母占比20%的混合增酸发酵剂(MC-A、MN-A)比占比5%的发酵剂(MC-C、MN-C)到达发酵中期(比重1.050)的时间提前约0.5~1 d(图1)。
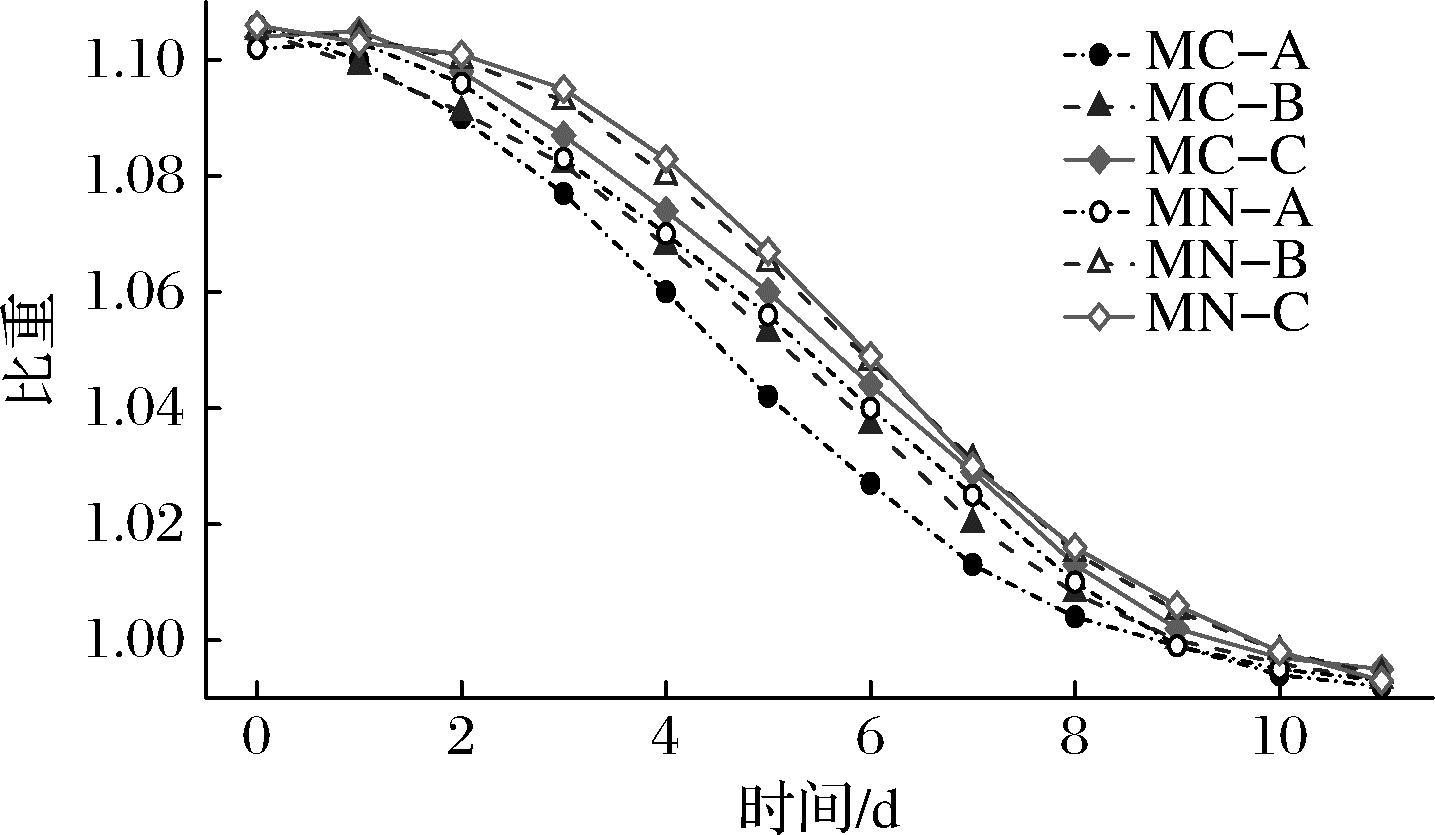
图1 不同混合增酸发酵剂的发酵动力学
Fig.1 Kinetics of fermentations across various mixed acidifying starter cultures
2.2 酵母群落数量和相对丰度
酵母群落主要由耐热拉钱斯氏酵母和酿酒酵母组成,发酵前期存在少量葡萄酒有孢汉逊酵母(Hanseniaspora uvarum)与克鲁维毕赤酵母(Pichia kluyveri),推测其来源于葡萄表皮的天然酵母[18]。
根据酵母群落在发酵过程中的相对丰度变化可知,葡萄醪中实际定植的酵母丰度与发酵剂配比密切相关。A配比(A38占80%,酿酒酵母占20%)的混合发酵剂接种后,酿酒酵母的比例在发酵第2天即达到40%,第4天升至80%以上并占据绝对的主导地位(图2-a,图2-b);B配比(A38占90%,酿酒酵母占10%)发酵体系中,酿酒酵母比例在前3 d均不超过40%,直至第4天升至约70%(图2-c,图2-d);C配比(A38占95%,酿酒酵母占5%)中,酿酒酵母在前4 d比例均低于35%,直至第5天才成为优势菌群(图2-e,图2-f)。结合先前研究中耐热拉钱斯氏酵母乳酸脱氢酶的活性特征[5-6],推测高比例A38通过酸化微环境延缓酿酒酵母增殖,而低比例A38的酸化效应较弱,酿酒酵母快速占据营养生态位。这一菌群演替特征也从微生物互作角度解释了不同配比混合增酸发酵剂发酵前中期速率存在差异的原因(图1)。

a-MC-A;b-MN-A;c-MC-B;d-MN-B;e-MC-C;f-MN-C
图2 发酵过程中酵母种群的相对丰度
Fig.2 Relative abundance of the yeast species during fermentation
在混合增酸发酵剂配比一致的条件下,酿酒酵母CECA的定植能力优于NX16,在发酵中能更快的占据主导地位(图2)。以A配比为例,接种后第1天,含CECA的混合发酵剂(MC-A)中酿酒酵母比例已接近40%,而含NX16的发酵剂(MN-A)中酿酒酵母比例不足20%(图2-a,图2-b),推测CECA对葡萄糖和氨基酸的利用效率更高,或产乙醇速率更快,能更早形成抑制非酿酒酵母的环境;而NX16可能对A38产乳酸的耐受性更低,初期生长受抑制[19-20]。
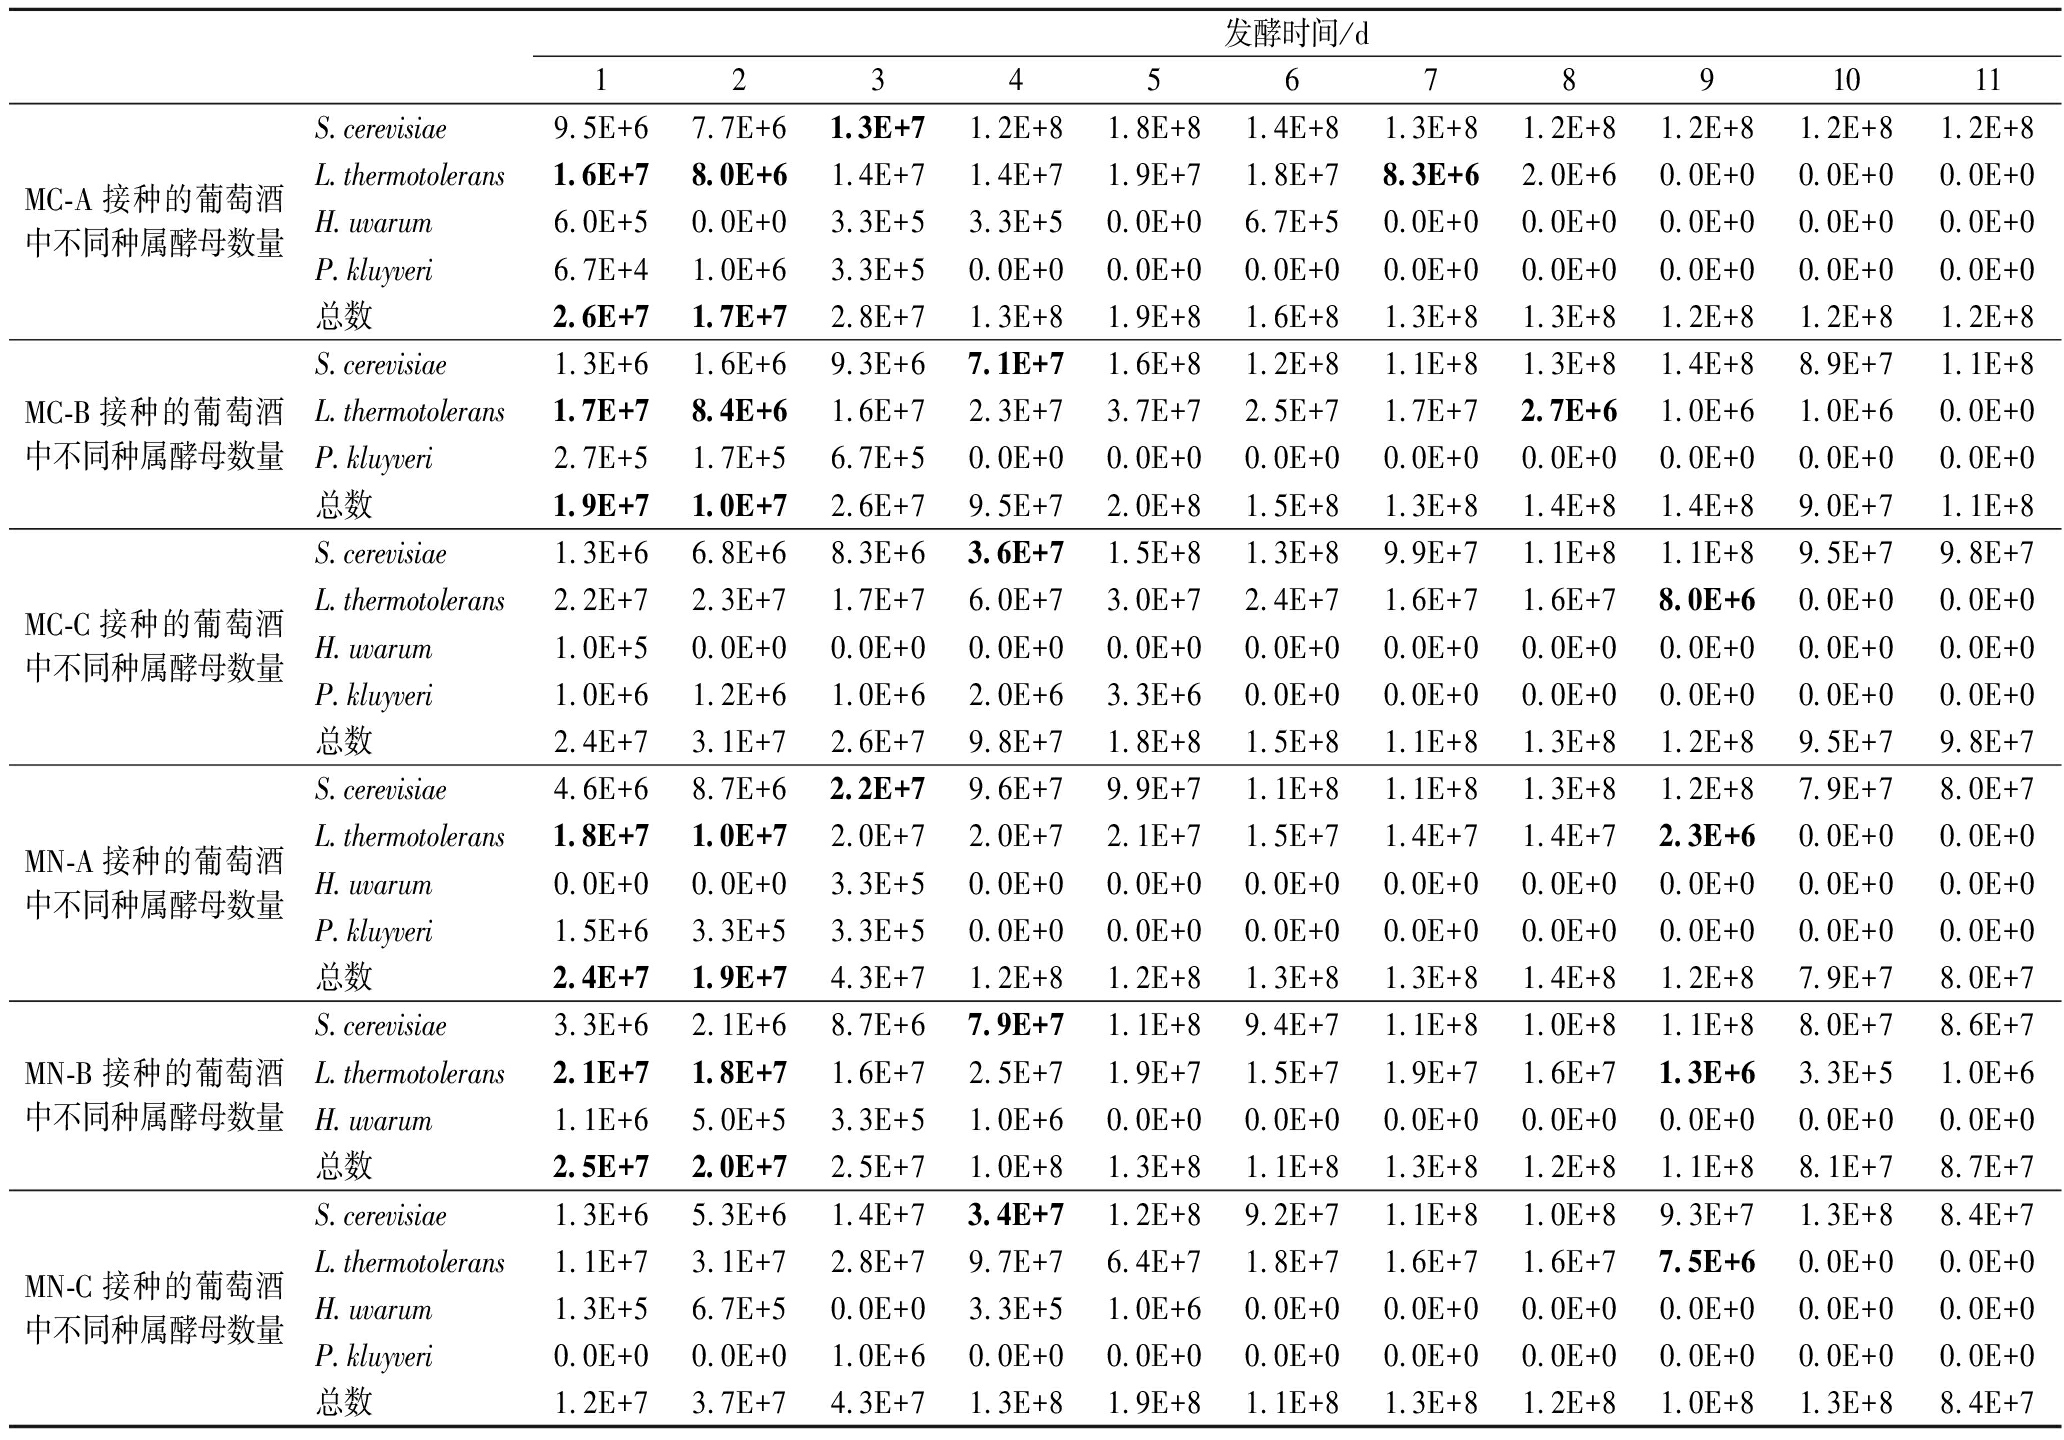
从种群数量变化特征分析,A和B配比的混合发酵剂处理组中,微生物群落总数在第2天均呈现下降趋势,且该现象主要由耐热拉钱斯氏酵母的数量衰减导致;而C配比发酵体系中未观察到这一规律(表2)。推测其原因可能为酿酒酵母与耐热拉钱斯氏酵母存在种间竞争关系,竞争作用引发耐热拉钱斯氏酵母数量下降[19]。而当某一酵母种群的数量占据绝对优势时,种间竞争效应则相对较弱[20]。
表2 发酵过程中主要酵母种群数量的变化 单位:CFU/mL
Table 2 The number of the predominant yeast species during fermentation
发酵时间/d1234567891011MC-A接种的葡萄酒中不同种属酵母数量S.cerevisiae9.5E+67.7E+61.3E+71.2E+81.8E+81.4E+81.3E+81.2E+81.2E+81.2E+81.2E+8L.thermotoler-ans1.6E+78.0E+61.4E+71.4E+71.9E+71.8E+78.3E+62.0E+60.0E+00.0E+00.0E+0H.uvarum6.0E+50.0E+03.3E+53.3E+50.0E+06.7E+50.0E+00.0E+00.0E+00.0E+00.0E+0P.kluyveri6.7E+41.0E+63.3E+50.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数2.6E+71.7E+72.8E+71.3E+81.9E+81.6E+81.3E+81.3E+81.2E+81.2E+81.2E+8MC-B接种的葡萄酒中不同种属酵母数量S.cerevisiae1.3E+61.6E+69.3E+67.1E+71.6E+81.2E+81.1E+81.3E+81.4E+88.9E+71.1E+8L.thermotoler-ans1.7E+78.4E+61.6E+72.3E+73.7E+72.5E+71.7E+72.7E+61.0E+61.0E+60.0E+0P.kluyveri2.7E+51.7E+56.7E+50.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数1.9E+71.0E+72.6E+79.5E+72.0E+81.5E+81.3E+81.4E+81.4E+89.0E+71.1E+8MC-C接种的葡萄酒中不同种属酵母数量S.cerevisiae1.3E+66.8E+68.3E+63.6E+71.5E+81.3E+89.9E+71.1E+81.1E+89.5E+79.8E+7L.thermotoler-ans2.2E+72.3E+71.7E+76.0E+73.0E+72.4E+71.6E+71.6E+78.0E+60.0E+00.0E+0H.uvarum1.0E+50.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0P.kluyveri1.0E+61.2E+61.0E+62.0E+63.3E+60.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数2.4E+73.1E+72.6E+79.8E+71.8E+81.5E+81.1E+81.3E+81.2E+89.5E+79.8E+7MN-A接种的葡萄酒中不同种属酵母数量S.cerevisiae4.6E+68.7E+62.2E+79.6E+79.9E+71.1E+81.1E+81.3E+81.2E+87.9E+78.0E+7L.thermotoler-ans1.8E+71.0E+72.0E+72.0E+72.1E+71.5E+71.4E+71.4E+72.3E+60.0E+00.0E+0H.uvarum0.0E+00.0E+03.3E+50.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0P.kluyveri1.5E+63.3E+53.3E+50.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数2.4E+71.9E+74.3E+71.2E+81.2E+81.3E+81.3E+81.4E+81.2E+87.9E+78.0E+7MN-B接种的葡萄酒中不同种属酵母数量S.cerevisiae3.3E+62.1E+68.7E+67.9E+71.1E+89.4E+71.1E+81.0E+81.1E+88.0E+78.6E+7L.thermotoler-ans2.1E+71.8E+71.6E+72.5E+71.9E+71.5E+71.9E+71.6E+71.3E+63.3E+51.0E+6H.uvarum1.1E+65.0E+53.3E+51.0E+60.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数2.5E+72.0E+72.5E+71.0E+81.3E+81.1E+81.3E+81.2E+81.1E+88.1E+78.7E+7MN-C接种的葡萄酒中不同种属酵母数量S.cerevisiae1.3E+65.3E+61.4E+73.4E+71.2E+89.2E+71.1E+81.0E+89.3E+71.3E+88.4E+7L.thermotoler-ans1.1E+73.1E+72.8E+79.7E+76.4E+71.8E+71.6E+71.6E+77.5E+60.0E+00.0E+0H.uvarum1.3E+56.7E+50.0E+03.3E+51.0E+60.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0P.kluyveri0.0E+00.0E+01.0E+60.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+00.0E+0总数1.2E+73.7E+74.3E+71.3E+81.9E+81.1E+81.3E+81.2E+81.0E+81.3E+88.4E+7
酿酒酵母数量增长呈现配比依赖性,A配比中酿酒酵母在3 d即达到107 CFU/mL,B和C配比中酿酒酵母则分别于第4天达到约7×107、3×107 CFU/mL。耐热拉钱斯氏酵母的衰减速率存在菌株特异性差异,MC-A、MC-B、MC-C处理组中耐热拉钱斯氏酵母分别于第7天、8、9天衰减至106 CFU/mL数量级;而MN系列混合发酵剂处理组中,耐热拉钱斯氏酵母均于第9天衰减至106 CFU/mL(表2)。
2.3 基本理化指标
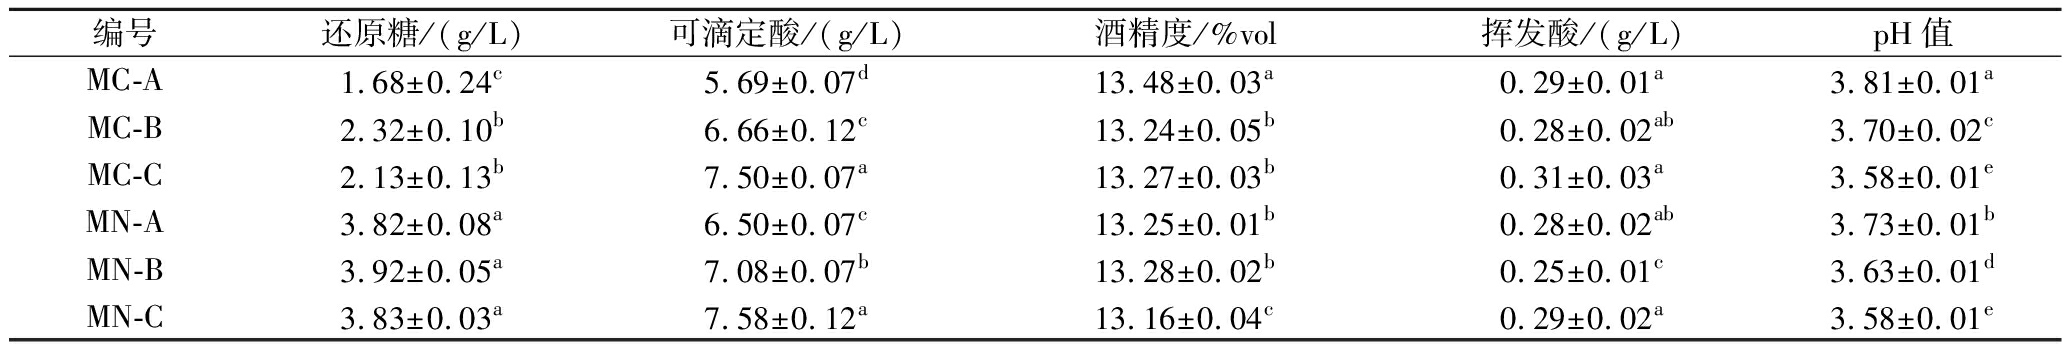
由表3可知,所有混合增酸发酵剂的酿酒特性稳定,发酵酒样的还原糖含量<4.0 g/L,挥发酸含量<1.20 g/L,酒精度>11.0%vol,符合GB/T 15038—2006《葡萄酒、果酒通用分析方法(含第1号修改单)》对干红葡萄酒的要求,但不同混合增酸发酵剂酿造的酒样在还原糖、总酸、酒精度、挥发酸和pH值中存在显著差异(表3)。
表3 发酵结束后葡萄酒的基本理化指标
Table 3 The basic physicochemical parameters of resultant wines
编号还原糖/(g/L)可滴定酸/(g/L)酒精度/%vol挥发酸/(g/L)pH值MC-A1.68±0.24c5.69±0.07d13.48±0.03a0.29±0.01a3.81±0.01aMC-B2.32±0.10b6.66±0.12c13.24±0.05b0.28±0.02ab3.70±0.02cMC-C2.13±0.13b7.50±0.07a13.27±0.03b0.31±0.03a3.58±0.01eMN-A3.82±0.08a6.50±0.07c13.25±0.01b0.28±0.02ab3.73±0.01bMN-B3.92±0.05a7.08±0.07b13.28±0.02b0.25±0.01c3.63±0.01dMN-C3.83±0.03a7.58±0.12a13.16±0.04c0.29±0.02a3.58±0.01e
注:不同小写字母表示差异显著(P<0.05)(下同)。
为明确菌株组成与配比对葡萄酒理化指标的影响程度,本研究采用双因素方差分析量化各变量解释率。菌株组成对成品酒还原糖含量起主导调控作用,解释度超过90%(图3),含NX16的混合发酵剂酿造的葡萄酒还原糖含量显著高于含CECA的发酵体系(表3)。可滴定酸含量与pH值的变化则主要由菌株配比主导,解释度均达80%以上(图3),这表明葡萄酒酸度特性主要由混合发酵剂的配比决定,发酵结束后的成品酒酸度随耐热拉钱斯氏酵母比例的提高而显著升高(表3)。
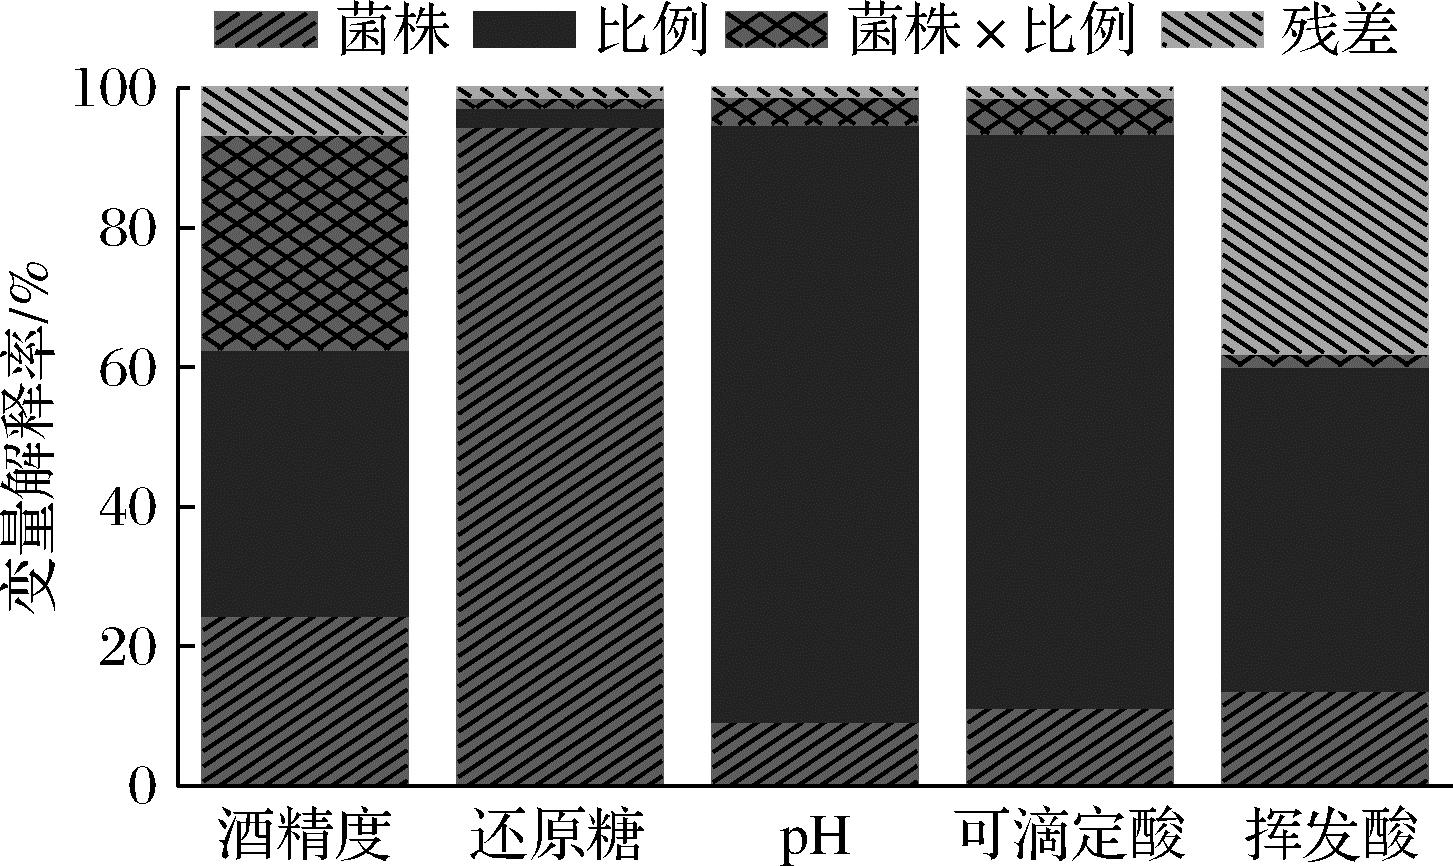
图3 根据双因素方差分析评估酵母菌株、配比、相互作用以及残差对基本理化指标的影响
Fig.3 Two-way analysis of variance of strain, proportion, their interaction, and residual effects on basic physicochemical parameters
2.4 挥发性化合物分析
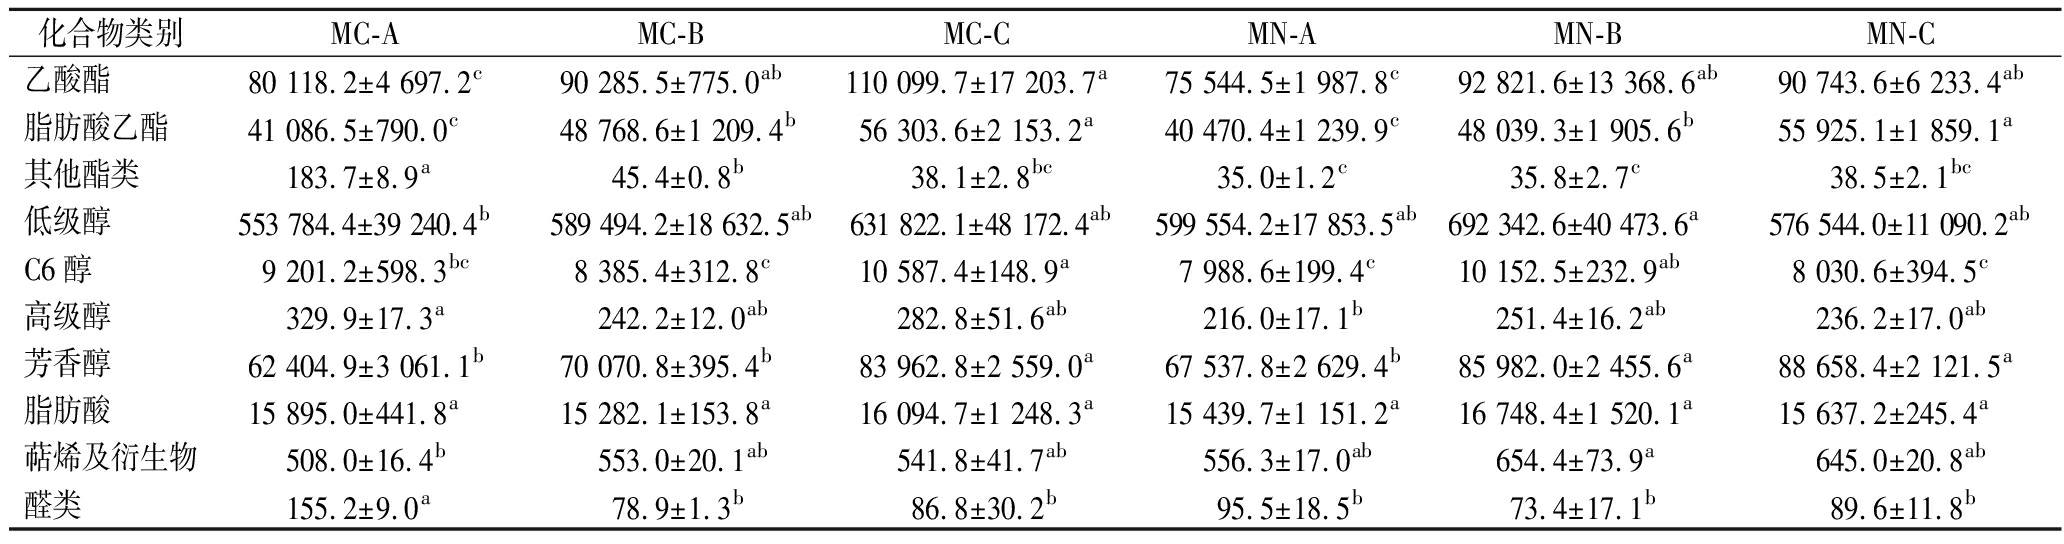
葡萄酒样品中共检测出47种挥发性化合物,依据化学结构与属性共分为5类:酯类(乙酸酯、脂肪酸乙酯、其他酯类)、醇类(低级醇、C6醇、高级醇、芳香醇)、脂肪酸、萜烯及其衍生物、醛类(表4)。
表4 不同类别挥发性化合物的总含量 单位:μg/L
Table 4 Total content of various categories volatile compounds
化合物类别MC-AMC-BMC-CMN-AMN-BMN-C乙酸酯80 118.2±4 697.2c90 285.5±775.0ab110 099.7±17 203.7a75 544.5±1 987.8c92 821.6±13 368.6ab90 743.6±6 233.4ab脂肪酸乙酯41 086.5±790.0c48 768.6±1 209.4b56 303.6±2 153.2a40 470.4±1 239.9c48 039.3±1 905.6b55 925.1±1 859.1a其他酯类183.7±8.9a45.4±0.8b38.1±2.8bc35.0±1.2c35.8±2.7c38.5±2.1bc低级醇553 784.4±39 240.4b589 494.2±18 632.5ab631 822.1±48 172.4ab599 554.2±17 853.5ab692 342.6±40 473.6a576 544.0±11 090.2abC6醇9 201.2±598.3bc8 385.4±312.8c10 587.4±148.9a7 988.6±199.4c10 152.5±232.9ab8 030.6±394.5c高级醇329.9±17.3a242.2±12.0ab282.8±51.6ab216.0±17.1b251.4±16.2ab236.2±17.0ab芳香醇62 404.9±3 061.1b70 070.8±395.4b83 962.8±2 559.0a67 537.8±2 629.4b85 982.0±2 455.6a88 658.4±2 121.5a脂肪酸15 895.0±441.8a15 282.1±153.8a16 094.7±1 248.3a15 439.7±1 151.2a16 748.4±1 520.1a15 637.2±245.4a萜烯及衍生物508.0±16.4b553.0±20.1ab541.8±41.7ab556.3±17.0ab654.4±73.9a645.0±20.8ab醛类155.2±9.0a78.9±1.3b86.8±30.2b95.5±18.5b73.4±17.1b89.6±11.8b
脂肪酸乙酯含量随混合发酵剂中耐热拉钱斯氏酵母A38占比升高呈递增趋势,C配比酒样中含量最高,且显著高于B和A配比酒样。醇类物质中,芳香醇含量同样随A38占比升高而增加,MC-C、MN-B、MN-C组芳香醇含量显著高于MC-A、MC-B、MN-A组。含酿酒酵母CECA的处理组(MC)中,C配比样品(MC-C)的乙酸酯、脂肪酸乙酯、低级醇、C6醇、芳香醇、脂肪酸和萜烯及其衍生物含量均为最高,呈现出最高的香气物质积累强度;而含酵母NX16的处理组(MN)中,B配比样品(MN-B)的乙酸酯、低级醇、C6醇、高级醇、脂肪酸以及萜烯及其衍生物含量均为最高,香气物质积累量最丰富(表4)。
OAV是评价挥发性化合物对葡萄酒香气贡献的核心指标,OAV>1.00的物质为构成葡萄酒香气的关键组分,而OAV介于0.10~1.00的物质可通过组分间相互作用对葡萄酒香气轮廓产生影响[21]。通过分析不同混合增酸发酵剂酿造的酒样,共鉴定出30种OAV>0.10的关键挥发性化合物(表5)。乙酸香叶酯、丁酸乙酯和乙酸乙酯作为OAV>10.00的优势挥发性化合物,为葡萄酒贡献了浓郁的花香和果香[22];而乳酸乙酯的OAV随耐热拉钱斯氏酵母A38比例的提高呈显著上升趋势,且该物质有高阈值高含量的特点,对葡萄酒香气轮廓的构建起到了重要支撑作用[16]。醇类物质中,异戊醇和正戊醇均表现出较高的OAV,可以为葡萄酒带来更饱满的酒体,但需关注其含量过高时可能产生的不良异味,进而影响葡萄酒感官品质[23]。苯乙醇的OAV随酵母A38比例的增加而显著提升,推测其可能为酵母A38的特征挥发性代谢产物。此外,由酵母NX16组成的混合发酵体系,可显著提高葡萄酒中香叶醇与2-甲基丁酸乙酯的OAV(表5),推测NX16的萜烯合成酶和支链氨基酸代谢活性更高,或能高效释放葡萄原料中的结合态萜烯并促进支链脂肪酸的酯化反应[22]。
表5 关键挥发性化合物的香气特征
Table 5 The flavor characteristics of key volatile compounds

类别化合物名称保留时间/min阈值[13-15]/(μg/L)香气特征OAVMC-AMC-BMC-CMN-AMN-BMN-C酯类-乙酸酯乙酸乙酯6.127 500果香、甜味10.3711.7114.339.7512.0011.82乙酸异丁酯8.461 600香蕉、梨0.760.660.820.590.670.57乙酸异戊酯11.741 500香蕉、菠萝0.440.540.480.600.880.45乙酸香叶酯36.990.9花香26.0626.3626.1726.4726.2826.43乙酸苯乙酯39.31650甜香、果香0.550.680.750.720.360.58酯类-脂肪酸乙酯丁酸乙酯9.0720苹果、香蕉17.1717.5815.0015.2119.1317.782-甲基丁酸乙酯9.5118青苹果、草莓0.350.430.470.740.840.67己酸乙酯15.89140青苹果5.054.765.274.225.355.01乳酸乙酯20.65146 000奶油、水果0.260.310.360.260.310.36辛酸乙酯24.26580苹果、菠萝2.641.772.141.531.821.68月桂酸乙酯32.42300花香、脂肪1.190.820.980.650.860.71癸酸乙酯39.96200椰子、蜡味0.360.270.300.160.260.24酯类-其他水杨酸甲酯38.0140冬青、薄荷0.730.690.500.450.420.51醇类-低级醇正丙醇9.01306 000酒精0.190.210.210.180.240.20异戊醇14.7060 000果香、溶剂7.648.098.768.489.577.93正戊醇15.884 000酒精8.257.768.536.838.698.10醇类-C6醇2-甲基-1-戊醇10.5020 000生青、溶剂0.420.360.460.350.450.351-己醇20.65500青草、青叶0.730.971.140.740.970.88(E)-3-己烯-1-醇21.85110青草、青叶4.325.806.804.455.805.25醇类-芳香醇苯乙醇42.6514 000花香、蜂蜜4.404.935.924.746.036.26羧酸类-脂肪族丙酸28.378 100醋、奶酪1.271.271.311.321.351.25辛酸47.33500酸腐、刺激4.653.764.223.774.144.05癸酸53.84200脂肪、酸腐4.133.733.933.754.003.85萜烯及其衍生物D-柠檬烯14.715柠檬、柑橘1.912.022.242.212.862.08香叶醇27.2220玫瑰、花香6.8710.109.3211.0614.4713.47香茅醇36.99100玫瑰、薰衣草0.450.480.460.490.510.59橙花醇38.7070橙花、玫瑰4.123.863.903.593.864.06金合欢醇56.2215花香、蜂蜜0.380.280.340.230.670.16醛类壬醛22.0815生青、黄瓜9.964.885.435.984.485.53癸醛26.3710橘皮、脂肪0.570.580.530.580.620.67
为进一步明确菌株组成与配比对OAV>0.10的关键挥发性化合物的差异化影响,本研究分别构建了以菌株组成和菌株配比为自变量的OPLS-DA模型。试验所得模型的R2和Q2均大于0.5,且Q2回归线与纵轴交点小于0,表明模型验证有效。在菌株类型为自变量的模型中,MC-B和MN-B组无显著区分,其关键挥发性化合物特征未表现出明显差异(图4-a)。根据投影变量重要性(variable importance in projection,VIP)分析,菌株组成的差异主要影响了2-甲基-1-戊酸、乙酸乙酯、苯乙醇、异戊醇、乳酸乙酯和正戊醇的含量(图4-b)。在菌株配比为自变量的模型中,A、B、C配比的发酵酒样呈现明显区分,关键挥发性化合物特征差异显著(图4-c)。基于VIP分析值,菌株配比的差异主要影响了正丙醇、乙酸乙酯、苯乙醇、2-甲基-1-戊酸、乳酸乙酯和异戊醇的含量(图4-d)。
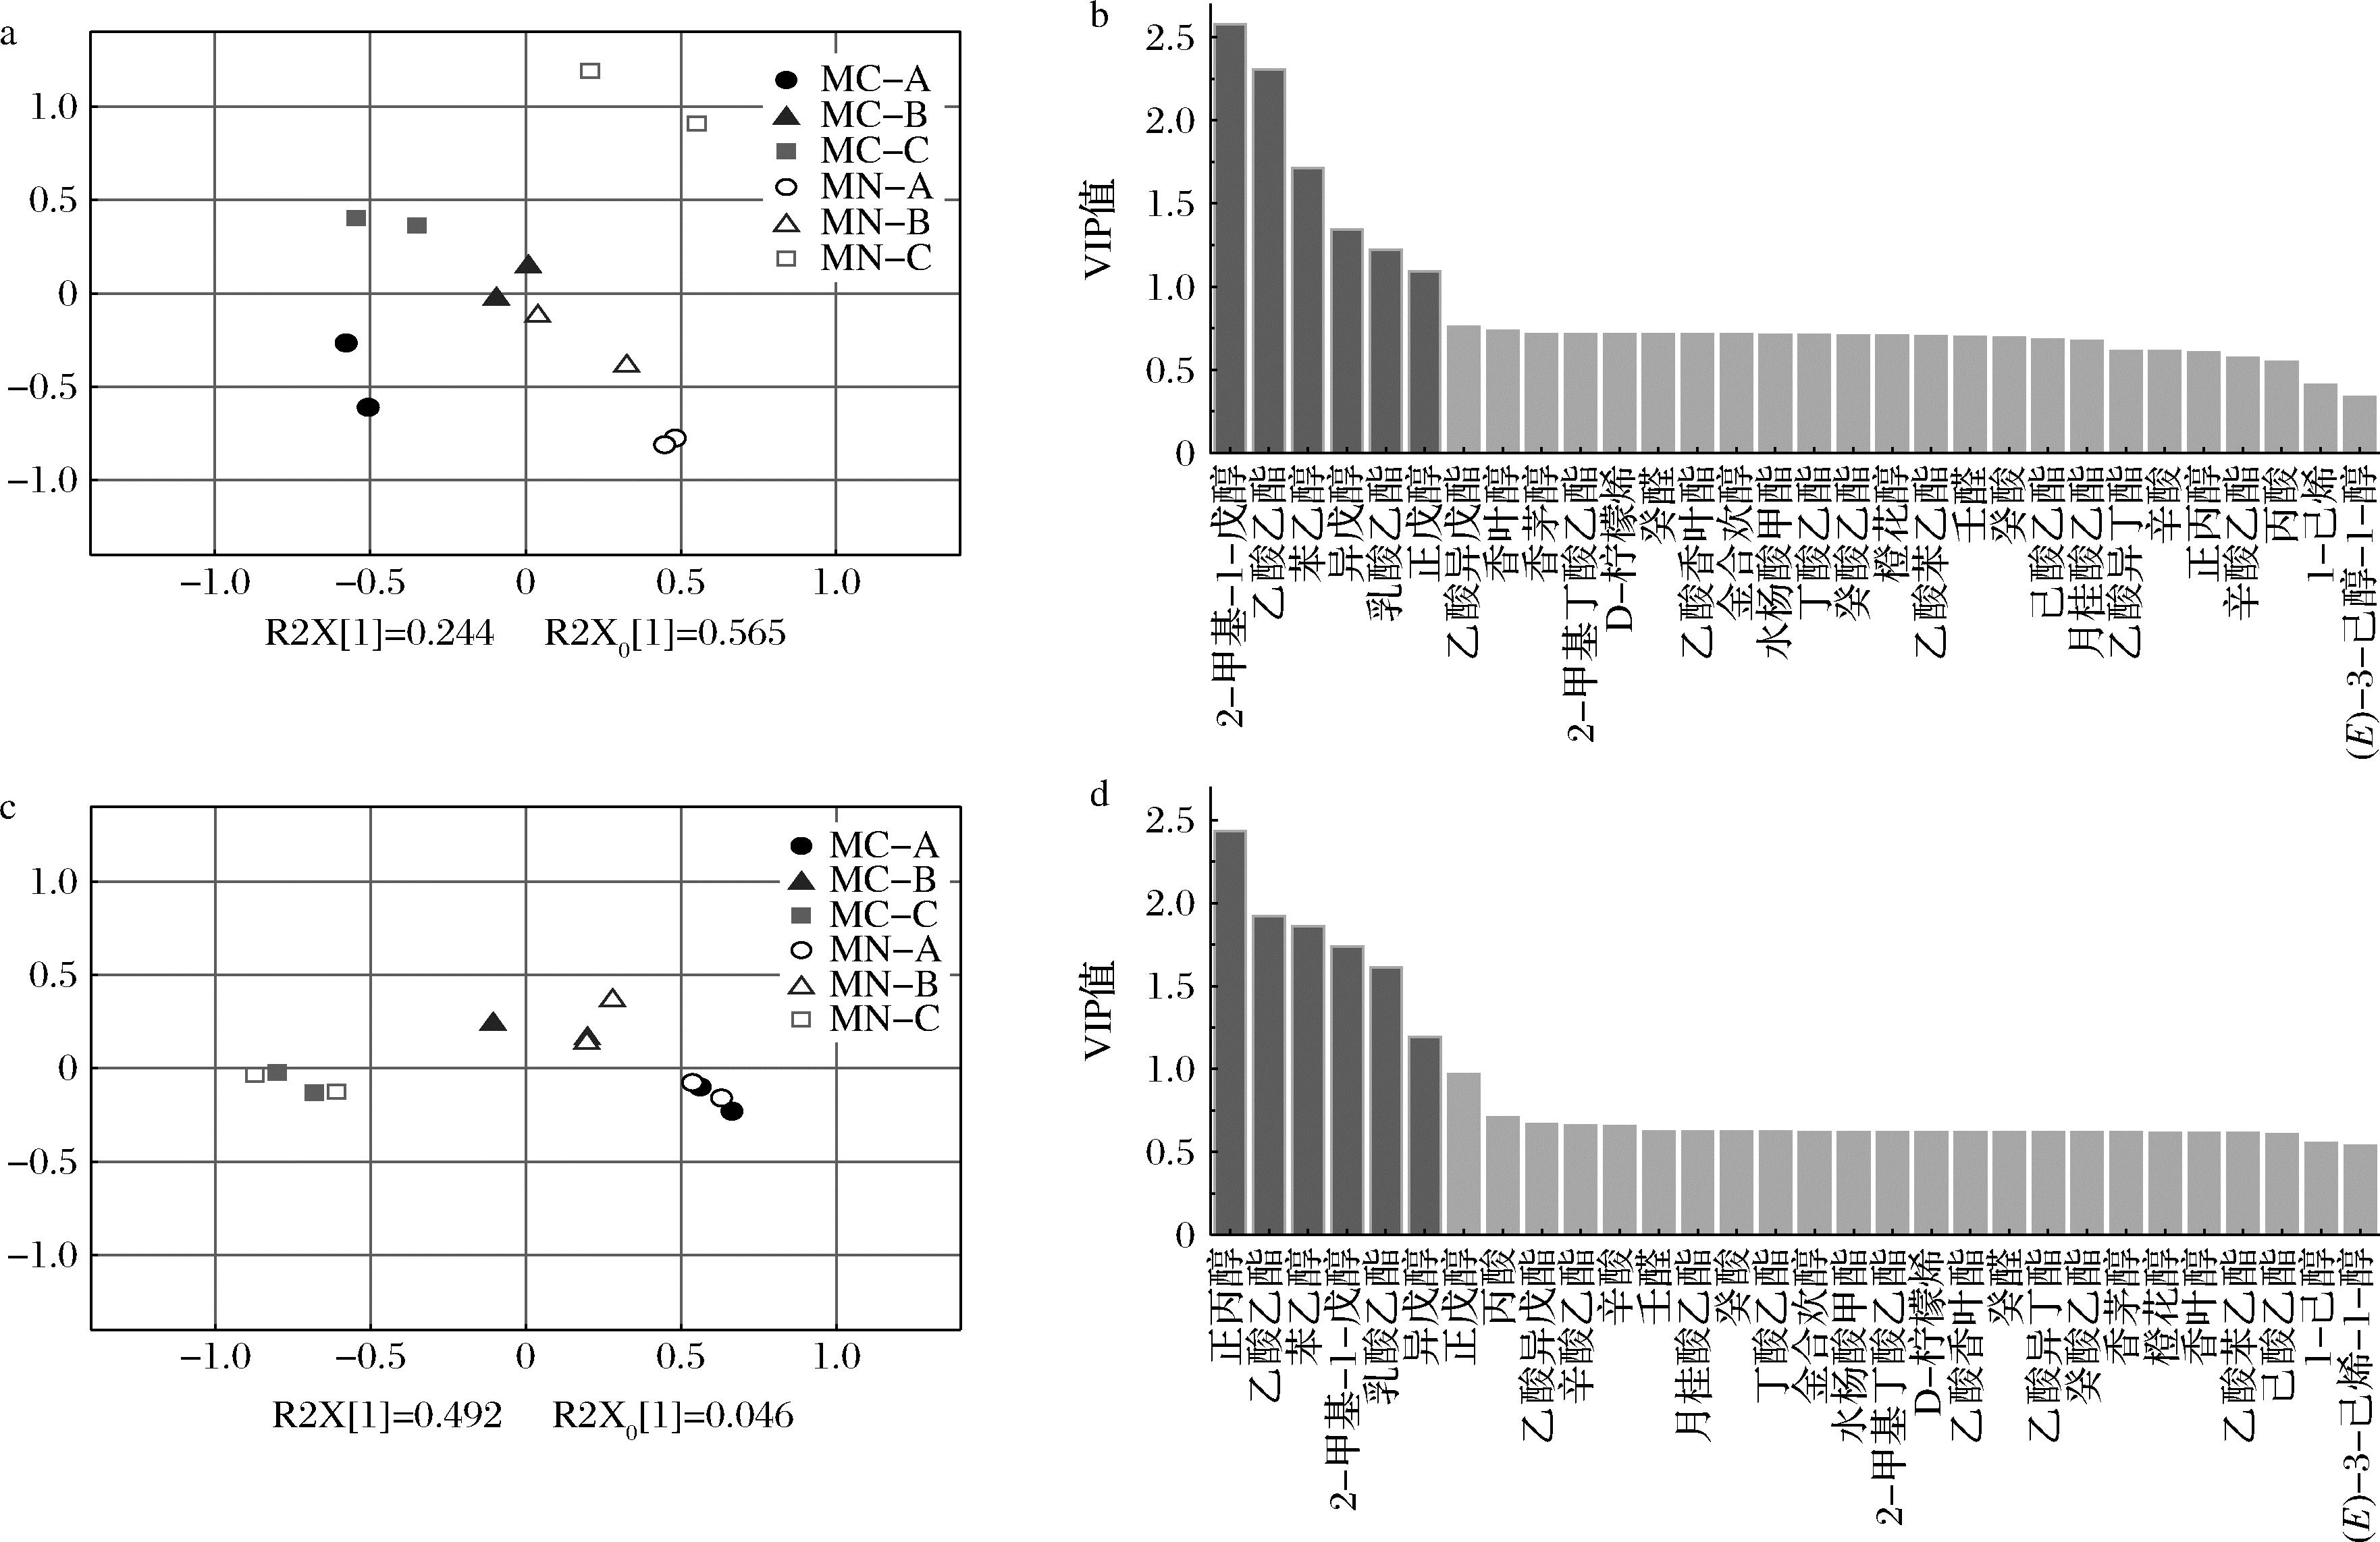
a-以菌株组成为自变量的OPLS-DA模型;b-以菌株组成为自变量的VIP值;c-以菌株配比为自变量的OPLS-DA模型;d-以菌株配比为自变量的VIP值
图4 关键挥发性化合物的OPLS-DA模型及VIP值
Fig.4 OPLS-DA model and VIP value of key volatile compounds
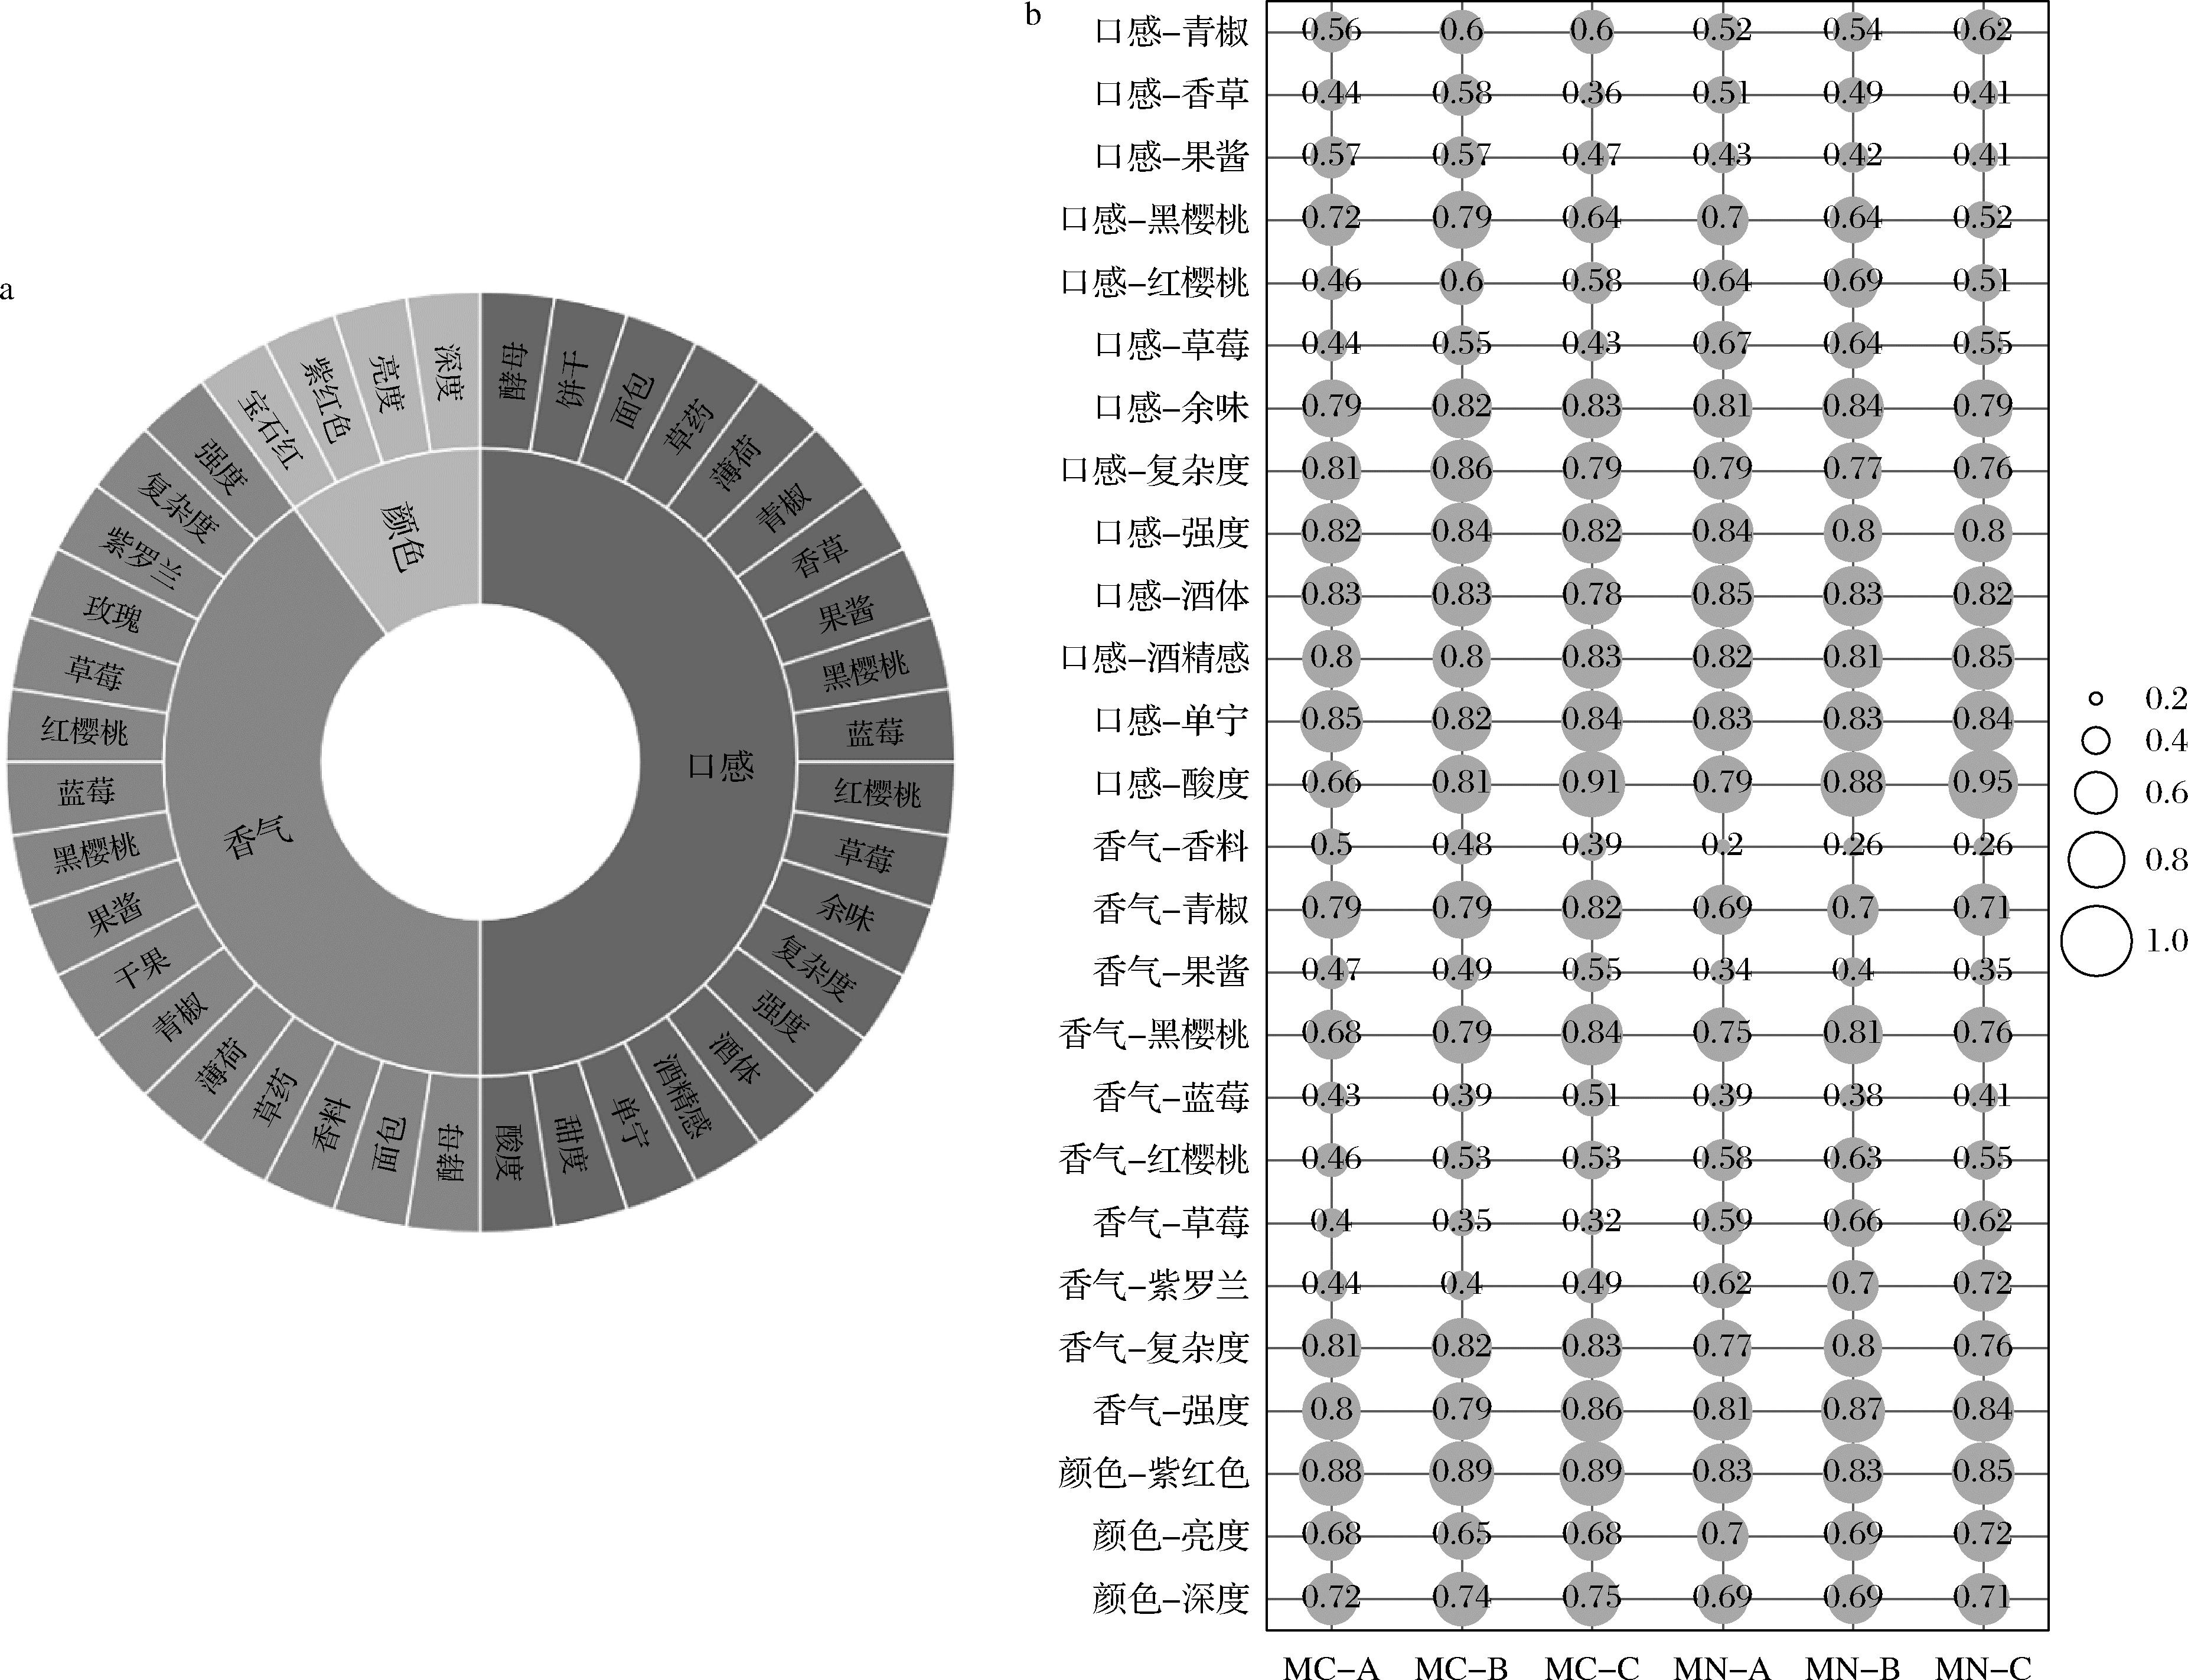
a-感官风味轮;b-关键感官属性的几何平均值(几何平均值>0.4)
图5 不同混合增酸发酵剂的感官特征
Fig.5 Sensory characteristics of various mixed acidifying starter cultures
2.5 RATA法感官评估
根据不同混合增酸发酵剂酿造的葡萄酒样品感官特征,品评团队构建了适用于本次品鉴的精准感官属性词汇库,共包含4个颜色属性、16个香气属性及20个口感属性(图5-a)。
以几何平均值>0.4为筛选指标,对感官结果进行分析和评价,最终确定了26个关键感官属性(图5-b)。颜色方面,含酵母CECA的混合发酵剂酒样(MC)表现出更强的颜色深度和紫红色,含酶母NX16的混合发酵剂酒样(MN)则表现出更高的颜色亮度。酒样颜色深度随耐热拉钱斯氏酵母A38接种比例的提升而增强(图5-b),这与已有研究中得出的耐热拉钱斯氏酵母可显著加深葡萄酒颜色的结论一致,推测A38通过产乳酸降低pH值,促进葡萄皮中花色苷的溶解和稳定,同时抑制花色苷的降解,使酒样呈现更深的紫红色,解释了生物增酸与颜色改善的协同效应[8,24]。香气特征方面,黑樱桃与青椒香气为所有酒样中最突出的核心香气特征。MC组酒样表现出更显著的蓝莓、黑樱桃、果酱、青椒及香料的香气特征,香气复杂度更高,这可能与酵母CECA具有更强的酚类物质代谢能力,可将葡萄中的黄烷醇转化为丁香酚、香兰素等香料类化合物有关[16]。MN组酒样则表现出更明显的紫罗兰、草莓和红樱桃香气(图5-b),这可能与酶母NX16显著提升了酒样中的香叶醇与2-甲基丁酸乙酯的含量有关(表5),进而赋予葡萄酒更浓郁的花香与红色水果香气。值得注意的是,MC-C与MN-B酒样的香气强度及复杂度分别为其所属MC组、MN组酒样中的最高水平(图5-b),这一特征与挥发性物质的含量分析结果一致(表4)。口感特征上,酒样酸度变化趋势与可滴定酸含量完全一致(表3),与耐热拉钱斯氏酵母A38的接种比例呈正相关。所有酒样均表现出较强的单宁、酒精感、酒体、复杂度和余味。MC组酒样表现出更突出的黑樱桃、果酱与青椒风味,而MN组酒样则有较强的草莓和红樱桃的特征,与香气特征表现高度一致(图5-b)。
3 结论
本研究针对温暖产区葡萄果实酸度不足的产业痛点,系统探究了耐热拉钱斯氏酵母与不同酿酒酵母复配形成的混合增酸发酵剂在赤霞珠葡萄酒酿造中的应用潜力,明确了菌株组成与配比对发酵动力学及葡萄酒品质的调控水平。结果表明,酿酒酵母菌株的差异显著影响葡萄酒的启酵速率、还原糖代谢及风味特征。含酿酒酵母CECA的混合增酸发酵剂启酵速率更快、定植能力更强,其酿造的葡萄酒样颜色更深、香气复杂度更高,富含蓝莓、黑樱桃及香料风味;含NX16的混合增酸发酵剂则通过提升香叶醇与2-甲基丁酸乙酯含量,赋予葡萄酒更浓郁的花香与红色水果香气。混合发酵剂的菌株配比主要调控了发酵速率、酸度特性及挥发性化合物积累水平。酿酒酵母占比与发酵速率呈正相关;而耐热拉钱斯氏酵母A38占比主导酸度调控,随A38接种比例升高,成品酒可滴定酸含量显著升高、pH值显著降低,同时促进脂肪酸乙酯与芳香醇类化合物的积累,增强了葡萄酒的果香表现。值得一提的是,混合增酸发酵剂MN-B(A38 90%+NX16 10%)不仅实现适度增酸,更显著提升了葡萄酒的挥发性化合物含量,达成了风味品质的优化提升。综上,本研究明确了混合增酸发酵剂菌株组成与配比的差异化调控功能,筛选获得的最优发酵剂配制方案,为温暖产区葡萄酒生物增酸技术的产业化应用提供了精准技术支撑。
[1] Vicente J, Baran Y, Navascués E, et al.Biological management of acidity in wine industry:A review[J].International Journal of Food Microbiology, 2022, 375:109726.
[2] Rogiers S Y, Greer D H, Liu Y, et al.Impact of climate change on grape berry ripening:An assessment of adaptation strategies for the Australian vineyard[J].Frontiers in Plant Science, 2022, 13:1094633.
[3] Yang W B, Lv Z Z, Liy H, et al.Effect of organic acid addition before fermentation on the physicochemical and sensory properties of cherry wine[J].Foods, 2024, 13(23):3902.
[4] Payan C, Gancel A L, Jourdes M, et al.Wine acidification methods:A review[J].OENO One, 2023, 57(3):113-126.
[5] 董琦楠, 李莹, 叶冬青, 等.耐热克鲁维酵母在葡萄酒酿造中的研究进展[J].微生物学通报, 2022, 49(5):1941-1954.Dong Q N, Li Y, Ye D Q, et al.Research progress of Lachancea thermotolerans in winemaking[J].Microbiology China, 2022, 49(5):1941-1954.
[6] 唐冲, 成池芳, 许引虎, 等.耐热克鲁维酵母在葡萄酒发酵中的研究和应用进展[J].食品科学, 2023, 44(3):323-331.Tang C, Cheng C F, Xu Y H, et al.Progress in research and application of Lachancea thermotolerans in wine fermentation[J].Food Science, 2023, 44(3):323-331.
[7] Hranilovic A, Li S, Boss P K, et al.Chemical and sensory profiling of Shiraz wines co-fermented with commercial Saccharomyces inocula:Chemical and sensory impact of mixed yeast inocula[J].Australian Journal of Grape and Wine Research, 2018, 24(2):166-180.
[8] Hranilovic A, Albertin W, Capone D L, et al.Impact of Lachancea thermotolerans on chemical composition and sensory profiles of Merlot wines[J].Food Chemistry, 2021, 349:129015.
[9] Vaquero C, Loira I, Heras J M, et al.Biocompatibility in ternary fermentations with Lachancea thermotolerans, other non-Saccharomyces and Saccharomyces cerevisiae to control pH and improve the sensory profile of wines from warm areas[J].Frontiers in Microbiology, 2021, 12:656262.
[10] Su Y, Dong Q N, Chen Y, et al.Impact of sequential inoculation timing on the quality of wine fermented by indigenous Lachancea thermotolerans and Saccharomyces cerevisiae[J].LWT, 2024, 204:116438.
[11] Vilela A.Lachancea thermotolerans, the non-Saccharomyces yeast that reduces the volatile acidity of wines[J].Fermentation, 2018, 4(3):56.
[12] Amberg D C, Burke D J, Strathern J N.Preparation of genomic DNA from yeast using glass beads[J].CSH Protocols, 2006, 2006(1):pdb.prot4151.
[13] 庞红勋, 程国利, 朱秀慧, 等.产香酿酒酵母菌株在霞多丽干白葡萄酒中的风味调控潜力研究[J].食品与发酵工业, 2025, 51(24):291-298.Pang H X, Cheng G L, Zhu X H, et al.Flavor-modulating potential of aroma-producing Saccharomyces cerevisiae strains in Chardonnay dry white wine[J].Food and Fermentation Industries, 2025, 51(24):291-298.
[14] Ruth J H.Odor thresholds and irritation levels of several chemical substances:A review[J].American Industrial Hygiene Association Journal, 1986, 47(3):A-142-A-151.
[15] Welke J E, Zanus M, Lazzarotto M, et al.Quantitative analysis of headspace volatile compounds using comprehensive two-dimensional gas chromatography and their contribution to the aroma of Chardonnay wine[J].Food Research International, 2014, 59:85-99.
[16] Coetzee C, Van Wyngaard E,  uklje K, et al.Chemical and sensory study on the evolution of aromatic and nonaromatic compounds during the progressive oxidative storage of a Sauvignon Blanc wine[J].Journal of Agricultural and Food Chemistry, 2016, 64(42):7979-7993.
[17] 张蜜, 徐锡明, 魏煜航, 等.芝士焗甘薯风味轮建立与感官特征解析[J].食品安全质量检测学报, 2024, 15(11):174-181.Zhang M, Xu X M, Wei Y H, et al.Analysis of sensory characteristics of cheesy sweet potato gratin and establishment of flavor wheel[J].Journal of Food Safety &Quality, 2024, 15(11):174-181.
[18] Cordero-Bueso G, Vigentini I, Foschino R, et al.Culturable yeast diversity of grape berries from Vitis vinifera ssp.sylvestris (Gmelin) hegi[J].Journal of Fungi, 2022, 8(4):410.
[19] Pérez-Nevado F, Albergaria H, Hogg T, et al.Cellular death of two non-Saccharomyces wine-related yeasts during mixed fermentations with Saccharomyces cerevisiae[J].International Journal of Food Microbiology, 2006, 108(3):336-345.
[20] Cameron H, Coulson T, Marshall D J.Size and density mediate transitions between competition and facilitation[J].Ecology Letters, 2019, 22(11):1879-1888.
[21] Escudero A, Campo E, Fari a L, et al.Analytical characterization of the aroma of five premium red wines.Insights into the role of odor families and the concept of fruitiness of wines[J].Journal of Agricultural and Food Chemistry, 2007, 55(11):4501-4510.
[22] Wang Y Y, Ma Y H, Duan J L, et al.Discrimination and characterization of the volatile organic compounds in red and black raspberry wines fermented with different commercial Saccharomyces cerevisiae:An integrated analysis using E-nose, GC-MS, GC-IMS, and multivariate statistical models[J].Food Chemistry, 2025, 478:143678.
[23] De-La-Fuente-Blanco A, S enz-Navajas M P, Ferreira V.Levels of higher alcohols inducing aroma changes and modulating experts’ preferences in wine model solutions:Levels of higher alcohols inducing aroma changes[J].Australian Journal of Grape and Wine Research, 2017, 23(2):162-169.
[24] Benito S.The impacts of Lachancea thermotolerans yeast strains on winemaking[J].Applied Microbiology and Biotechnology, 2018, 102(16):6775-6790.