酿酒酵母(Saccharomyces cerevisiae)在葡萄酒酒精发酵过程中起主导作用,能代谢生成醇类、酸类、酯类、醛类、萜烯类等多种风味化合物,是发酵香气的主要组成部分[1]。非S.cerevisiae是一类发酵能力相对较弱的酵母,主要在发酵的前期起作用。在非S.cerevisiae中,泽普林假丝酵母(Starmerella bacillaris)广泛存在于酿酒环境中,优先从高糖葡萄汁中分离出来,是一种耐渗透的酵母,具有低产乙醇、乙酸和高产甘油的特性[2-4]。此外,S.bacillaris能够分泌多种酶,如β-葡聚糖酶、β-葡糖苷酶、酯酶等[5];释放甘露糖蛋白或多糖[6];合成酯类、醇类、萜烯类等风味物质[7];改变花青素浓度[8-9]等。大量研究表明,S.bacillaris与S.cerevisiae混菌发酵表现出更高的香气质量、香气强度和花果香特征[10-11]。Li等[7]研究发现S.cerevisiae与S.bacillaris混菌发酵可提升甘油含量、降低乙酸含量,并能显著改变挥发性化合物的种类和含量。Binati等[12]研究了S.bacillaris与S.cerevisiae混菌发酵以及S.cerevisiae单菌发酵对挥发性香气物质的影响,发现混菌发酵能显著提升甘油含量,降低乙醇、乙醛及总SO2含量,减少高级醇和脂肪酸,避免不良风味,同时增加酯类和萜烯类物质含量以强化果香与花香。Hong等[13]采用S.bacillaris和S.cerevisiae顺序接种发酵后乙酯类(如丙酸乙酯、9-癸烯酸乙酯)和β-大马士革酮含量更高,而乙酸酯类(如乙酸异戊酯、乙酸己酯等)含量较低。Perpetuini等[2]研究发现S.bacillaris与S.cerevisiae RS1同时接种发酵可增加甘油含量,降低乙醇含量;醇类(苯乙醇、异戊醇)、酯类(辛酸乙酯、癸酸乙酯)、苯乙酸酯和芳樟醇等挥发性物质含量增加。此外,S.bacillaris与S.cerevisiae Uvaferm BC的顺序接种发酵可显著影响可滴定酸和甘油的含量,并降低酯类含量[4]。
近年来,很多研究集中于商业S.cerevisiae和本土非S.cerevisiae进行混菌发酵,而关于本土S.cerevisiae和非S.cerevisiae的混菌发酵在酿造中的应用研究较少。此外,以模拟葡萄汁进行发酵,其化学成分一致性较高,且不存在影响研究结果的野生酿酒微生物,更有利于探讨酵母菌株组合的真实酿造特性差异[14]。因此,本研究将本土S.bacillaris YC-C13和本土S.cerevisiae YC-E8进行混菌发酵,以YC-E8单菌发酵为对照组,通过测定模拟葡萄汁发酵过程中CO2失重变化以及发酵结束后发酵液的理化指标和挥发性香气成分,探究不同接种方式对发酵液品质的影响,寻找混合发酵最佳模式。本研究为本土酵母在混菌发酵中的应用提供理论依据。
1 材料与方法
1.1 材料
1.1.1 菌种
本土S.cerevisiae YC-E8、本土S.bacillaris YC-C13,分离自宁夏贺兰山东麓产区,现保藏于宁夏大学葡萄酒与园艺学院实验室。
1.1.2 培养基
YPD液体培养基(g/L):青岛海博生物技术有限公司,主要成分:蛋白胨20.0,葡萄糖20.0,酵母浸粉10.0,pH值6.5±0.2;YPD固体培养基在此基础上加琼脂20.0,121 ℃高压灭菌15 min。
WL培养基(g/L):青岛海博生物技术有限公司,主要成分:酵母浸粉5.0,酸水解酪蛋白5.0,葡萄糖50,KH2PO4 0.55,KCl 0.425,CaCl2 0.125,MgSO4 0.125,FeCl3 0.002 5,MnSO4 0.002 5,溴甲酚绿0.022,琼脂17.0。pH 5.5±0.2,121 ℃灭菌15 min。
模拟葡萄汁培养基(MS300):配方参考Bely等[15]、Rossouw等[16]的方法,将其糖含量调整为250 g/L,其中葡萄糖与果糖的质量比为1∶1;柠檬酸、D-/L-苹果酸均为6 g/L,吐温-80为0.5 mL/L[15];酵母可同化氮含量为300 mg/L[16]。用10 mol/L NaOH溶液将pH值调至3.3,模拟葡萄汁的可滴定酸(以酒石酸计)为11.4 g/L,使用0.45 μm的滤膜对模拟葡萄汁进行过滤以去除细菌。
1.1.3 主要试剂
液体样本甘油含量酶法测定试剂盒,北京普利来基因技术有限公司;D-/L-苹果酸(分析纯),天津市风船化学世纪科技有限公司;柠檬酸、葡萄糖、NaOH、硼酸,均为分析纯,天津大茂化学试剂有限公司;果糖、肌醇、D-泛酸钙、盐酸硫胺素、盐酸吡哆素、D-生物素、L-脯氨酸、L-色氨酸、L-丙氨酸、L-谷氨酸、L-丝氨酸、L-苏氨酸、L-亮氨酸、L-天冬氨酸、L-苯丙氨酸、L-异亮氨酸、L-组氨酸、L-酪氨酸、L-半胱氨酸、油酸钠、吐温-80(均为分析纯),北京索莱宝科技有限公司;KH2PO4、K2SO4、MgSO4·7H2O、CaCl2·2H2O、NaCl、MnSO4、ZnSO4·7H2O、CuSO4、CoCl2·6H2O(均为分析纯),上海广诺化学科技有限公司;KI、NaMoO4·2H2O、烟酸、NH4Cl、L-精氨酸、L-缬氨酸、L-甲硫氨酸、L-赖氨酸(均为分析纯),上海易恩化学技术有限公司;甘氨酸(分析纯),北京博奥拓达科技有限公司;麦角甾醇、L-谷氨酰胺(均为分析纯),上海源叶生物科技有限公司。
1.2 仪器与设备
LDZX-50FBS高压蒸汽灭菌锅,上海申安医疗器械厂;SW-CJ-2FD超净工作台,苏州安泰空气技术有限公司;SHP-150B生化培养箱,常州诺基仪器有限公司;JNX-26离心机,贝克曼库尔特股份有限公司;Multiskan FC酶标仪,赛默飞世尔仪器有限公司;PHS-3C型pH计,上海仪电科学仪器股份有限公司;7890 B气相色谱-7000 D质谱联用仪、DB-WAX色谱柱(60 m×250 μm,0.25 μm),美国Agilent公司;PAL3自动进样器,瑞士CTC公司。
1.3 实验方法
1.3.1 酵母活化培养与计数
将保藏在-20 ℃的本土S.cerevisiaeYC-E8、本土S.bacillaris YC-C13放置在4 ℃冰箱解冻,蘸取少量酵母菌液在YPD固体培养基上划线,于28 ℃恒温培养箱中培养4 d。分别挑取单菌落放入YPD液体培养基中,28 ℃、180 r/min恒温振荡培养10~12 h。25 ℃,5 000 r/min条件下离心5 min收集菌体,用无菌水洗涤2~3次,血细胞计数板对酵母进行计数,按1.3.2节设定的接种比例接入模拟葡萄汁。
1.3.2 模拟葡萄汁发酵
对照组:只接种单一的本土S.cerevisiae YC-E8(记为CK)。
混菌发酵组:YC-C13与YC-E8按照细胞数比例为1∶1同时接种发酵(记为SIM 1∶1);YC-C13与YC-E8按照细胞数比例为10∶1同时接种发酵(记为SIM 10∶1);YC-C13与YC-E8 1∶1顺序接种发酵(记为SEQ 1∶1);YC-C13与YC-E8 10∶1顺序接种发酵(记为SEQ 10∶1)。其中接种YC-E8酵母细胞数均为1×10⁶个/mL;接种YC-C13酵母细胞数为1×106个/mL(1∶1)和1×107个/mL(10∶1)。顺序接种发酵即首先接种YC-C13,48 h后接种YC-E8继续发酵。
按照上述接种方式将酵母接种到400 mL过滤除菌的模拟葡萄汁中,放置于25 ℃恒温培养箱中进行发酵,每个实验设置2个平行。发酵过程中每隔24 h监测CO2失重情况并记录,计算发酵后单位时间内CO2的释放量,以CO2失重量为纵坐标,发酵时间为横坐标,绘制CO2失重量曲线。当连续72 h CO2失重不再变化(<1 g)或发酵液残糖<4 g/L视为发酵结束。
1.3.3 酵母生长量测定
在发酵的72 h内,每隔12 h取样1次;发酵72 h后,每隔48 h取样1次。每次取样量为100 μL,并用无菌水进行稀释处理。取100 μL稀释至适当浓度的的稀释液,涂布于WL营养琼脂培养基平板,28 ℃恒温培养3~5 d。WL培养基中含有溴甲酚绿,可根据菌落形态差异进行分类统计并计数,S.bacillaris为“中间奶油色,边缘绿色,扁平状”,S.cerevisiae为“奶油色带绿色,光滑状”[17]。
1.3.4 理化指标测定
参照GB/T 15038—2006《葡萄酒、果酒通用分析方法(含第1号修改单)》,采用密度瓶法测定酒精度,滴定法测定残糖,指示剂滴定法测定可滴定酸(g/L,以酒石酸计),蒸馏-指示剂滴定法测定挥发酸(g/L,以乙酸计)。使用液体样本甘油含量酶法测定试剂盒测定甘油。使用pH计测定pH值。
1.3.5 挥发性香气物质的测定
利用顶空固相微萃取-气相色谱-质谱联用(head space-solid phase microextraction-gas chromatography-mass spectrometry,HS-SPME-GC-MS)技术对香气物质进行提取分析[18]。在20 mL顶空瓶中加入依次加入1.5 g NaCl、5 mL样品和10 μL的4-甲基-2-戊醇(1.008 3 g/L,用色谱级乙醇稀释)作为内标物,密封顶空瓶,置于自动进样器中。在250 ℃下对DVB/CAR/PDMS萃取头老化5 min,样本在40 ℃以250 r/min稳定5 min,将萃取头插入到顶空瓶中进行吸附,在40 ℃以250 r/min吸附30 min,将萃取头插入到GC进样口中,在240 ℃下脱附10 min,进样模式为不分流进样。
GC-MS条件:柱箱温度条件为初始温度50 ℃保持1 min,以3 ℃/min的速率升温至220 ℃,保持5 min。流路载气为纯度≥99.999%的高纯度He,MS传输线温度250 ℃,离子源温度230 ℃,电子能量70 eV,全扫描模式,扫描范围m/z 29~300。
挥发性香气成分的定性与定量分析:根据标样的色谱保留时间和质谱结果,对比NIST 17标准谱库,对模拟汁发酵液的香气物质进行定性分析,通过内标-标准曲线法对香气成分浓度进行全定量分析。
1.4 数据处理与分析
使用Office 2021、SPSS 27软件进行数据统计与分析,使用单因素方差分析(analysis of variance,ANOVA)检验进行显著性分析;使用Origin 2024软件进行绘图。
2 结果与分析
2.1 发酵过程中CO2失重变化
如图1所示,所有发酵用时20 d左右结束,接种后第1天发酵开始启动。CK发酵时间最短,SEQ 1∶1发酵时间最长。在发酵前7 d,CK和SIM 1∶1的CO2失重量基本保持一致;从第7天直至发酵结束,SIM 1∶1 的CO2失重量持续高于CK。SIM 10∶1自发酵15 d起CO2失重量超过CK,并在第16天后超过SIM 1∶1。在整个发酵过程中,SEQ组的CO2失重量始终低于CK和SIM组,其中SEQ 1∶1的CO2失重量最低。
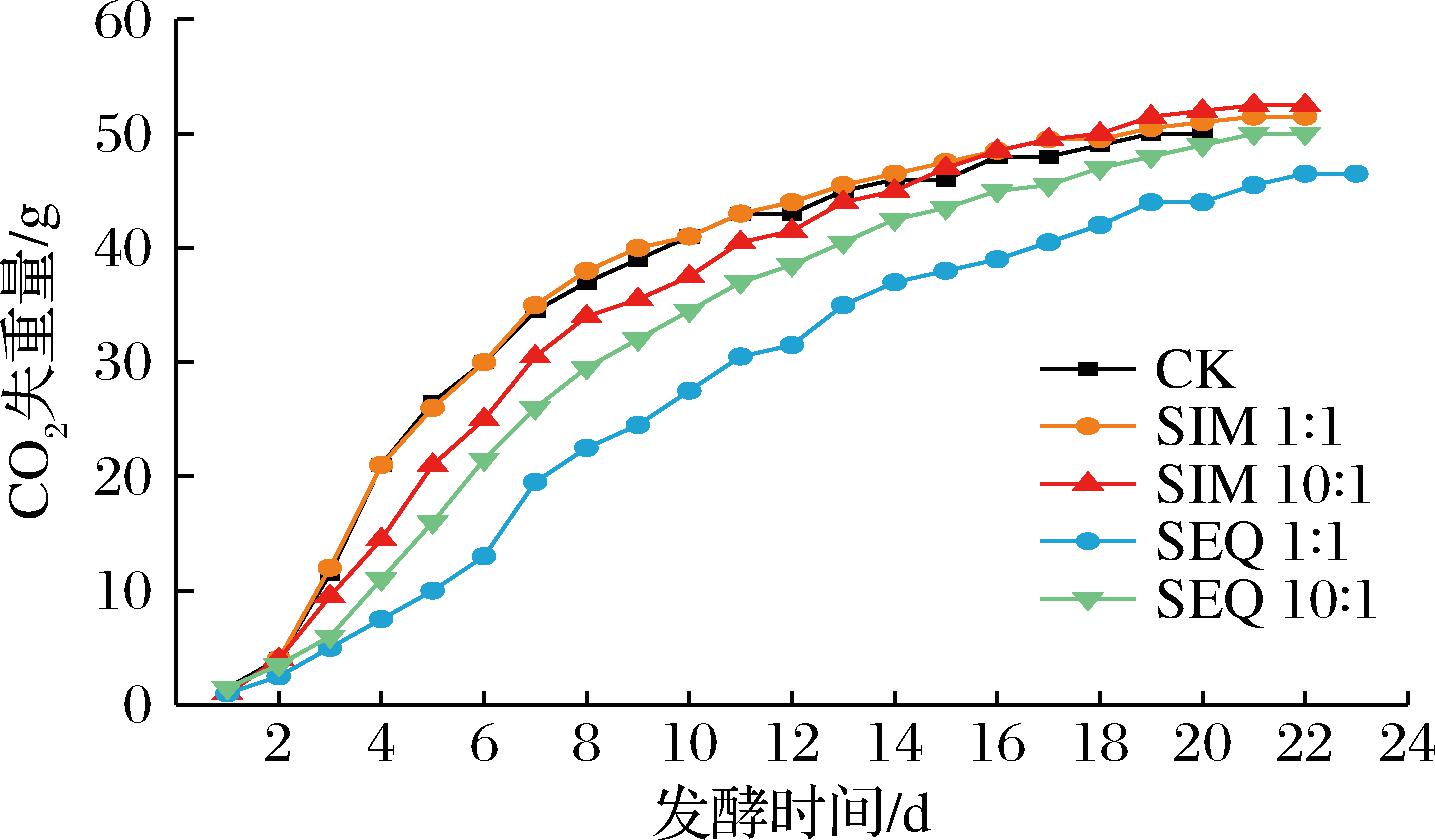
图1 不同接种方式下发酵过程中CO2失重变化
Fig.1 Changes of carbon dioxide weight loss during fermentation under different inoculation methods
2.2 发酵过程中酵母生物量动态变化
如图2-a所示,YC-E8的细胞数量在接种后第1天迅速增加至107 CFU/mL,在第4天细胞数量达到最大值(3.4×107 CFU/mL)。在第6~8天细胞数量保持稳定,随后逐渐下降。在发酵过程中细胞数量虽有波动,但仍具有良好的活力,维持在106 CFU/mL以上。
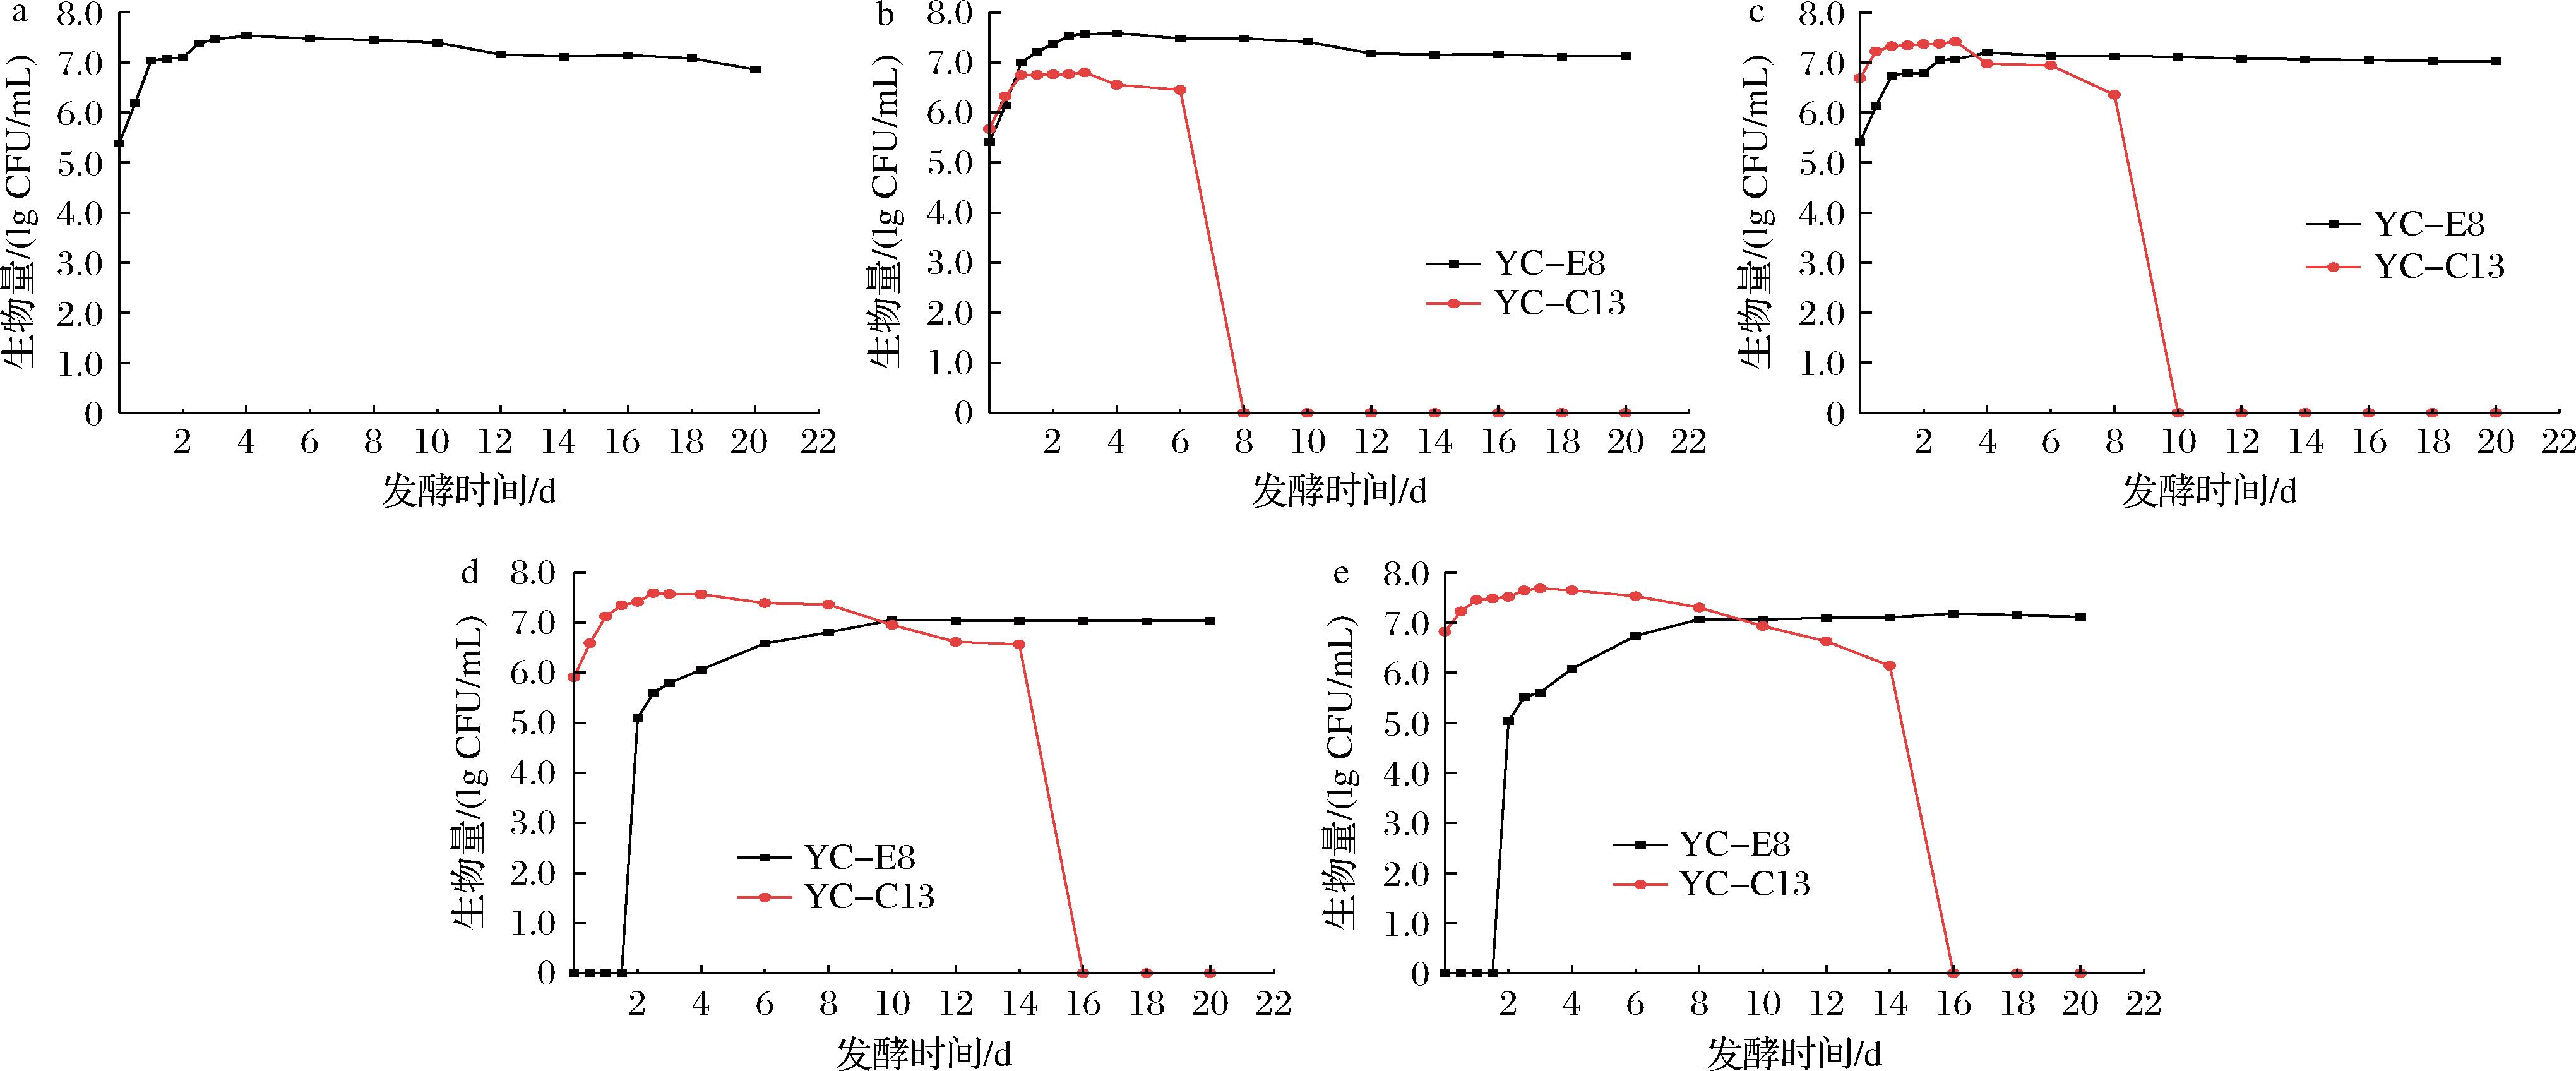
a-CK;b-SIM 1∶1;c-SIM 10∶1;d-SEQ 1∶1;e-SEQ 10∶1
图2 不同接种方式下发酵过程中酵母生物量的动态变化
Fig.2 Dynamic changes of yeast biomass during fermentation under different inoculation methods
由图2-b~图2-e可知,混菌发酵时YC-E8的动态变化趋势与单菌发酵基本一致,SIM组YC-E8的细胞数量在接种后第4天达到峰值,SEQ组YC-E8的细胞数量在接种后第9~10天达到峰值,且细胞数量维持在107 CFU/mL以上。YC-E8在混菌发酵时作为优势菌株,随着发酵的进行优势进一步增强。SIM 1∶1与SIM 10∶1中,YC-E8的细胞数量分别自发酵第1天、第4天起始终高于YC-C13,而YC-C13分别在发酵第8天和第10天完全消失。SEQ组发酵前10 d内YC-C13的细胞数量始终高于YC-E8,发酵10 d 后YC-E8的细胞数量反超YC-C13,并在此后维持相对稳定的数量优势,而YC-C13在发酵第16天完全消失。由此可看出,YC-E8对YC-C13的抑制作用在SIM组更为显著。
2.3 发酵液基本理化指标分析
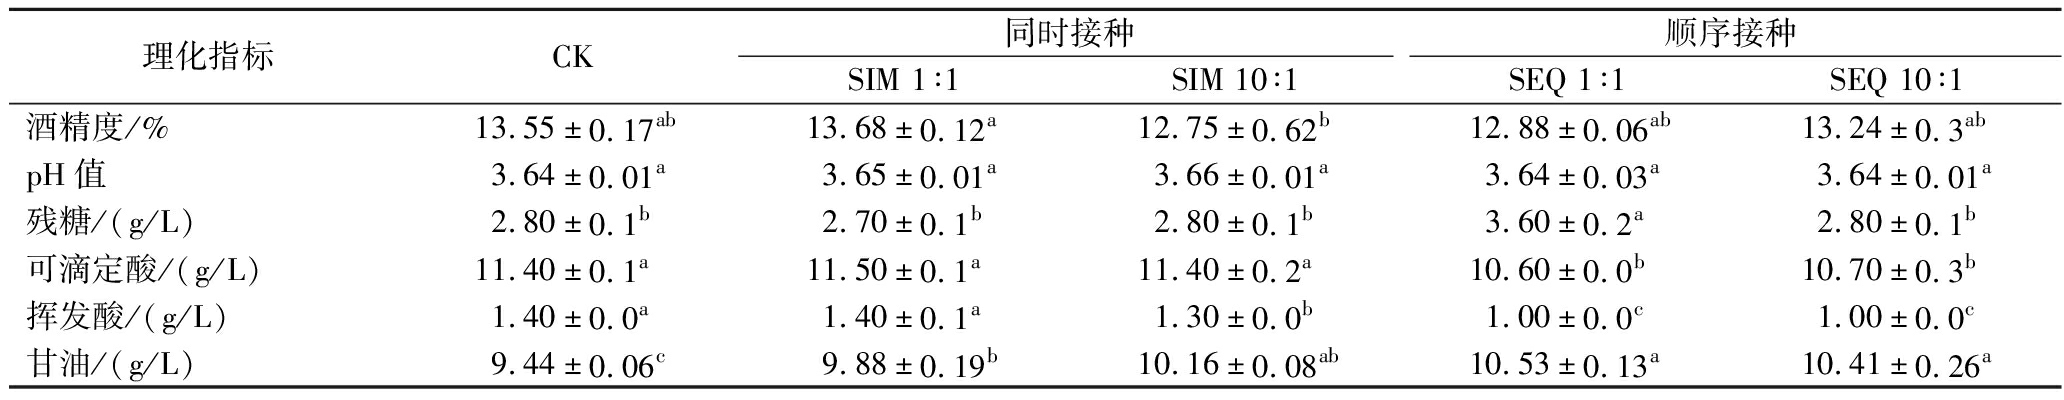
如表1所示,在发酵结束时,所有发酵液的残糖都低于4 g/L。SEQ 1∶1发酵液的残糖最高,为3.6 g/L。所有发酵液的可滴定酸和挥发酸含量在10.6~11.5 g/L 和1.0~1.4 g/L,并发现顺序接种发酵可以显著降低可滴定酸和挥发酸含量。其中SEQ 1∶1发酵液的可滴定酸和挥发酸含量与CK相比显著降低了0.8、0.4 g/L。所有发酵液的pH值在3.64~3.66,差异不显著。所有发酵液的酒精度在12.75%~13.68%,其中SIM 10∶1、SEQ 1∶1和SEQ 10∶1发酵液的酒精度均低于CK,尤其是SIM 10∶1降醇效果最显著,降低了0.8%,表明混菌发酵有助于降低发酵液的乙醇含量。乙醇含量的减少可能是一些非S.cerevisiae由于其代谢的特异性而在发酵过程中生成更多的甘油、多糖、高级醇及酯等物质[1]。甘油是酵母菌发酵过程中重要的代谢副产物,本研究发现CK发酵液的甘油含量最低,为9.44 g/L,混菌处理组发酵液的甘油含量在9.88~10.53 g/L,显著高于CK。其中SEQ 1∶1发酵液的甘油含量最高,SIM 1∶1发酵液的甘油含量最低,与CK相比,显著提高了1.09、0.44 g/L。结果表明,混菌发酵能显著提高发酵液的甘油含量,且不同接种方式对甘油含量的影响存在显著差异,其中顺序接种发酵在提升甘油含量方面更具优势。
表1 不同接种方式下发酵模拟葡萄汁的基础理化指标
Table 1 Basic physicochemical indexes of simulated grape juice under different inoculation methods
理化指标CK同时接种顺序接种SIM 1∶1SIM 10∶1SEQ 1∶1SEQ 10∶1酒精度/%13.55±0.17ab13.68±0.12a12.75±0.62b12.88±0.06ab13.24±0.3abpH值3.64±0.01a3.65±0.01a3.66±0.01a3.64±0.03a3.64±0.01a残糖/(g/L)2.80±0.1b2.70±0.1b2.80±0.1b3.60±0.2a2.80±0.1b可滴定酸/(g/L)11.40±0.1a11.50±0.1a11.40±0.2a10.60±0.0b10.70±0.3b挥发酸/(g/L)1.40±0.0a1.40±0.1a1.30±0.0b1.00±0.0c1.00±0.0c甘油/(g/L)9.44±0.06c9.88±0.19b10.16±0.08ab10.53±0.13a10.41±0.26a
注:同一行中不同小写字母代表有显著差异(P<0.05)。
2.4 挥发性成分分析
采用GC-MS对模拟葡萄汁发酵液的挥发性香气成分进行分析,共检测出63种挥发性化合物,其中包括酯类物质24种、醇类物质8种、酸类物质7种、醛酮类物质13种及其他化合物11种。
酯类化合物主要在发酵过程中由微生物代谢活动生成,随着发酵的进行,酯类化合物的逐渐积累会带来宜人的花香和果香,增加香气复杂性[19]。由电子版增强出版附表1(https://doi.org/10.13995/j.cnki.11-1802/ts.045236,下同)可知,本研究所有处理组的酯类物质种类在17~20种,总含量在113 303.97~156 207.84 μg/L。如图3-a所示,SIM 1∶1发酵液的酯类物质质量浓度最高,为156 207.84 μg/L;其中SIM 10∶1发酵液的酯类物质种类最丰富,为20种。其中大部分酯类物质的含量都高于其阈值。通过附表1可以看出,乙酸乙酯(果香、甜味、指甲油)是所有发酵液中含量最高的酯类物质。乙酸异戊酯、正己酸乙酯与丁二酸二乙酯的气味活性值(odor activity value,OAV)均>1,其中乙酸异戊酯呈香蕉果香,正己酸乙酯呈苹果果香,丁二酸二乙酯呈水果清香。CK和SIM组的正己酸乙酯和丁二酸二乙酯的含量均高于SEQ组。SIM 1∶1发酵液的乙酸异戊酯含量最高,为8 636.99 μg/L,SEQ 1∶1含量最低,为1 618.65 μg/L。由此可发现发酵液中乙酸异戊酯的含量与接种时间和接种比例均有关系。

a-酯类物质;b-醇类物质;c-酸类物质;d-醛酮类物质;c-其他类物质
图3 不同接种方式下发酵模拟葡萄汁的挥发性成分含量
Fig.3 Contents of volatile compounds in fermented simulated grape juice under different inoculation methods
注:不同小写字母表示组间的显著性差异(P<0.05)。
醇类物质是酵母在发酵过程中产生的次级代谢物,不仅对发酵体系的香气有贡献,同时也是具有独特气味的挥发性酯类的前体[20]。由附表1可知,所有发酵液的醇类物质主要包括2-十六烷醇、异戊醇、2,3-丁二醇、苯乙醇、异丁醇、2-乙基己醇、1-辛醇,还有3-甲硫基丙醇,总含量在926 722.38~1 804 485.34 μg/L。其中SIM 1∶1醇类化合物种类最多(7种),SEQ 10∶1次之(6种),CK和SEQ 1∶1最少(4种)。本研究中含量最高的醇类物质是具有果香、奶油味的2,3-丁二醇,其次是具有威士忌、香蕉味的异戊醇。与CK相比,SIM 10∶1、SEQ 1∶1和SEQ 10∶1发酵液的2,3-丁二醇的含量显著增加,异戊醇的含量显著减少。如图3-b所示,SEQ 1∶1发酵液的醇类物质质量浓度最高,其次为SEQ 10∶1,CK最低,且不同接种方式下发酵液的醇类物质总含量具有显著差异。SIM组中检测出特有的1-辛醇(浓郁柑橘味、玫瑰味);SIM 1∶1发酵液检测出了特有的2-乙基己醇(蘑菇味、甜味、果味);SEQ 10∶1发酵液检测出了特有的3-甲硫基丙醇(硫化味、洋葱味)。
酸类物质在调节酸度和口感方面起着至关重要的作用,浓度适中时可赋予柔和、细腻的风味,而浓度过高则会产生刺鼻气味和令人不悦的醋味[5]。由附表1可知,本研究共检测出7种挥发性酸类物质,包括乙酸、辛酸、脱氢乙酸、癸酸、2-甲基己酸、己酸、17-十八炔酸等。所有发酵液中均检测出辛酸,在CK、SIM 1∶1、SIM 10∶1、SEQ 1∶1中OAV>1;仅在SEQ 10∶1发酵液中检测出己酸,且OAV>1。由图3-c可以看出,SEQ 1∶1发酵液的酸类物质质量浓度显著高于其他4个处理组,乙酸是酸类物质中含量占比最高的挥发酸。
不同发酵液的醛酮类和其他类物质的总含量有显著差异。如图3-d所示,SIM 1∶1发酵液的醛酮类物质质量浓度最高,其次为CK和SEQ 1∶1,SIM 10∶1最低。通过图3-e可以看出,SIM 1∶1发酵液的其他类物质质量浓度最高,其次为CK,SEQ 1∶1最低。此外,由附表1可知,OAV>1的醛酮类物质只有SEQ 1∶1发酵液中的壬醛。所有发酵液均检测出具有甜橙、柑橘香气的正辛醛,仅在SEQ组中检测出苯甲醛和芳樟醇,使发酵液的苦杏仁、玫瑰花香、柑橘香等香气显著增加。
挥发性化合物对香气的贡献通常通过OAV来衡量。一般来说OAV>1的香气物质对发酵体系的整体香气特征有重要贡献,OAV在0.1~1.0的挥发性化合物虽不能直接影响整体香气特征,但可通过与其他挥发性化合物协同或抑制发挥作用[21]。本研究共筛选出22种OAV>0.1的挥发性化合物,并进行热图聚类分析,如图4所示。将不同接种方式下发酵模拟葡萄汁的香气聚为3类,第一类包括CK和SIM 10∶1;第二类包括SIM 1∶1;第三类包括SEQ 1∶1和SEQ 10∶1。CK发酵液中乙酸乙酯、癸酸、癸酸乙酯含量较高,SIM 1∶1发酵液中乙酸乙酯、丁二酸二乙酯、正已酸乙酯、1-辛醇、乙酸异戊酯、乙酸苯乙酯、异戊醇、苯乙醇和异丁醇含量更高;SEQ 1∶1发酵液中丁酸乙酯、2,3-丁二醇、壬醛和乙酸含量较高;SEQ 10∶1发酵液中异丁醇、丁酸乙酯、正辛醛、己酸和芳樟醇含量较高。由此可见,不同接种方式下发酵模拟葡萄汁的挥发性化合物的种类和含量存在显著差异,进而赋予各处理组独特的风味特征。
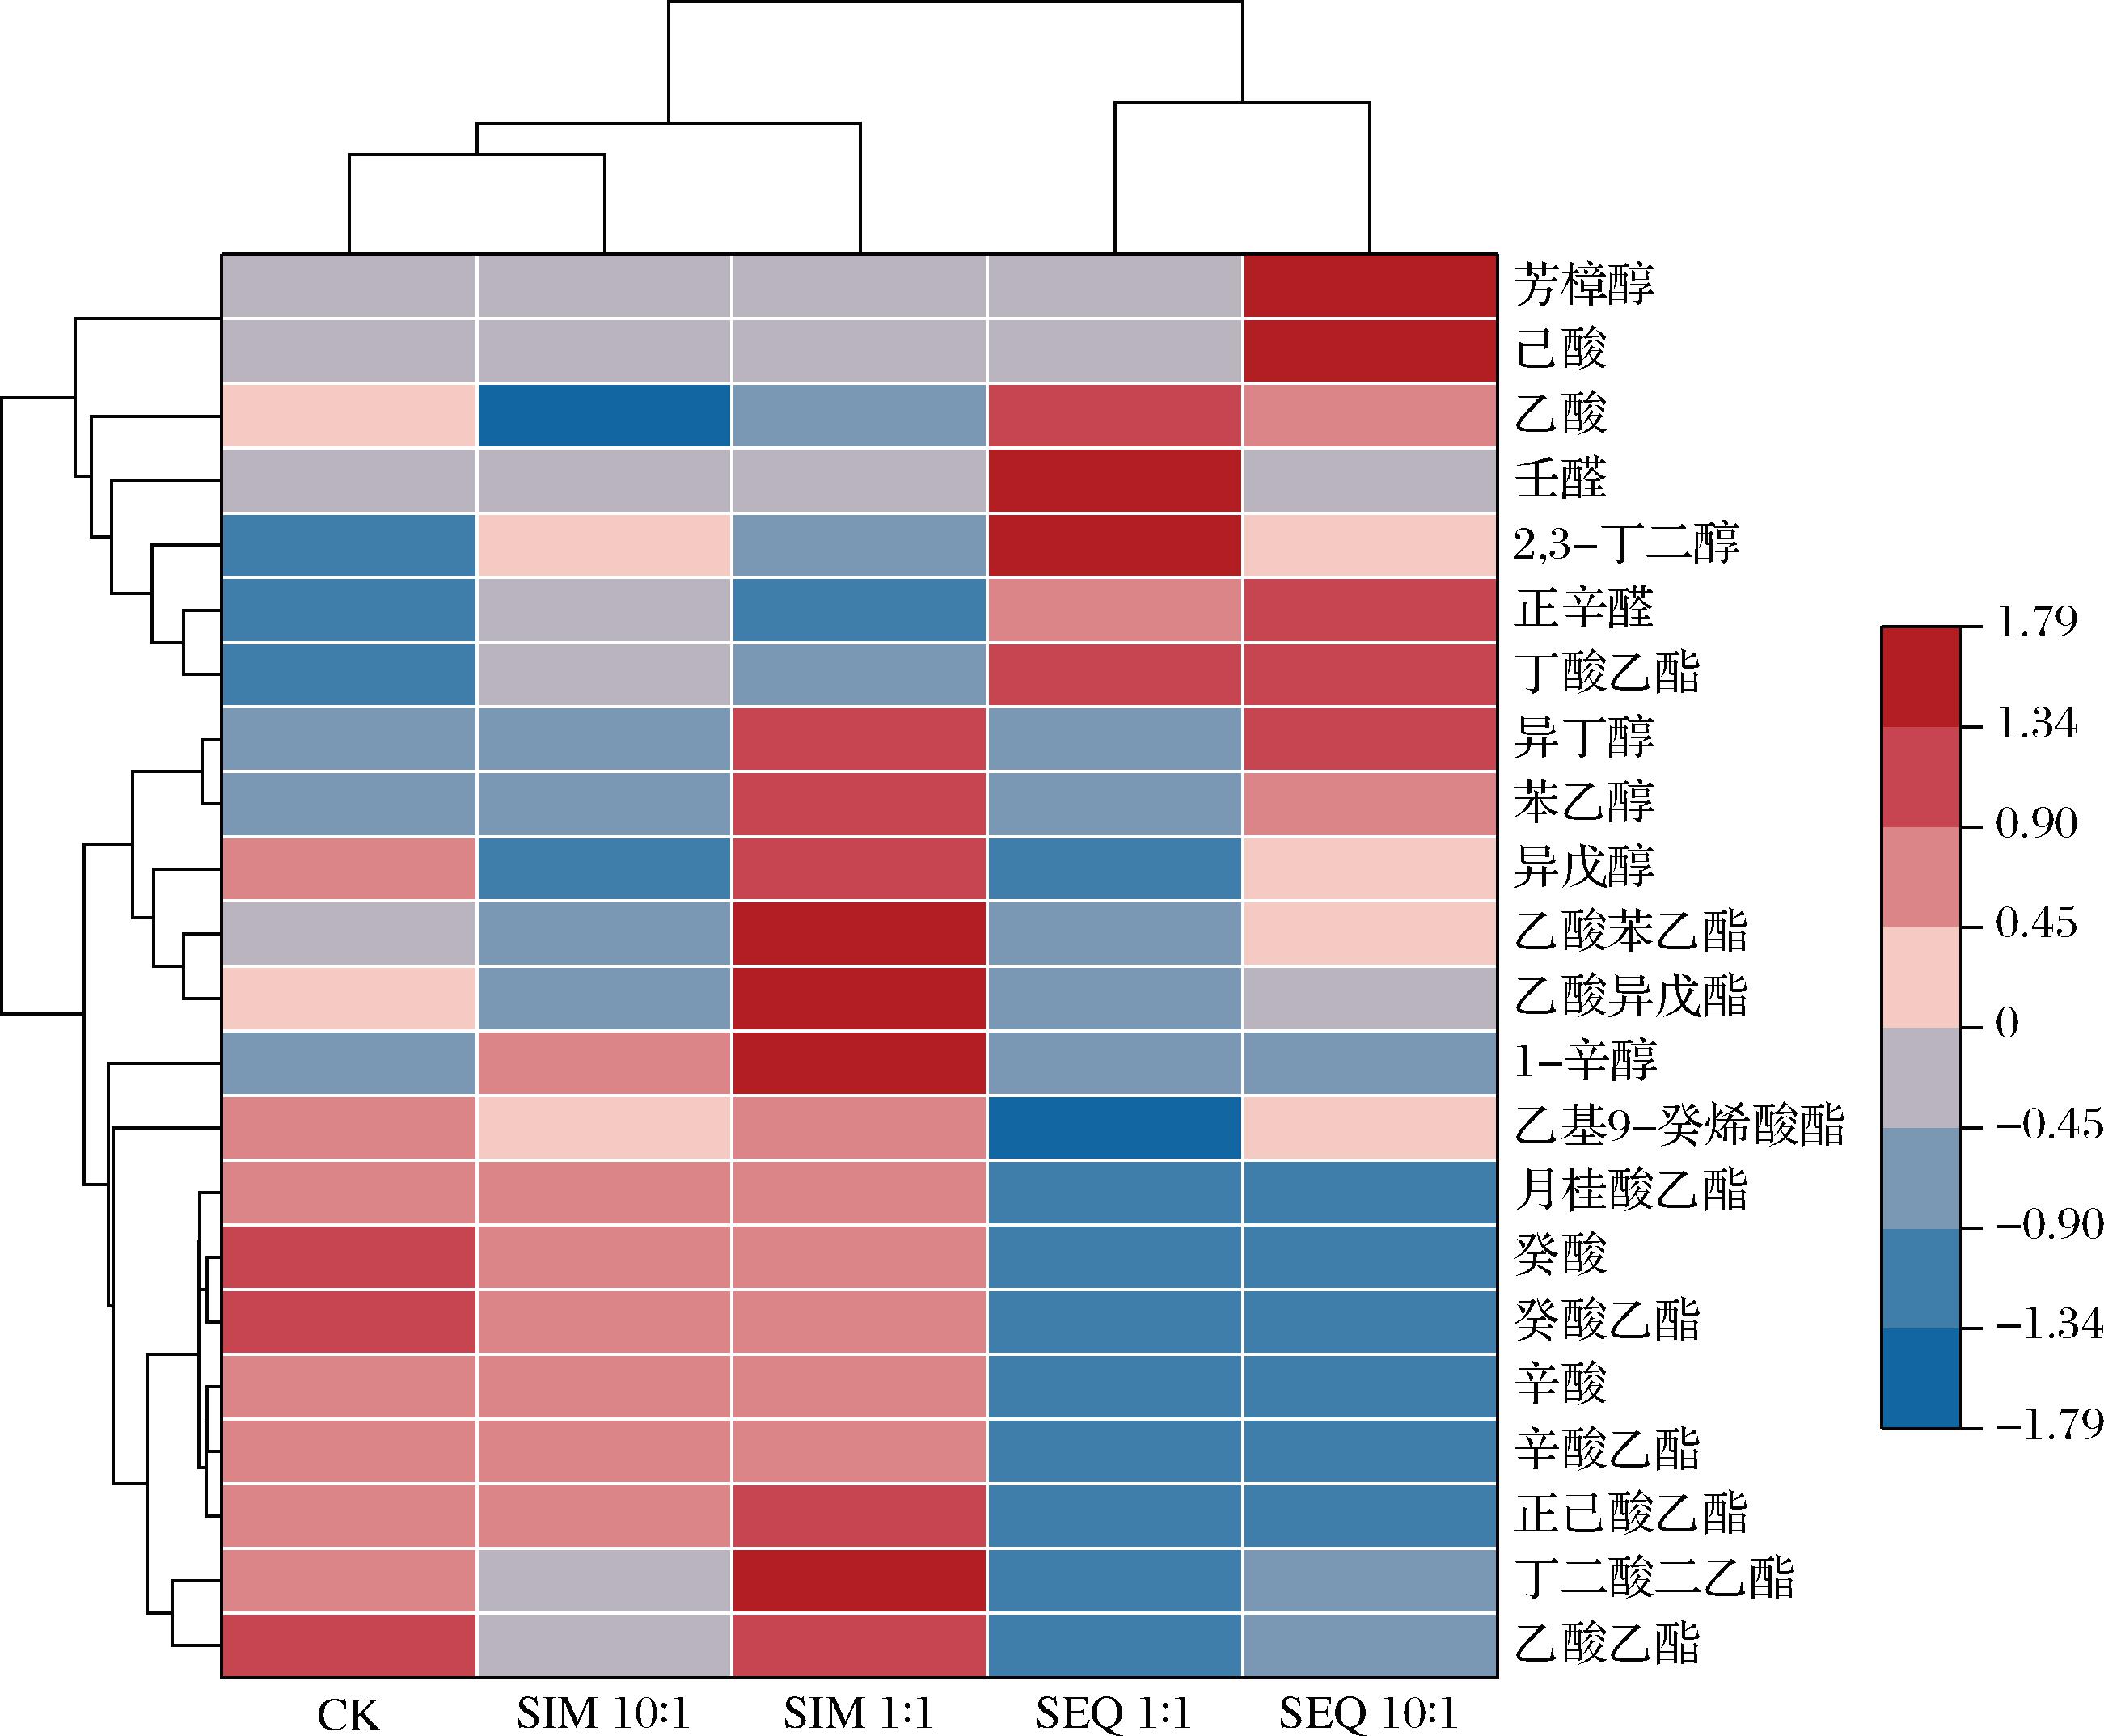
图4 不同接种方式下发酵模拟葡萄汁的挥发性成分聚类分析热图
Fig.4 Clustering heatmap of volatile components in fermented simulated grape juice under different inoculation methods
为了更直观地呈现不同接种方式下发酵模拟葡萄汁挥发性香气成分的差异,对所有OAV>0.1的22种挥发性香气成分进行主成分分析(principal component analysis,PCA)。如图5所示,PC1与PC2分别占数据总体方差的61.0%和22.7%,总贡献率为83.7%。由于接种时间和接种比例的不同,各处理组在图5上有着不同分布,区分明显。由图5可知,CK和SIM 10∶1发酵液共同聚集在PC1的正方向,与辛酸乙酯、正己酸乙酯、癸酸乙酯、月桂酸乙酯、辛酸、癸酸的生成相关联。图5第一象限的特征香气最多,果香与花香突出,包括5种酯和4种醇,与SIM 1∶1(PC1的正方向,PC2的正方向)发酵液具有强相关性。其中,乙酸乙酯、乙酸异戊酯、丁二酸二乙酯、异戊醇赋予发酵液丰富的果香和甜香;苯乙醇、1-辛醇、乙酸苯乙酯赋予发酵液蜂蜜、柑橘、玫瑰香气等。SEQ 1∶1发酵液分布在PC2的负方向,PC1的负方向,与2,3-丁二醇和壬醛相关联,这2种挥发性香气成分可能赋予发酵液柑橘、果香和奶油的香气特征。SEQ 10∶1发酵液分布在PC2的正方向,PC1的负方向,主要与己酸、乙酸、芳樟醇、正辛醛、丁酸乙酯相关联,赋予发酵液酸香底调、清新花香、柑橘气息、酯香果香及甜润感。研究结果显示不同接种方式发酵液的挥发性香气成分之间存在显著差异。
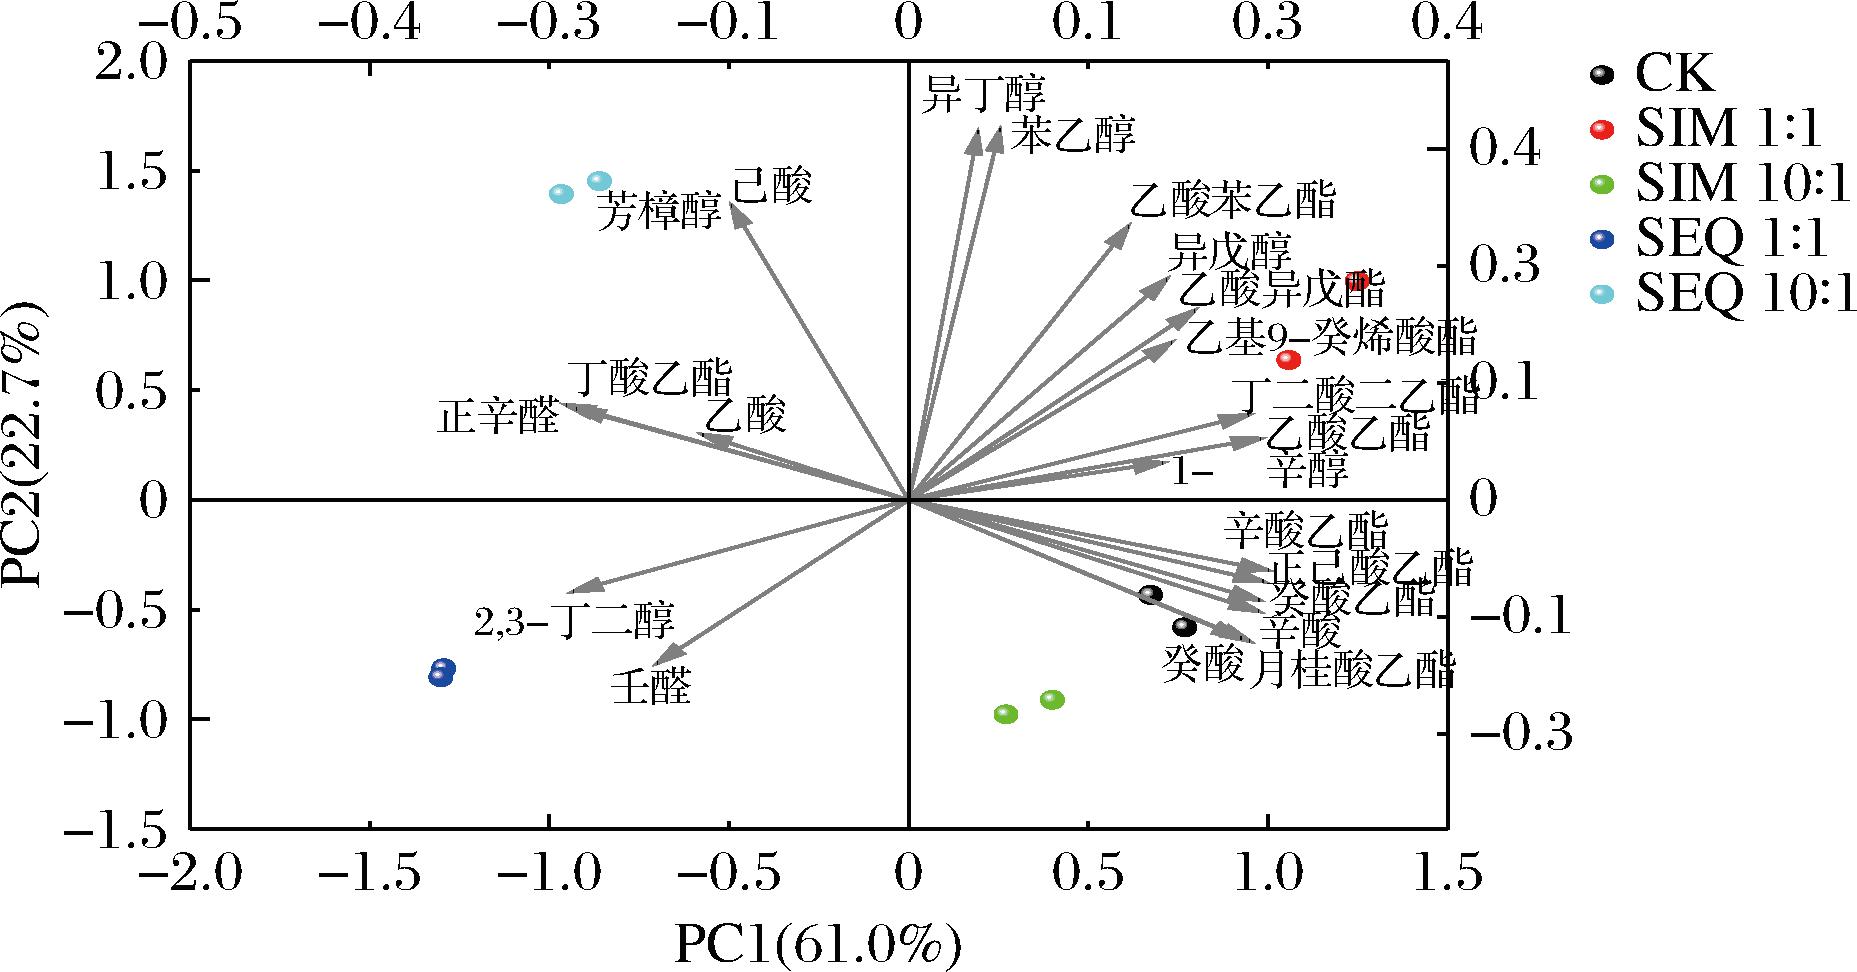
图5 不同接种方式下发酵模拟葡萄汁OAV>0.1的挥发性化合物PCA
Fig.5 PCA of volatile compounds with OAV>0.1 in fermented simulated grape juice under different inoculation methods
3 结论与讨论
近年来,人们越来越关注使用S.cerevisiae和非S.cerevisiae的混合发酵,以提高香气复杂性并减弱由非S.cerevisiae纯种发酵引起的不良风味,改变发酵产品的化学组成(例如,增加甘油含量、降低乙酸水平、减少乙醇产量)[22-23]。Englezos等[4]使用S.cerevisiae 与S.bacillaris混菌发酵时,S.cerevisiae单菌发酵时间较顺序接种发酵缩短5 d。在本研究中有相似结果,S.cerevisiae YC-E8单菌发酵较混菌发酵缩短2~3 d。S.bacillaris的存在并未对S.cerevisiae主导的发酵产生不利影响,在发酵初期表现出良好的发酵动力学特性,能够有效参与初期代谢活动,而随着发酵进程推进至终点阶段,其细胞数量显著减少乃至完全消失。S.bacillaris的消失可能与其乙醇耐受性低有关,也可能是因为除乙醇外,还产生了其他对生长有影响的化合物[9]。SIM组的发酵时间短于SEQ组,这可能是由于同时接种时S.cerevisiae的糖消耗速率增加所致[24]。
Li等[7]采用本土S.bacillaris MSPL08004和商业S.cerevisiae EC1118顺序接种发酵,可显著降低乙醇含量。本研究通过对比不同接种方式发现,混菌发酵可降低发酵液的乙醇含量,且SIM 10∶1降醇效果最显著,这与Li等[7]研究结果一致。甘油在酵母发酵过程中起着重要的生理作用,一定的甘油水平可保持酵母细胞的渗透平衡和氧化还原平衡,促进发酵的启动[25]。Hong等[13]研究表明,S.bacillaris和S.cerevisiae混菌发酵的甘油含量与S.cerevisiae单菌发酵相比,显著增加1.16、1.24 g/L。Nisiotou等[26]发现S.bacillaris与本土S.cerevisiae顺序接种发酵时,甘油含量显著高于商业S.cerevisiae和本土S.cerevisiae单菌发酵,甘油含量是本土S.cerevisiae的1.88倍,是商业S.cerevisiae的1.97倍。本研究发现S.bacillaris和S.cerevisiae混菌发酵的甘油含量显著高于CK,这与Hong等[13]、Nisiotou等[26]研究结果一致。
不同接种方式下发酵模拟葡萄汁的挥发性成分存在显著差异。Li等[7]研究发现,S.bacillaris与S.cerevisiae EC1118同时接种发酵产生的丁酸乙酯的含量显著高于S.bacillaris和S.cerevisiae EC1118单菌发酵。本研究发现,与CK相比,混菌发酵显著增加丁酸乙酯的含量,这与Li等[7]研究结果一致。Englezos等[11]研究表明S.bacillaris和S.cerevisiae同时接种发酵产生的正己酸乙酯、庚酸乙酯、乙酸己酯、辛酸乙酯的含量显著高于顺序接种发酵;而顺序接种发酵产生的乙酸乙酯、2-苯乙酸乙酯、十二酸乙酯含量显著高于同时接种发酵。本研究发现,SIM组中5种酯类物质含量显著高于SEQ组;SIM 1∶1发酵液中4种酯类物质含量显著高于CK及其他处理组。由此可知在混菌发酵过程中,S.cerevisiae的接种时间对酯类物质的生成也有直接影响,这与Englezos等[11]的研究结果一致。醇类物质主要通过酵母的氨基酸代谢和糖代谢形成,在酒精发酵过程中,酵母通过埃利希途径分别将缬氨酸和亮氨酸转化为异丁醇和异戊醇。Englezos等[24]研究发现S.bacillaris和商业S.cerevisiae D254顺序接种发酵产生的异戊醇的含量低于商业S.cerevisiae D254单菌发酵,异丁醇的含量显著高于商业S.cerevisiae D254单菌发酵。本研究发现,与CK相比,SEQ 10∶1发酵液中异丁醇显著增加,而异戊醇显著减少,这与Englezos等[24]的研究结果一致。Listur等[27]以模拟葡萄汁为发酵基质,发现S.cerevisiae单菌发酵未检测到芳樟醇,而S.bacillaris与S.cerevisiae混菌发酵显著提升芳樟醇的含量。本研究发现仅在SEQ组中检测到芳樟醇,这与Listur等[27]的研究结果一致。此外,混菌发酵液的正辛醛含量显著高于CK,SEQ 10∶1发酵液中检测出特有的己酸。以上研究结果表明,混菌发酵的接种方案对发酵液香气有特异性贡献,S.cerevisiae单菌发酵香气单一,而与S.bacillaris 混菌发酵能够通过释放更多香气前体物质[28],提高酯类、醇类物质含量、调节香气物质组成,赋予发酵液更浓郁的花香、果香和柑橘香。
综上所述,SIM 10∶1显著降低发酵液的乙醇含量;顺序接种发酵显著降低发酵液的可滴定酸、挥发酸含量;混菌发酵显著增加发酵液的甘油含量,其中顺序接种发酵在提升甘油含量方面表现出更强的潜力。从产香特性来看,SIM 1∶1 发酵液的香气物质以酯类和醇类为主;而SEQ 10∶1能够调控发酵液中香气物质的组成,进一步丰富醇类、酸类、醛酮类及其他类香气物质的种类。本研究为本土酵母在混菌发酵中的应用提供理论依据。
[1] Azzolini M, Fedrizzi B, Tosi E, et al.Effects of Torulaspora delbrueckii and Saccharomyces cerevisiae mixed cultures on fermentation and aroma of Amarone wine[J].European Food Research and Technology, 2012, 235(2):303-313.
[2] Perpetuini G, Rossetti A P, Tittarelli F, et al.Promoting Candida zemplinina adhesion on oak chips:A strategy to enhance esters and glycerol content of Montepulciano d’Abruzzo organic wines[J].Food Research International, 2021, 150(PA):110772.
[3] Junior W J F L, Da Silva Duarte V, Treu L, et al.Whole genome comparison of two Starmerella bacillaris strains with other wine yeasts uncovers genes involved in modulating important winemaking traits[J].FEMS Yeast Research, 2018, 18(7):foy069.
[4] Englezos V, Rantsiou K, Cravero F, et al.Volatile profile of white wines fermented with sequential inoculation of Starmerella bacillaris and Saccharomyces cerevisiae[J].Food Chemistry, 2018, 257:350-360.
[5] Sun W S, Chen X W, Feng S N, et al.Effect of sequential fermentation with indigenous non-Saccharomyces cerevisiae combinations and Saccharomyces cerevisiae on the chemical composition and aroma compounds evolution of kiwifruit wine[J].Food Chemistry, 2024, 460(P3):140758.
[6] Domizio P, Liu Y, Bisson L F, et al.Use of non-Saccharomyces wine yeasts as novel sources of mannoproteins in wine[J].Food Microbiology, 2014, 43:5-15.
[7] Li R R, Liu Y J, Zheng J, et al.Oenological characteristics of two indigenous Starmerella bacillaris strains isolated from Chinese wine regions[J].Applied Microbiology and Biotechnology, 2023, 107(11):3717-3727.
[8] Russo P, Tufariello M, Renna R, et al.New insights into the oenological significance of Candida zemplinina:Impact of selected autochthonous strains on the volatile profile of Apulian wines[J].Microorganisms, 2020, 8(5):628.
[9] Etofalo R, Epatrignani F, Elanciotti R, et al.Aroma profile of Montepulciano d’Abruzzo wine fermented by single and co-culture starters of autochthonous Saccharomyces and non-Saccharomyces yeasts[J].Frontiers in Microbiology, 2016, 7:610.
[10] Zara G, Mannazzu I, Caro A D, et al.Wine quality improvement through the combined utilisation of yeast hulls and Candida zemplinina/Saccharomyces cerevisiae mixed starter cultures[J].Australian Journal of Grape and Wine Research, 2014, 20(2):199-207.
[11] Englezos V, Torchio F, Cravero F, et al.Aroma profile and composition of Barbera wines obtained by mixed fermentations of Starmerella bacillaris (synonym Candida zemplinina) and Saccharomyces cerevisiae[J].LWT, 2016, 73:567-575.
[12] Binati R L, Junior W J F L, Luzzini G, et al.Contribution of non- Saccharomyces yeasts to wine volatile and sensory diversity:A study on Lachancea thermotolerans, Metschnikowia spp.and Starmerella bacillaris strains isolated in Italy[J].International Journal of Food Microbiology, 2020, 318:108470.
[13] Hong M N, Li J, Chen Y W, et al.Impact of mixed non-Saccharomyces yeast during fermentation on volatile aroma compounds of Vidal blanc icewine[J].LWT, 2021, 145:111342.
[14] 王媛, 臧亚杰, 徐彬艳, 等.多菌种酵母混菌乙醇发酵特性分析[J].食品科学, 2025, 46(14):93-102.Wang Y, Zang Y J, Xu B Y, et al.Alcohol fermentation characteristics of mixed yeast cultures[J].Food Science, 2025, 46(14):93-102.
[15] Bely M, Sablayrolles J M, Barre P.Automatic detection of assimilable nitrogen deficiencies during alcoholic fermentation in oenological conditions[J] Journal of Fermentation and Bioengineering, 1990, 70(4):246-252.
[16] Rossouw D, Bauer F F.Comparing the transcriptomes of wine yeast strains:Toward understanding the interaction between environment and transcriptome during fermentation[J].Applied Microbiology and Biotechnology, 2009, 84(5):937-954.
[17] 夏鸿川, 张众, 孙丽君, 等.混菌发酵对贺兰山东麓‘赤霞珠’干红葡萄酒香气的影响[J].食品科学, 2022, 43(14):165-175.Xia H C, Zhang Z, Sun L J, et al.Effect of mixed culture fermentations on the aroma compounds of ‘Cabernet Sauvignon’ dry red wine produced in the Eastern Foothill of Helan Mountain[J].Food Science, 2022, 43(14):165-175.
[18] 王征, 杨慧, 张众, 等.自然发酵对“赤霞珠”葡萄酒香气物质及理化性质的影响[J].中国食品学报, 2024, 24(12):372-386.Wang Z, Yang H, Zhang Z, et al.Effects of natural fermentation of Cabernet Sauvignon wine on aroma component and physicochemical properties[J].Journal of Chinese Institute of Food Science and Technology, 2024, 24(12):372-386.
[19] Ma Y W, Peng S, Mi L, et al.Correlation between fungi and volatile compounds during different fermentation modes at the industrial scale of Merlot wines[J].Food Research International, 2023, 174(P2):113638.
[20] 张梦琪, 贾岐乾, 梁棋山, 等.工业规模黑比诺葡萄酒自然发酵中微生物多样性与主要挥发性香气化合物相关性分析[J].食品科学, 2025, 46(13):94-104.Zhang M Q, Jia Q Q, Liang Q S, et al.Correlation between microbial diversity and major volatile aroma compounds during spontaneous fermentation of Pinot Noir wine at industrial scale[J].Food Science, 2025, 46(13):94-104.
[21] Yang L, Zhu X, Mao Y L, et al.Effect of different inoculation strategies of mixed culture Saccharomyces cerevisiae/Oenococcus oeni on the aroma quality of chardonnay wine[J].Food Research International, 2024, 190:114636.
[22] Han B, Tang Y Y, Xie Y D, et al.Use of Starmerella bacillaris and Hanseniaspora uvarum sequential fermentation with Saccharomyces cerevisiae to reduce putrescine and cadaverine and improve aroma profiles of wines[J].Food Research International, 2025, 210:116409.
[23] Chen Y T, Wang C X, Zhang Z Y, et al.Enhancing fruity aroma of Cabernet Sauvignon wine by mixed culture fermentation with Schizosaccharomyces japonicus, Saccharomyces cerevisiae, and Starmerella bacillaris[J].Food Microbiology, 2025, 132:104846.
[24] Englezos V, Pollon M, Rantsiou K, et al.Saccharomyces cerevisiae-Starmerella bacillaris strains interaction modulates chemical and volatile profile in red wine mixed fermentations[J].Food Research International, 2019, 122:392-401.
[25] Zhao X D, Susanne P, Thomas B.Flavor impacts of glycerol in the processing of yeast fermented beverages:A review[J].Journal of Food Science and Technology, 2015, 52(12):7588-7598.
[26] Nisiotou A, Sgouros G, Mallouchos A, et al.The use of indigenous Saccharomyces cerevisiae and Starmerella bacillaris strains as a tool to create chemical complexity in local wines[J].Food Research International, 2018, 111:498-508.
[27] Listur M B, Mart N V, Medina K, et al.A novel approach for enhancing the terpenoid content in wine using Starmerella bacillaris[J].Fermentation, 2025, 11(9):496.
[28] Tofalo R, Perpetuini G, Rossetti A P, et al.Impact of Saccharomyces cerevisiae and non-Saccharomyces yeasts to improve traditional sparkling wines production[J].Food Microbiology, 2022, 108:104097.