L-异亮氨酸(L-isoleucine,L-Ile)作为人体必需三大支链氨基酸之一[1-2],具有调节血糖、增强肌肉、缓解脑昏迷、贫血和代谢综合症状等潜在作用[3],在医药、食品及饲料工业中具有广泛应用[4-5]。相较于提取法和化学合成法,微生物发酵法因其条件温和、成本低廉而成为工业生产L-Ile的主要方法[6],主要微生物有大肠杆菌(Escherichia coli)和谷氨酸棒状杆菌等。E.coli作为重要的工业微生物,能够直接利用葡萄糖合成L-Ile[7],葡萄糖经一系列反应生成草酰乙酸,经天冬氨酸、高丝氨酸、苏氨酸、2-酮丁酸后与丙酮酸在乙酰羟基酸合酶的作用下共同合成L-Ile,如图1所示。因此,丙酮酸既是2-酮丁酸生成所需的还原力供体,也是乙酰羟酸合酶催化的关键底物,是L-Ile以及其他支链氨基酸合成的“双功能前体”,但其也是L-丙氨酸(L-alanine,L-Ala)合成的直接供体[8]。在L-Ile合成过程中L-Ala的大量生成消耗碳源,过量积累也会干扰目标产物L-Ile的下游分离纯化[9-10],更会竞争性减少L-Ile合成所必需的前体草酰乙酸和2-酮丁酸[11],从而导致L-Ile产量下降。近年来,尽管通过系统代谢工程、解除反馈抑制、强化合成途径、优化关键酶表达、转运蛋白改造及动态调控等策略[6]对L-Ile生产菌的改造已使其产量攀升至56.6 g/L[11],但副产物L-Ala的大量生成仍然限制了L-Ile的高效合成与后续分离提取。
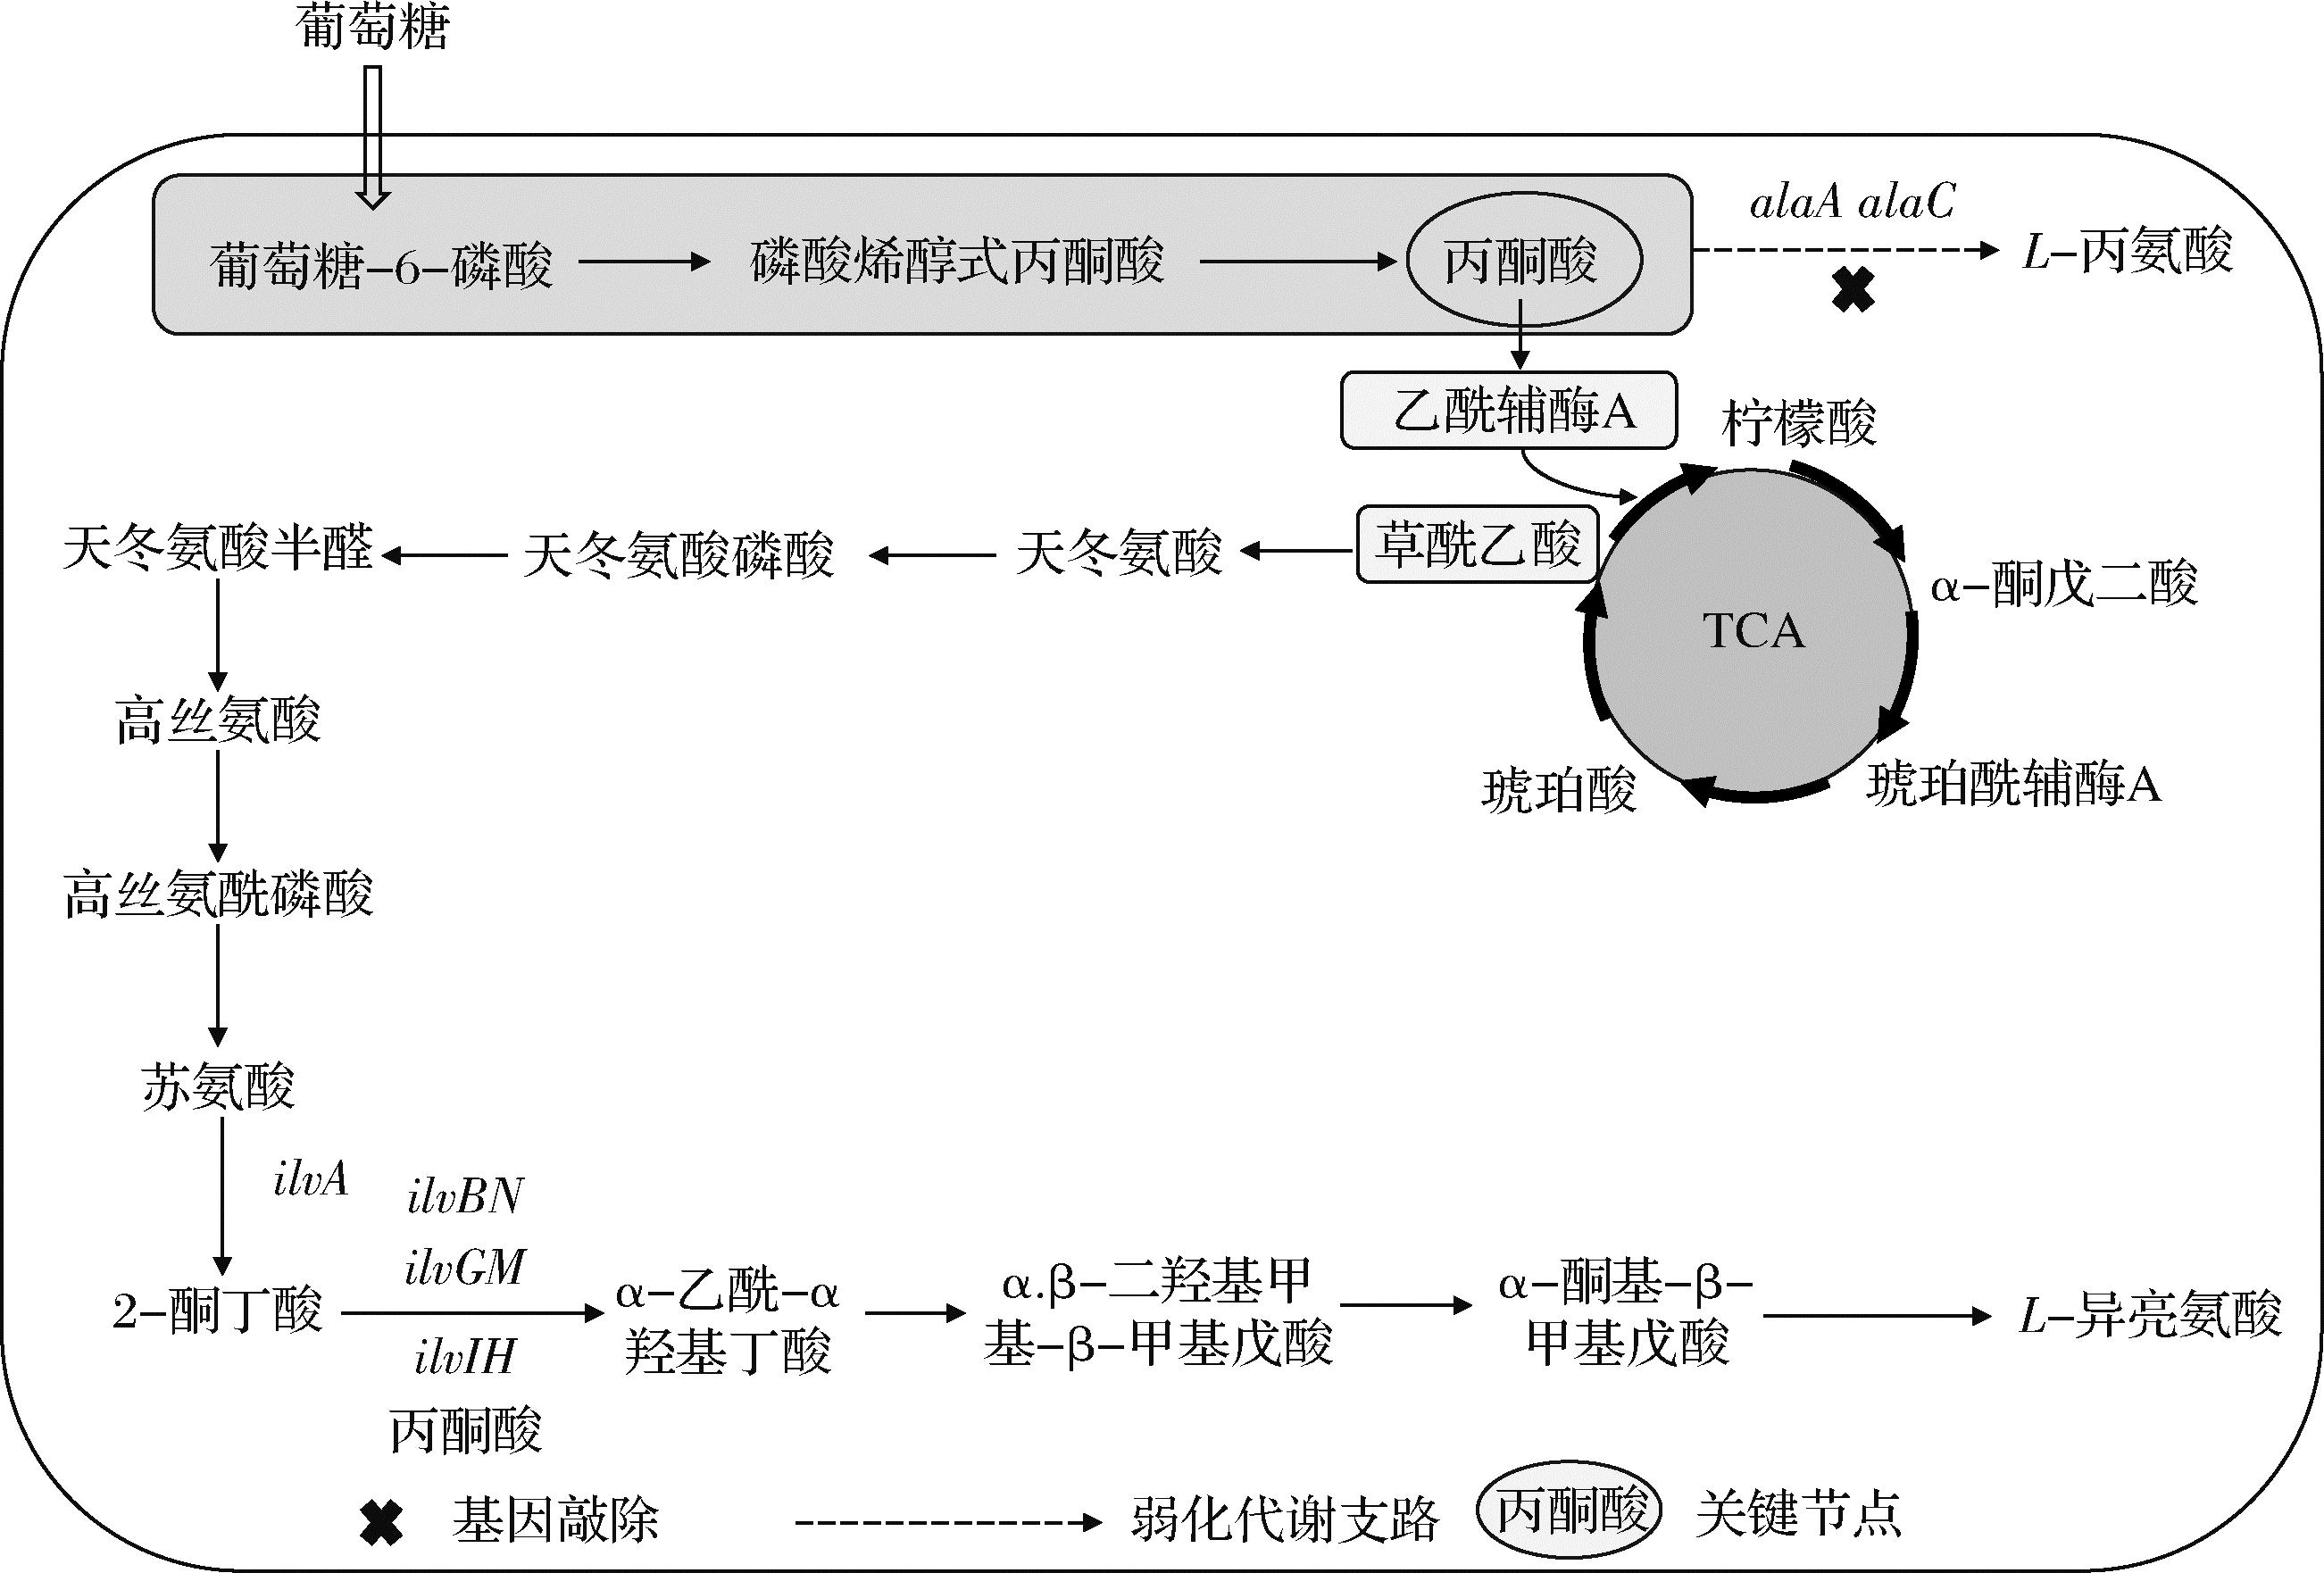
图1 E.coli中L-Ile生物合成代谢途径
Fig.1 Metabolic pathway of L-Ile biosynthesis in E.coli
目前,在谷氨酸棒杆菌中已有研究证实敲除L-Ala合成关键转氨酶基因alaT可有效减少杂酸积累,并提高L-Ile的产量。Wang等[12]通过敲除alaT基因,在降低L-Ala浓度的同时,使L-Ile产量达到15.4 g/L,提高了17.6%;刘佳峰等[13]在谷氨酸棒状杆菌中敲除alaT后,L-Ala含量由8.13 g/L显著下降至2.23 g/L,L-谷氨酸产量提高了4.97%;孟帅帅等[14]在E.coli中对丙氨酸转氨酶的基因进行敲除,摇瓶发酵L-色氨酸产量达6.08 g/L,较出发菌株提高了26.7%。因此,减少丙酮酸向L-Ala的碳分流是构建高产氨基酸工程菌株的有效策略之一。E.coli中的L-Ala合成网络复杂,除avtA外,丙氨酸转氨酶alaA和alaC已被证实是催化丙酮酸生成L-Ala的主要酶[15-17]。L-Ala合成途径主要有2条:一是由alaA和alaC催化的L-谷氨酸依赖途径一,二是由avtA催化的L-缬氨酸依赖途径二。已有研究表明,同时缺失alaA、alaC和avtA会导致菌体生长缺陷[18-19]。因此,本研究聚焦于对L-Ala合成贡献更大且不影响菌体基本生长途径一的alaA和alaC基因。
然而,针对E.coli高效生产L-Ile体系,系统探究主要丙氨酸转氨酶基因alaA和alaC单独及组合敲除对L-Ile合成效率、糖酸转化率、副产物、关键基因表达调控及胞内辅因子平衡的综合影响,并阐明其调控L-Ile合成通量的分子机制,仍有待深入研究。
本研究以E.coli NXU-A为出发菌株,旨在通过CRISPR-Cas9基因编辑技术分别敲除和组合敲除alaA和alaC基因,构建弱化L-Ala途径提高L-Ile产量的菌株。通过摇瓶发酵实验评估敲除丙氨酸转氨酶alaA、alaC策略对L-Ile合成的影响,并利用RT-qPCR技术进一步深入分析L-Ile合成关键基因L-苏氨酸脱水酶(ilvA)、乙酰羟酸合酶III大亚基(ilvI)、乙酰羟酸合酶II小亚基(ilvM)的表达情况以及检测辅因子NADPH/NADP+比值变化,从代谢网络关键节点调控的角度阐明alaA/alaC缺失促进L-Ile合成的分子机制,为理性设计高产L-Ile E.coli工程菌株并降低副产物积累提供理论依据。
1 材料与方法
1.1 材料
1.1.1 菌株与质粒
以E.coli NXU-A为出发菌株(实验室保藏),本研究所用菌株E.coli NXU-B(ΔalaA)、E.coli NXU-C(ΔalaC)和E.coli NXU-D(ΔalaA/ΔalaC),质粒pCas和pTargetF。
1.1.2 主要试剂和仪器
试剂:PCR聚合酶和其他PCR试剂,TaKaRa宝日医生物技术(北京)有限公司;质粒小量提取试剂盒,Omega公司;柱式胶回收DNA试剂盒,天根北京有限公司;引物、LB培养基、NaCl、琼脂糖,生工生物工程(上海)股份有限公司;2.4-二硝基氟苯,上海阿拉丁科技股份有限公司;无水乙酸钠(色谱纯),天津市科密欧化学试剂有限公司;生物素,碧云天生物技术有限公司;葡萄糖、蛋白胨、KH2PO4、K2HPO4、(NH4)2SO4、FeSO4·7H2O、MeSO4·7H2O,大茂化学试剂有限公司(均为分析纯)。
仪器:LC-16高效液相色谱仪,通微分析技术有限公司;TG16-W/TGL-16M离心机,湖南湘仪实验室仪器开发有限公司;L5S紫外分光光度计,上海仪电分析仪器有限公司;Nano One超微量分光光度计,杭州佑宁仪器有限公司;色谱柱Agilent XDB-C18(25 mm×4.6 mm,3.5 μm),安捷伦科技有限公司;SBA生物传感分析仪,山东省科学院生物研究所;FLY-2102B立式全温摇床,常州丹瑞实验室仪器设备有限公司;YJSH-250生化培养箱,上海铱晶科技有限公司;T100TM Thermal Cycler常规PCR仪、电转仪,德国Eppendorf公司。
1.1.3 培养基
LB固体培养基(g/L):称取LB 25.0,琼脂粉20.0,pH 7.00~7.20,121 ℃条件下灭菌15 min。种子培养基(g/L):葡萄糖5.0,蛋白胨10.0,酵母粉5.0,(NH4)2SO4 2.0,pH 7.0,121 ℃条件下灭菌15 min。发酵培养基(g/L):葡萄糖20.0、酵母粉3、蛋白胨4、(NH4)2SO4 2.5、KH2PO4 2.0,K2HPO4 3.0、CaCO3 2.5,MeSO4·7H2O 2.0,FeSO4·7H2O 0.01,生物素0.50,维生素B1 1.0,NaCl 2.0,葡萄糖和硫酸铵分开灭菌,121 ℃灭菌15 min。
上述培养基pH值均需调至7.0~7.2,抗性筛选所需的卡那霉素和壮观霉素终质量浓度分别为50、100 μg/mL,IPTG终浓度0.5 mmol/L,阿拉伯糖终浓度10 mmol/L。
1.2 实验方法
1.2.1 基因编辑方法
使用CRISPR-Cas9系统进行基因敲除,参照前人[20-22]的方法进行基因编辑。本节将以alaA基因敲除为例介绍该过程。
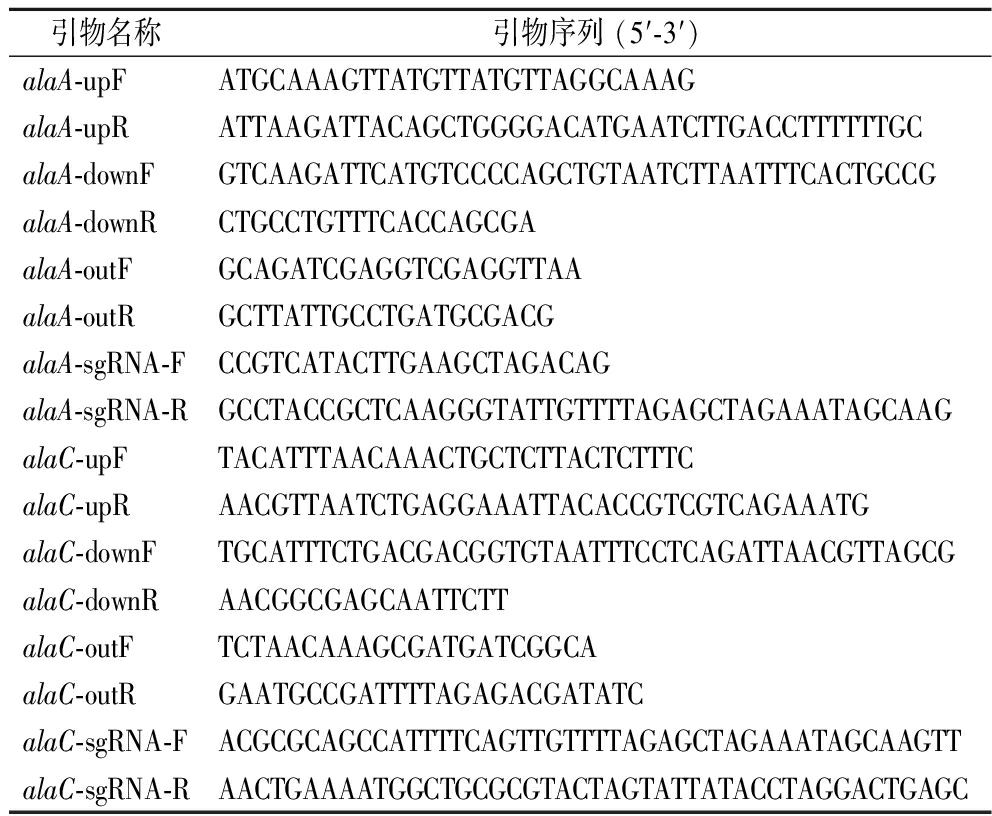
质粒、打靶片段的构建:pTargetF质粒为模板,以alaA-sgRNA-F和alaA-sgRNA-R为引物,构建sgRNA表达质粒pTargetF-alaA。制备用于alaA缺失的供体DNA片段,使用两对引物alaA-upF、alaA-upR和alaA-downF、alaA-downR扩增上游和下游同源臂,通过重叠延伸PCR连接扩增上游和下游同源臂,生成供体DNA片段DNA-alaA。
电转化及敲除验证:参照何滋等[23]、朱森康等[24]的方法,通过电转化仪1.8 kV 5 s将pTargetF-alaA和DNA-alaA共同转入含有pCas质粒的E.coli NXU-A感受态细胞,并加入阿拉伯糖进行诱导。将培养好的细菌悬浮液涂布在含有卡那霉素和壮观霉素的双抗LB平板上,验证pTargetF-alaA和pCas质粒是否转入,挑取双抗平板上阳性菌落通过PCR验证和DNA测序方法,以确认基因敲除成功。
质粒消除:通过菌落PCR和DNA测序验证确认敲除成功后,将阳性菌落扩大培养后接种到含有卡那霉素和IPTG的LB液体培养基中,37 ℃过夜培养消除pTargetF质粒。消除pTargetF质粒后,将菌株接种至LB液体培养基中并在42 ℃培养过夜,破坏突变体中对温度敏感的pCas质粒。通过菌落PCR验证得到双质粒消除的alaA基因缺失菌株E.coli NXU-B,使用同样方法单敲除alaC、组合敲除alaA和alaC得到E.coli NXU-C、E.coli NXU-D。基因敲除引物设计如表1所示。
表1 基因敲除引物设计
Table 1 Primer design for gene knockout
引物名称引物序列 (5'-3')alaA-upFATGCAAAGTTATGTTATGTTAGGCAAAGalaA-upRATTAAGATTACAGCTGGGGACATGAATCT-TGACCTTTTTTGCalaA-downFGTCAAGATTCATGTCCCCAGCTGTAATCT-TAATTTCACTGCCGalaA-downRCTGCCTGTTTCACCAGCGAalaA-outFGCAGATCGAGGTCGAGGTTAAalaA-outRGCTTATTGCCTGATGCGACGalaA-sgRNA-FCCGTCATACTTGAAGCTAGACAGalaA-sgRNA-RGCCTACCGCTCAAGGGTATTGTTT-TAGAGCTAGAAATAGCAAGalaC-upFTACATTTAACAAACTGCTCTTACTCTTTCalaC-upRAACGTTAATCTGAGGAAATTACACCGTCGTCAGAAATGalaC-downFTGCATTTCTGACGACGGTGTAATTTCCT-CAGATTAACGTTAGCGalaC-downRAACGGCGAGCAATTCTTalaC-outFTCTAACAAAGCGATGATCGGCAalaC-outRGAATGCCGATTTTAGAGACGATATCalaC-sgRNA-FACGCGCAGCCATTTTCAGTTGTTT-TAGAGCTAGAAATAGCAAGTTalaC-sgRNA-RAACTGAAAATGGCTGCGCGTACTAGTAT-TATACCTAGGACTGAGC
1.2.2 摇瓶发酵
菌种活化:将保藏于-80 ℃的甘油出发菌株和重组菌株在LB固体培养基上划线,37 ℃培养16 h。
种子液培养与发酵:利用接种环挑取活化好的新鲜菌苔,接种于装有50 mL种子培养基的250 mL三角瓶中,37 ℃、200 r/min培养12~16 h后,以10%的接种量接种到装有100 mL发酵培养基的500 mL三角瓶中,37 ℃、200 r/min培养48 h,发酵过程中用5%~10%(质量分数)氨水,调节pH值在6.8~7.2。12 h后测定发酵液中残留葡萄糖浓度,当残留葡萄糖质量浓度下降至1 g/L时开始补加葡萄糖,采用400 g/L高质量浓度葡萄糖溶液进行分批补糖,每隔4 h测定1次糖浓度,通过控制补糖体积和频率,使发酵液中葡萄糖质量浓度维持在1~5 g/L。
1.2.3 生物量测定方法
使用紫外分光光度计测量600 nm波长处的吸光度来监测细胞密度(OD600值)。从0 h开始,每隔4 h取适量发酵液测其600 nm处的吸光值,并绘制菌株的生长曲线。
1.2.4 耗糖量测定方法
从0 h开始,每隔4 h取适量发酵液利用生物传感器分析仪检测发酵培养基中的残留葡萄糖浓度以计算耗糖量。
1.2.5 L-Ile、L-Ala测定方法
采用柱前衍生HPLC测定发酵液中L-Ile/L-Ala浓度,取约1 mL发酵液装入1.5 mL离心管中,6 000 r/min离心2 min,将上清液移至另一个干净的1.5 mL离心管中并在-20 ℃冰箱保存。取冰箱中保存的发酵液上清液用去离子水稀释至L-Ile/L-Ala浓度处于标准曲线范围内,待测样品通过0.22 μm有机滤膜过滤,采用2,4-二硝基氟苯为柱前衍生试剂[25],使用HPLC检测样品中的L-Ile/L-Ala含量。
柱前衍生程序:取0.1 mL样品溶液至1.5 mL棕色离心管中,分别加入pH 9.0的硼酸缓冲溶液和2,4-二硝基氟苯各0.1 mL,置于60 ℃水浴加热60 min后,取出冷却至30 ℃加入pH 7.0的磷酸盐平衡缓冲溶液定容至1.0 mL,暗处静置反应15 min,取20 μL样品进样分析。
色谱条件:流速1 mL/min、检测波长360 nm、柱温33 ℃、进样量20 μL,梯度洗脱参照文献[26]。
1.2.6 RT-qPCR方法
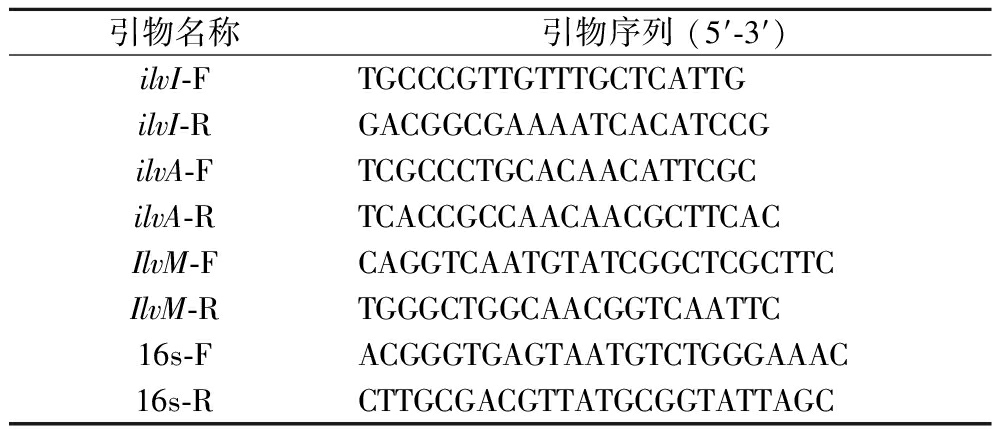
通过RT-qPCR分析E.coli中L-Ile合成代谢途径关键酶基因转录水平。参照前人[27-28]的方法进行RT-qPCR实验,使用2-ΔΔCt方法计算转录水平。利用天根DP302试剂盒提取菌体总RNA并将其反转录成cDNA,RT-qPCR引物设计如表2所示,E.coli MG1655 16S rDNA为内参基因序列。RT-qPCR扩增程序如下:95 ℃预变性30 s;第二步:95 ℃变性20 s,60 ℃退火30 s,72 ℃延伸30 s,40个循环。
表2 RT-qPCR引物设计
Table 2 Design of RT-qPCR primers
引物名称引物序列 (5'-3')ilvI-FTGCCCGTTGTTTGCTCATTGilvI-RGACGGCGAAAATCACATCCGilvA-FTCGCCCTGCACAACATTCGCilvA-RTCACCGCCAACAACGCTTCACIlvM-FCAGGTCAATGTATCGGCTCGCTTCIlvM-RTGGGCTGGCAACGGTCAATTC16s-FACGGGTGAGTAATGTCTGGGAAAC16s-RCTTGCGACGTTATGCGGTATTAGC
1.2.7 NADPH/NADP+比值测定方法
收集对数期5×10⁶个细菌至1.5 mL离心管中,离心收集菌体后,使用biosharp Coenzyme Ⅱ NADP(H) Content Assay Kit辅酶Ⅱ NADP+/NADPH含量试剂盒说明书方法进行样品处理,在450 nm处检测。
1.2.8 数据处理方法
采用Excel 2019、Origin 2021和Graphpad Prism 9.5.0等软件对数据进行整理分析、作图,所有实验均重复3次,实验结果以“平均值±标准差”表示。
2 结果与分析
2.1 alaA、alaC基因缺失菌株的构建结果
利用CRISPR-Cas9基因编辑技术敲除alaA、alaC基因,分别用引物alaA-outF/alaA-outR、alaC-outF/alaC-outR进行菌落PCR验证。如图2-a所示,未敲除alaA基因PCR片段长度为2 900 bp(泳道2),成功敲除alaA基因PCR片段长度为1 698 bp(泳道1),得到重组菌株E.coli NXU-B。如图2-b所示,未敲除alaC基因PCR片段长度为3 039 bp(泳道2),成功敲除alaC基因PCR片段长度为1 800 bp(泳道1),得到重组菌株E.coli NXU-C;如图2-c所示,当菌落PCR同时得到1 698 bp(泳道1)和1 800 bp(泳道3)时alaA、alaC基因均被成功敲除,得到双敲除alaA和alaC重组菌株E.coli NXU-D。
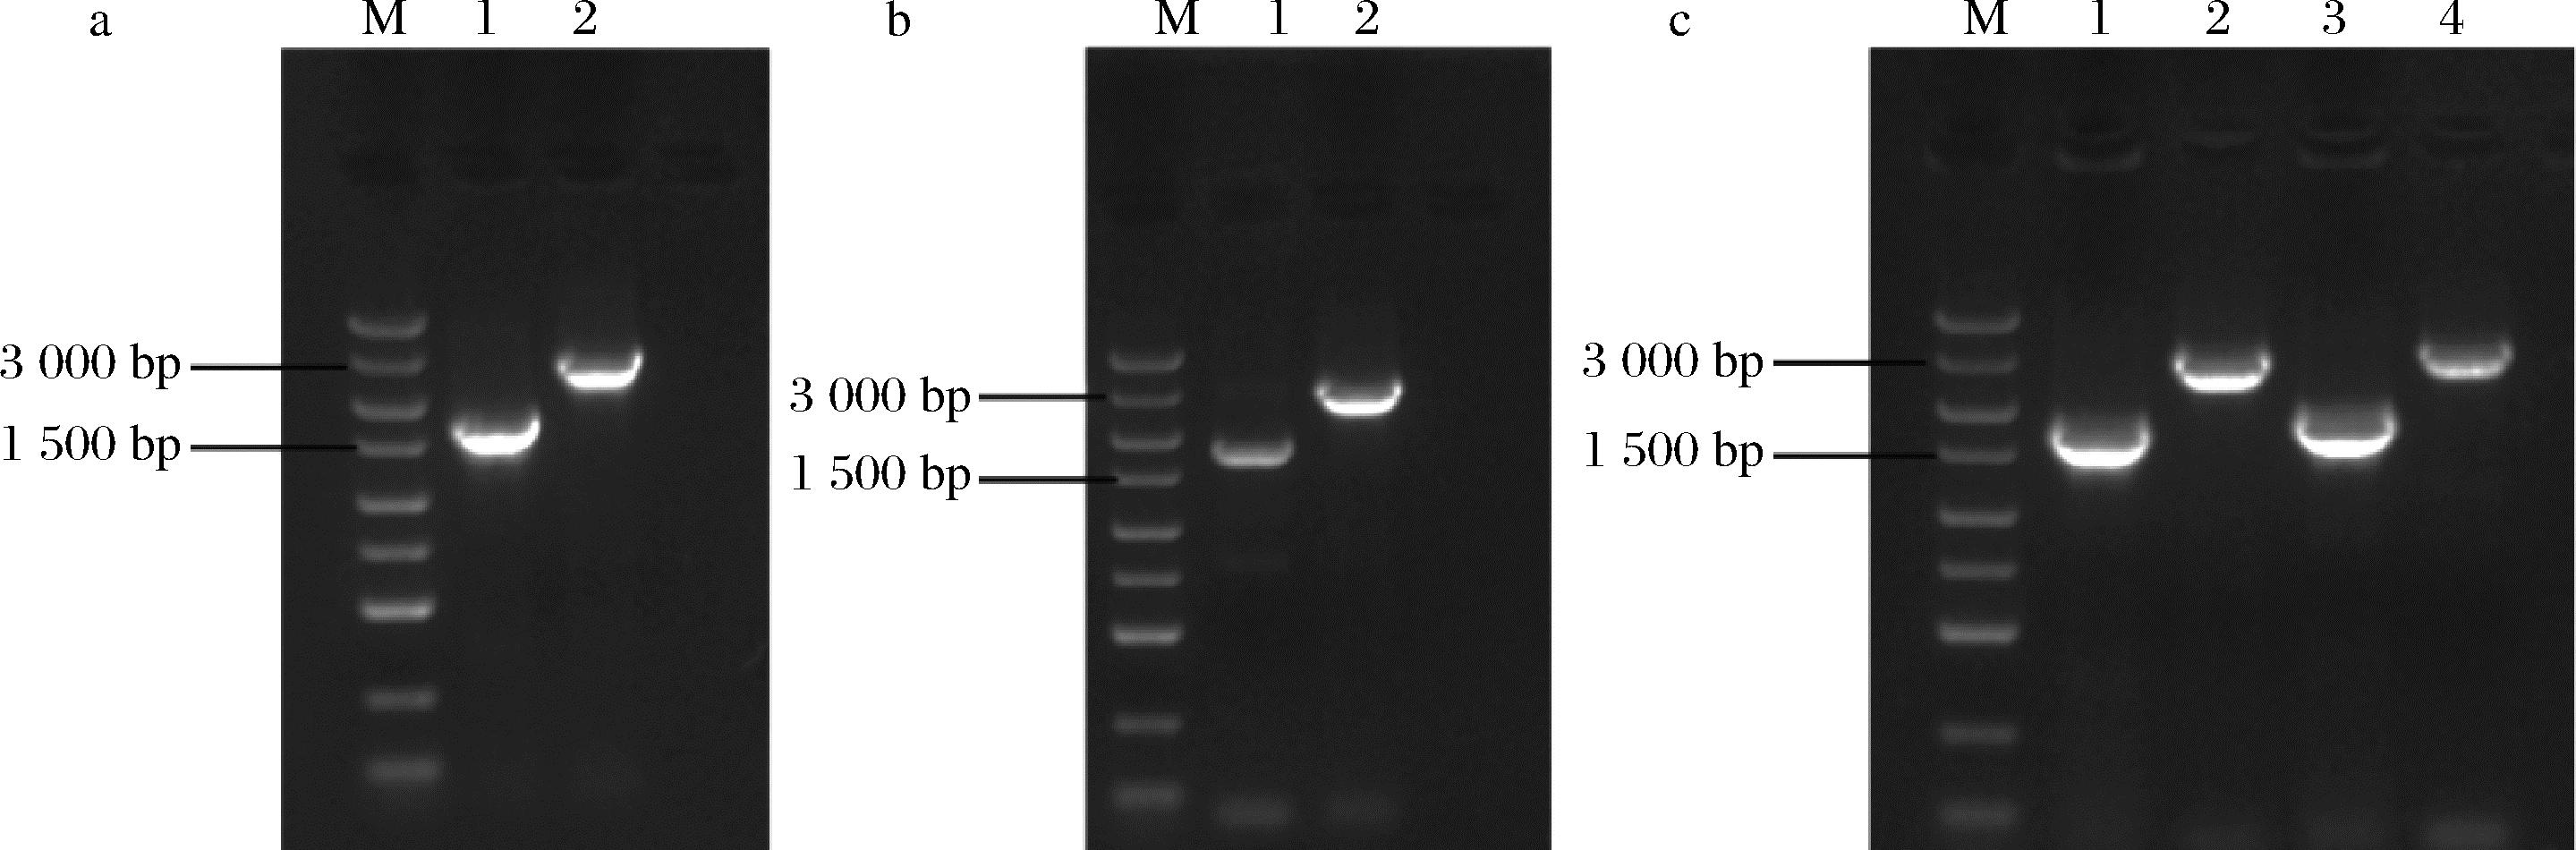
M-Marker;a图泳道1-alaA基因敲除PCR片段;a图泳道2-未敲除alaA基因PCR片段;b图泳道1-alaC基因敲除PCR片段;b图泳道2-未敲除alaC基因PCR片段;c图泳道1-alaA基因敲除PCR片段;c图泳道2-未敲除alaA基因PCR片段;c图泳道3-alaC基因敲除PCR片段;c图泳道4-未敲除alaC基因PCR片段。
a-E.coli NXU-B;b-E.coli NXU-C;c-E.coli NXU-D
图2 重组菌株基因敲除菌落PCR凝胶电泳图
Fig.2 Colony PCR gel electrophoresis of gene-knockout recombinant strains
2.2 重组菌株摇瓶发酵结果与分析
为验证L-Ala合成途径一中丙氨酸转氨酶基因alaA、alaC的敲除对生产L-Ile的影响,对出发菌株和重组菌株进行48 h摇瓶发酵培养并对各菌株生物量、耗糖量、L-Ala和L-Ile的积累变化情况进行比较分析。
2.2.1 弱化L-Ala合成途径对重组菌株细胞生长的影响
重组菌株生长情况,如图3-a所示。单独敲除alaA、alaC的重组菌株E.coli NXU-B、E.coli NXU-C前16 h与出发菌株生长情况基本一致,但双敲除alaA、alaC的重组菌株E.coli NXU-D前12 h生长速度稍慢于出发菌株,12 h以后重组菌株生长较出发菌株明显加快。导致重组菌株E.coli NXU-D前期增殖速度放缓的原因,一方面可能是丙氨酸转氨酶基因被敲除后,L-Ala合成途径被阻断或减弱,细胞需要经历一定的代谢适应期,以重新分配丙酮酸等中间关键代谢产物,使核心代谢网络稳定运行;另一方面,基因敲除初期细胞内L-Ala水平降低,可能暂时影响与L-Ala相关的碳代谢平衡或能量供应,从而抑制菌体早期增殖。经过约12 h的适应,细胞已建立新的代谢平衡,碳源、氮源以及NADPH等代谢资源被重新分配至核心代谢途径,支持菌体快速生长,同时因L-Ala消耗减少,副产物竞争减轻,使更多葡萄糖及其他碳源通过糖酵解、三羧酸循环等途径产生ATP和中间代谢物,进一步促进菌体增殖,OD值自12 h后开始升高。摇瓶发酵48 h后,单独敲除alaA、alaC的重组菌株生物量略高于出发菌株,而双敲除菌株E.coli NXU-D的最终生物量较出发菌株有显著提高,如图3-b所示。周丽等[29]研究表明,L-Ala的合成需要对碳、氮代谢进行系统协调,避免代谢失衡对细胞生长产生抑制;另有相关研究表明,副产物氨基酸在细胞内过度积累会引起氨基酸池失衡和转氨反应竞争,从而降低菌体生长速率及目标产物合成效率[30]。因此,本研究重组菌株生物量提升的原因可能是通过敲除alaA和alaC减弱L-Ala合成通量,降低细胞内L-Ala或其他氨基酸积累对细胞的抑制作用,从而优化代谢资源分配,提升菌体增殖能力。
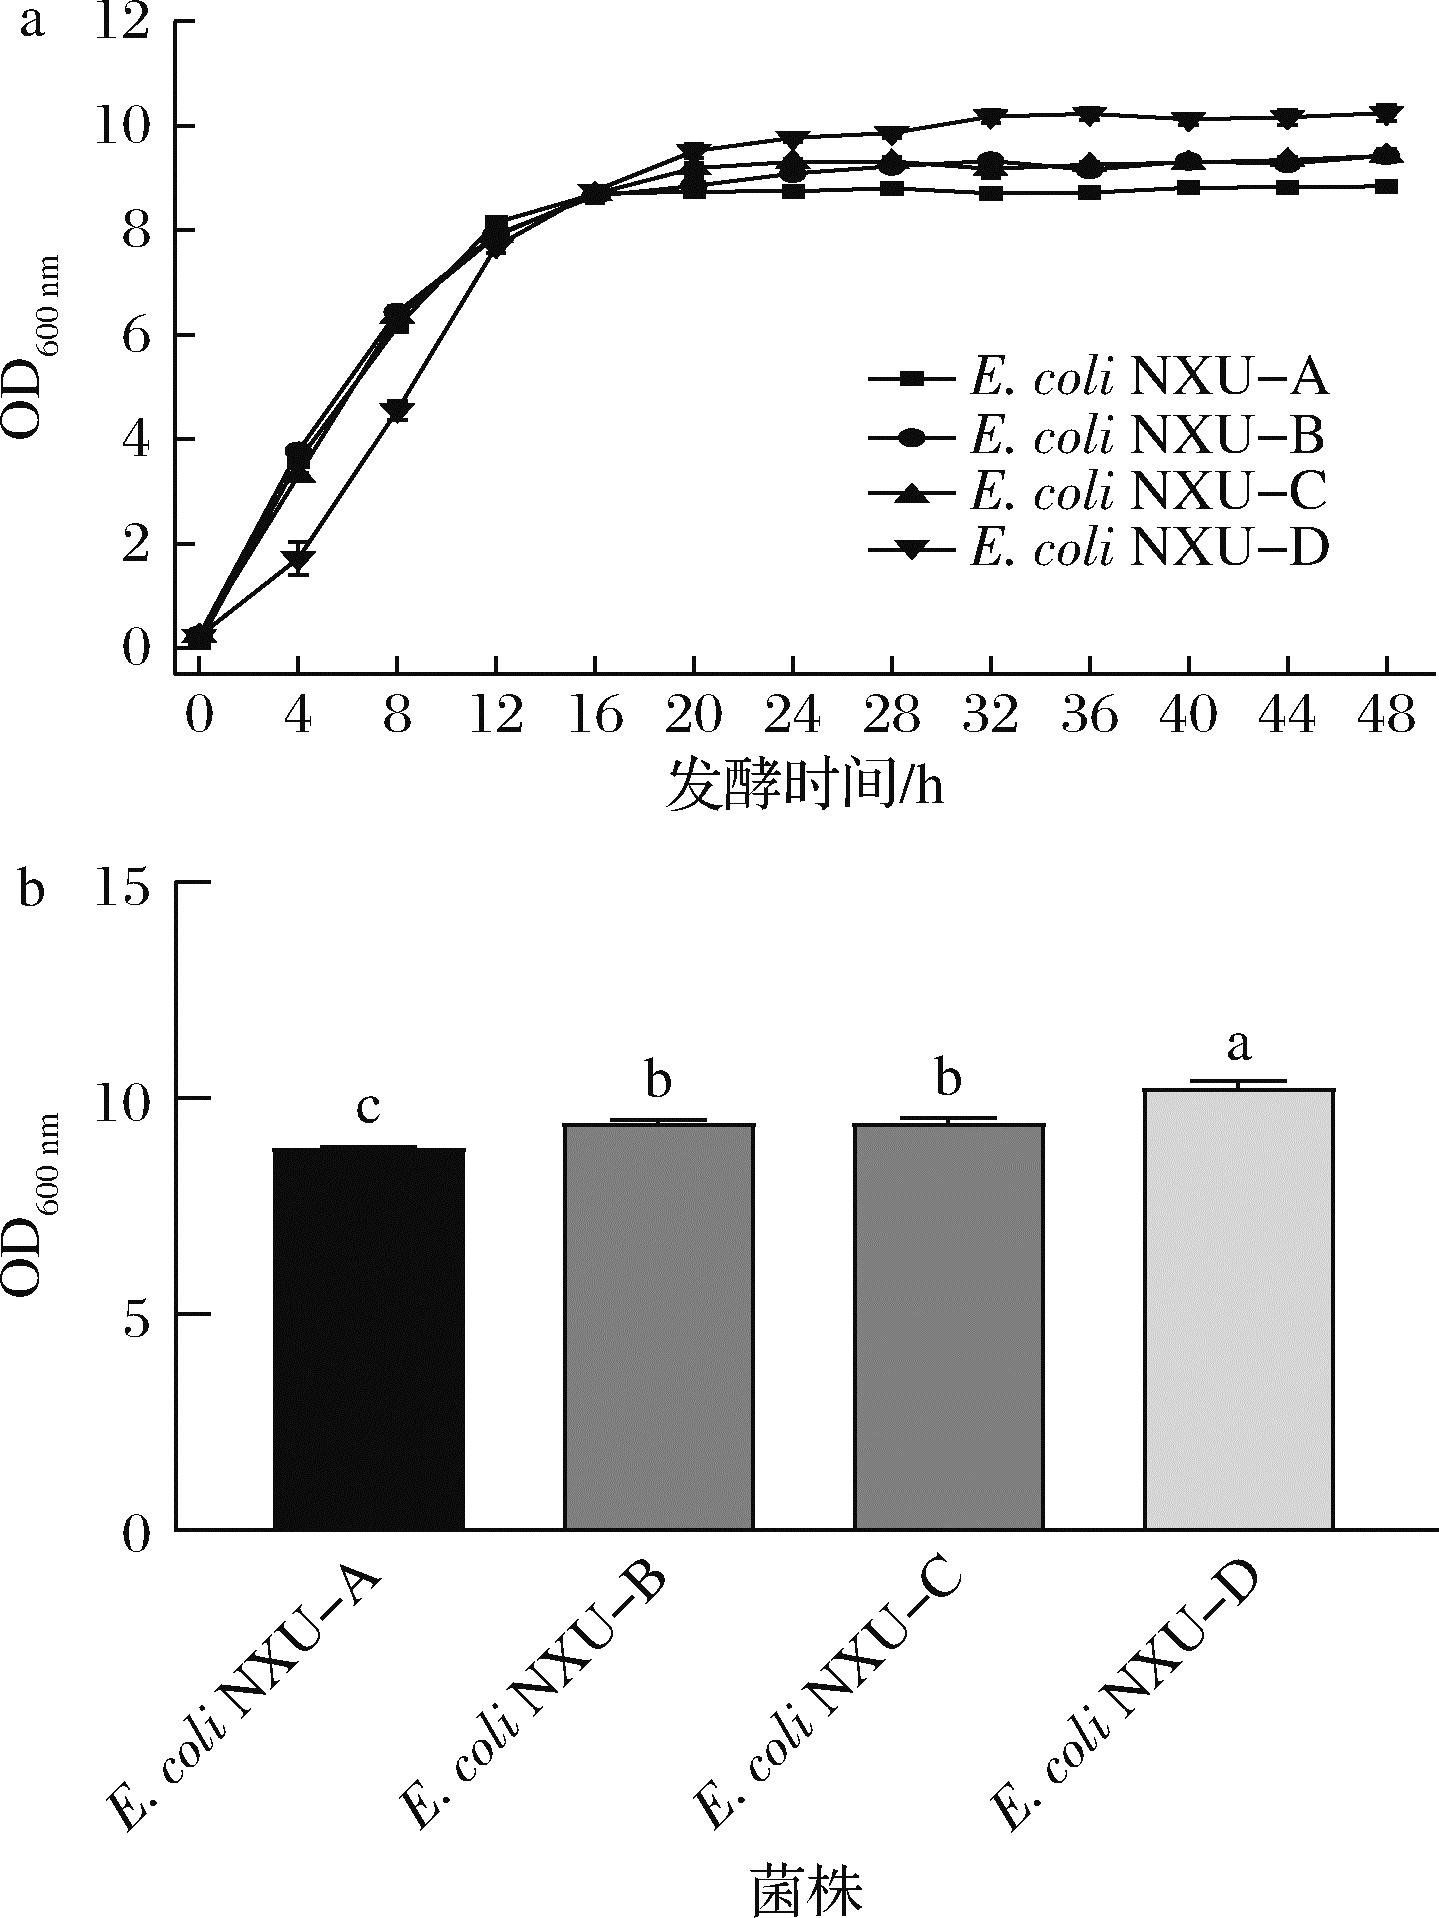
a-各时间段重组菌株生物量变化;b-重组菌株最终生物量
图3 弱化L-Ala途径对重组菌株生物量的影响
Fig.3 Effect of L-Ala pathway attenuation on biomass of the recombinant strain
注:图b中不同小写字母的差异显著(P<0.05),相同字母差异不显著(P>0.05)(下同)。
2.2.2 弱化L-Ala合成途径对重组菌株葡萄糖消耗的影响
采用SBA糖浓度分析仪每隔4 h对发酵液中葡萄糖浓度进行动态监测,以分析不同菌株在发酵过程中对碳源葡萄糖的消耗特征。如图4-a所示,在发酵前16 h内,出发菌株E.coli NXU-A与重组菌株E.coli NXU-B、E.coli NXU-C及E.coli NXU-D的耗糖曲线基本重合,表明alaA和alaC基因的单独和组合敲除并未显著影响菌株在生长早期的葡萄糖摄取能力和基础碳代谢水平。此阶段葡萄糖主要用于细胞生长和维持能量代谢,各菌株的中心代谢通量分布较为一致。随着发酵进程的推进,16 h以后不同菌株之间的耗糖特征逐渐出现明显差异。出发菌株E.coli NXU-A的葡萄糖消耗量持续上升,而重组菌株的耗糖速率相对缓慢。摇瓶发酵48 h后,E.coli NXU-A的总耗糖量高于E.coli NXU-B、E.coli NXU-C和E.coli NXU-D。其中,双基因同时缺失菌株E.coli NXU-D的耗糖量较出发菌株具有显著差异,如图4-b所示。结合代谢途径分析,产生该现象的原因可能是与丙酮酸代谢流向的改变密切相关[31]。在出发菌株E.coli NXU-A中,丙酮酸可通过alaA和alaC编码的转氨酶基因合成L-Ala。因此,出发菌株持续消耗丙酮酸合成L-Ala,为维持该通量,细胞需要不断增强糖酵解速率,消耗更多的葡萄糖,从而导致发酵中后期葡萄糖消耗量持续增加。相较于出发菌株,当alaA和alaC双基因组合缺失时,丙酮酸向L-Ala合成的主要通路被阻断,原本流向副产L-Ala合成的碳代谢流减弱或截断,丙酮酸更多地参与能量代谢或其他合成途径。此外,副产物L-Ala合成通量的降低有助于缓解细胞内氨基酸池失衡及转氨反应之间的竞争,降低代谢负担,并改善碳、氮代谢的整体协调性。因此,重组菌株E.coli NXU-D对高糖酵解通量的需求减弱,发酵后期葡萄糖消耗速率减缓和总耗糖量降低。
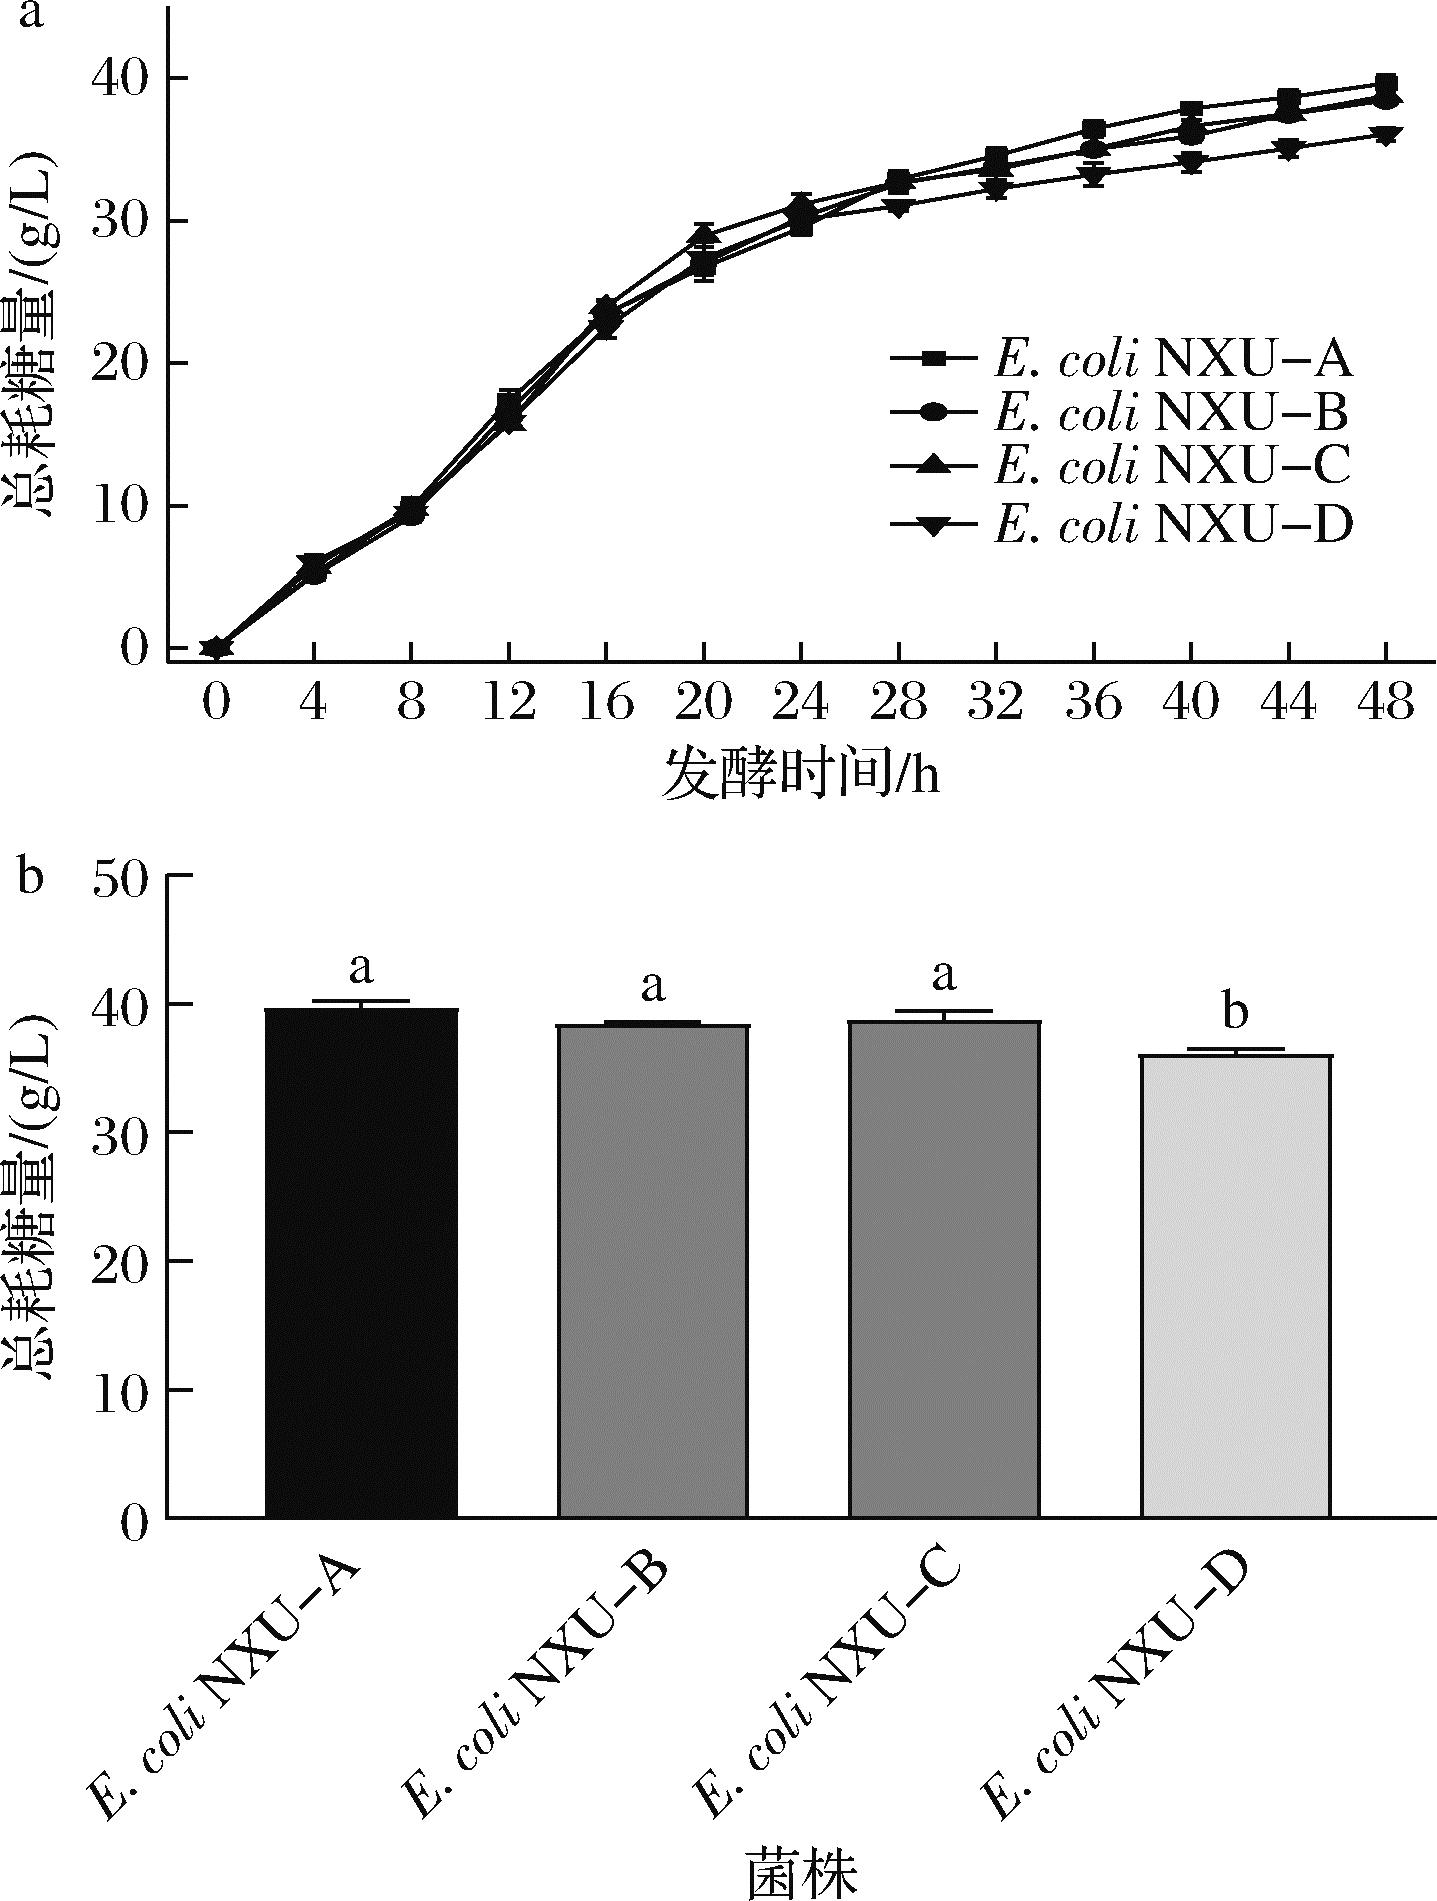
a-各时间段重组菌株葡萄糖消耗变化;b-重组菌株葡萄糖消耗总量
图4 弱化L-Ala途径对重组菌株碳源葡萄糖消耗的影响
Fig.4 Effect of L-Ala pathway attenuation on glucose consumption by the recombinant strain
综上所述,alaA和alaC基因组合敲除,通过阻断丙酮酸向L-Ala合成的关键代谢通路,改变了细胞内碳代谢流的分配模式,减少碳源的无效消耗和提高碳源的有效利用率,有利于引导有限的碳流向下游目标产物的合成途径,提高目标产物L-Ile以及其他代谢物的合成效率。例如,Ida等[32]通过敲除酵母中与异丁醇合成竞争的异亮氨酸生物合成通路,使异丁醇产量提高约3.5倍,单位葡萄糖产率为12.04 mg/g相比野生株提高约11倍。Wess等[33]在连续阻断多条竞争性代谢支路并减少其他消耗途径的情况下,将异丁醇产量较野生株提高至2.09 g/L,产量提升超过200倍。上述研究验证了通过截断竞争支路减少无效碳流、提高碳源利用效率,这与本研究中通过敲除alaA和alaC基因降低L-Ala竞争性合成、减少葡萄糖消耗的结果一致。
2.2.3 重组菌株摇瓶发酵L-Ile和L-Ala积累量变化
对重组菌株进行48 h摇瓶发酵,每隔4 h采集1次样品,HPLC分析发酵液中L-Ala和L-Ile积累变化情况。如图5所示,4~8 h L-Ala和L-Ile逐渐在细胞内少量积累,12 h以后L-Ala和L-Ile开始大量在细胞内积累。重组菌株摇瓶发酵48 h L-Ala和L-Ile产量对比结果表明(表3),单独敲除alaA和alaC的重组菌株E.coli NXU-B和E.coli NXU-C L-Ala的产量分别为(2.07±0.11)、(1.95±0.12) g/L,较出发菌株E.coli NXU-A L-Ala产量(2.27±0.08)g/L分别减少了8.81%和14.09%,L-Ile的产量分别为(2.39±0.08)、(2.51±0.16) g/L较出发菌株(2.33±0.07) g/L分别增加了2.57%和7.72%,E.coli NXU-B和E.coli NXU-C L-Ala和L-Ile积累量均没有明显的变化,说明单独敲除任一丙氨酸转氨酶基因难以显著降低副产物L-Ala的积累,提升目标产物L-Ile的合成能力。可能是由于alaA与alaC编码的丙氨酸转氨酶发挥同工酶功能,单基因缺失可以被另一基因部分代偿,未能减弱或截断丙酮酸向L-Ala的碳流分配。但同时敲除alaA、alaC基因的重组菌株E.coli NXU-D发酵液中L-Ala产量仅为(0.23±0.02) g/L,较出发菌株减少了89.87%,L-Ile的终产量为(3.54±0.09) g/L、糖酸转化率为9.79%,较出发菌株分别增加了52%和提高了66.2%。结果表明,仅当alaA、alaC基因被同时敲除时,丙酮酸向L-Ala合成的主要转氨途径才能被有效削弱或阻断,从而显著减弱副产物L-Ala的积累量,丙酮酸更多地流向L-Ile合成途径起始反应,并通过三羧酸循环中草酰乙酸等中间产物进一步供给下游合成通路。同时,副产物L-Ala合成通量的降低缓解了转氨反应之间的竞争,优化了氮代谢分配,减轻了代谢负担。在上述因素协同作用下,最终实现了L-Ile产量显著提升。如孟帅帅等[14]在E.coli中双敲除alaA和alaC基因显著减少L-Ala积累,同时使L-色氨酸产量摇瓶发酵提高约26.7%,并在50 L发酵条件下达到41.9 g/L,葡萄糖转化率显著提升,进一步说明阻断碳流向副产物流通,可有效提高碳源利用和目标产物合成效率。
表3 重组菌株摇瓶发酵48 h L-Ala和L-Ile产量对比
Table 3 Comparison of L-Ala and L-Ile production by recombinant strains in shake flask fermentation for 48 h
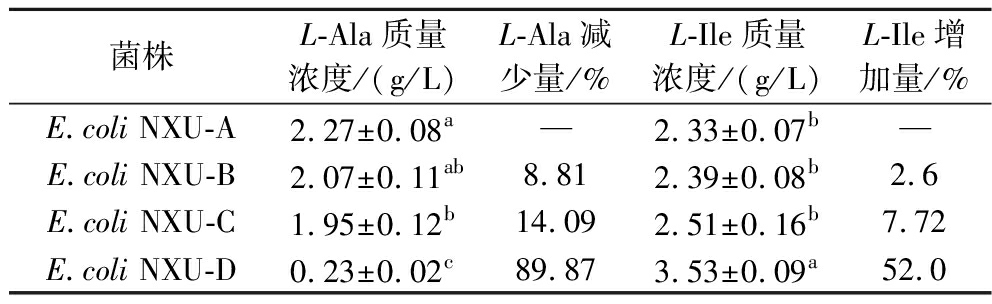
菌株L-Ala质量浓度/(g/L)L-Ala减少量/%L-Ile质量浓度/(g/L)L-Ile增加量/%E.coli NXU-A2.27±0.08a—2.33±0.07b—E.coli NXU-B2.07±0.11ab8.812.39±0.08b2.6E.coli NXU-C1.95±0.12b14.092.51±0.16b7.72E.coli NXU-D0.23±0.02c89.873.53±0.09a52.0
注:表中不同小写字母的差异显著(P<0.05),相同字母差异不显著(P>0.05);—,空白对照。
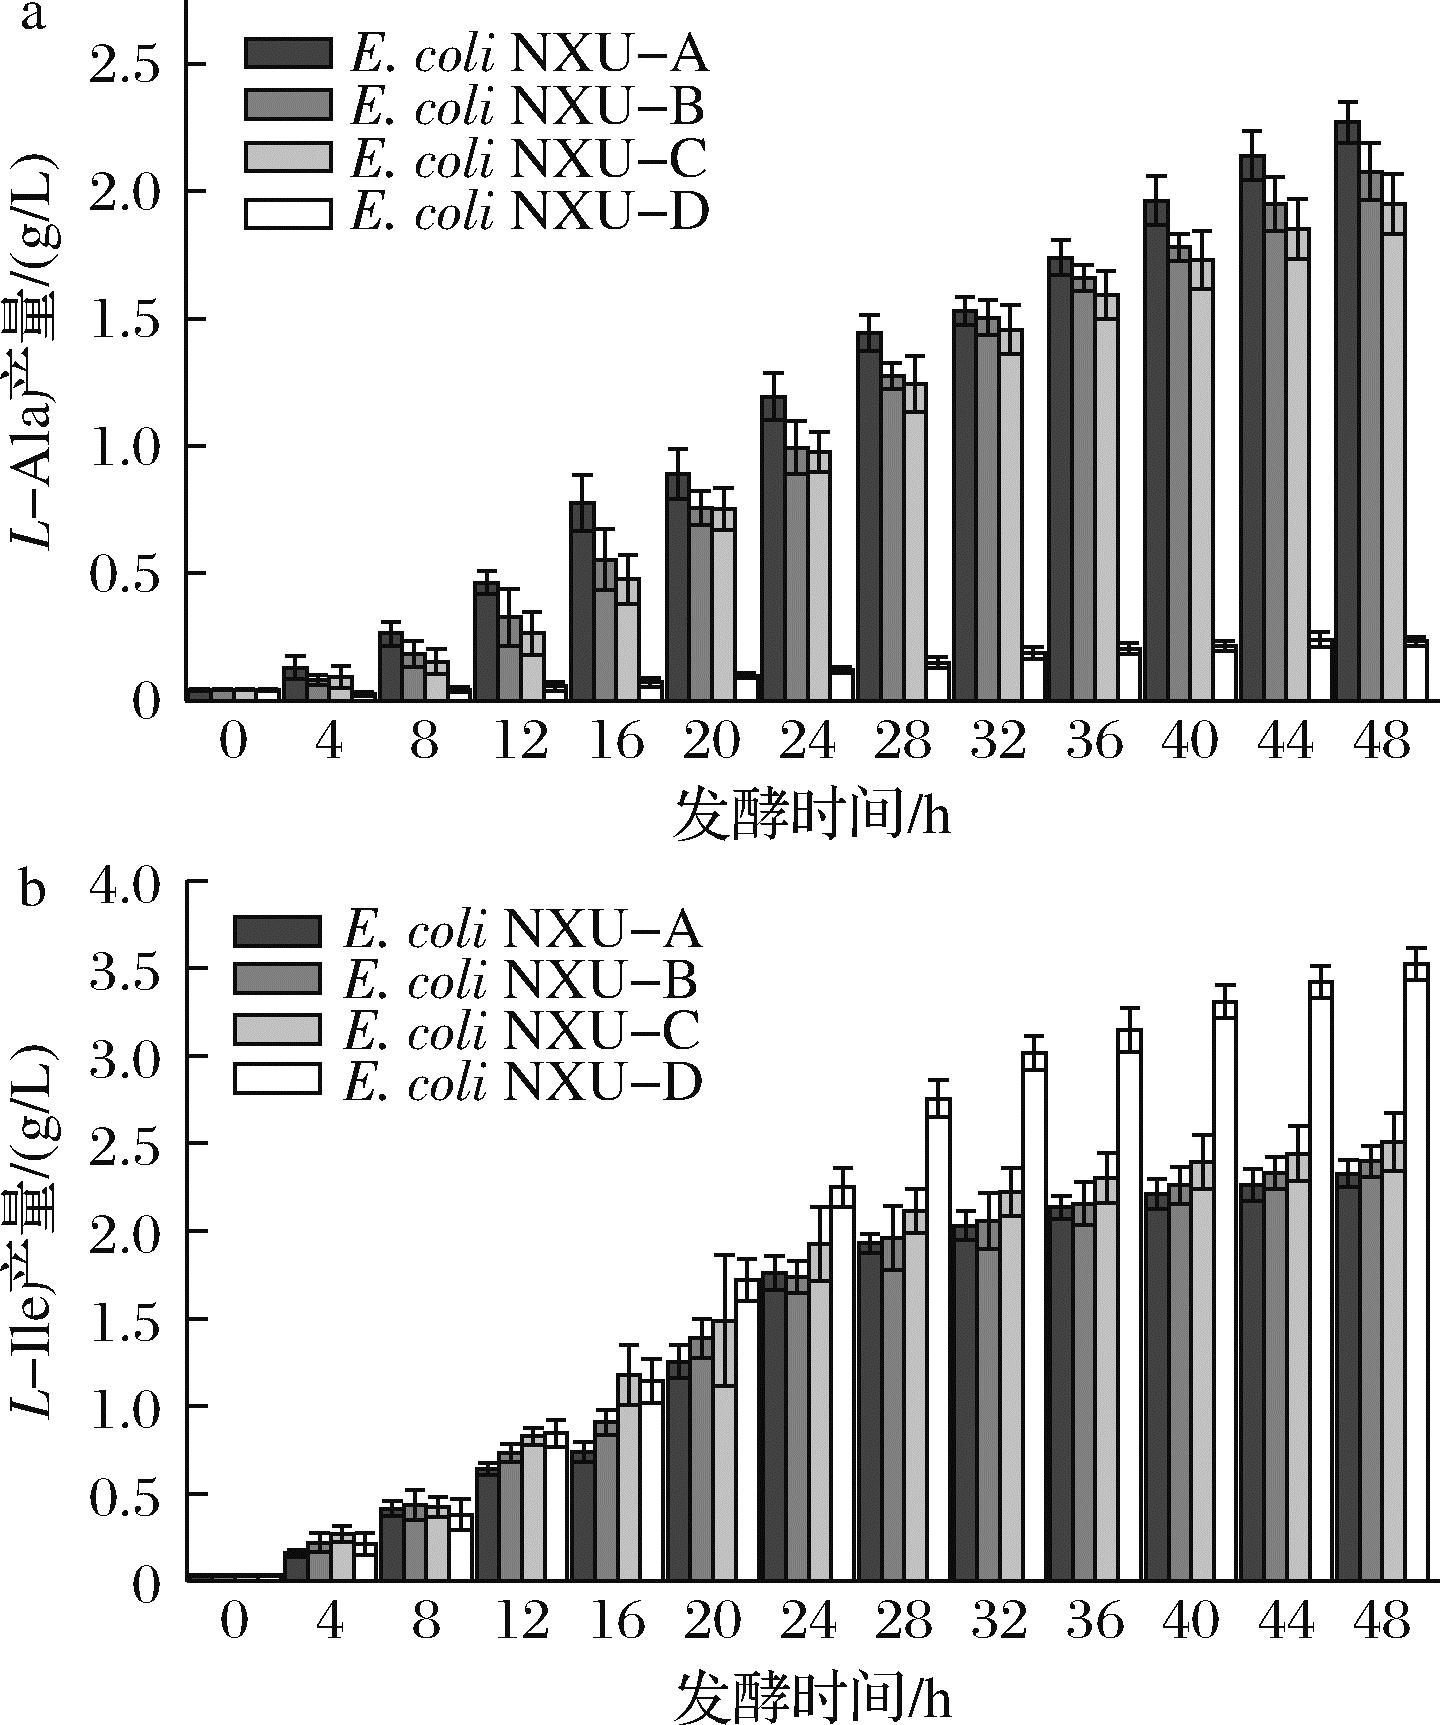
a-L-Ala积累量变化;b-L-Ile积累量变化
图5 重组菌株摇瓶发酵各时间段L-Ala和L-Ile积累量
Fig.5 Accumulation of L-Ala and L-Ile in shake flask fermentation of recombinant strains at different time periods
2.3 弱化L-Ala合成途径对L-Ile合成途径关键酶基因的影响
L-苏氨酸脱水酶(ilvA)和乙酰羟基酸合酶(ilvI、ilvM)是L-Ile合成途径中的关键酶,苏氨酸脱水酶催化苏氨酸形成L-Ile合成的关键前体物质2-酮丁酸,乙酰羟基酸合酶催化2-酮丁酸和丙酮酸生成α-乙酰-α-羟基丁酸再经过多步反应生成L-Ile[34],两者的活性均会受L-Ile的反馈抑制。为了进一步验证弱化L-Ala途径是否有利于L-Ile合成,通过RT-qPCR分别测定出发菌株E.coli NXU-A与重组菌株E.coli NXU-B、E.coli NXU-C和E.coli NXU-D中ilvA、ilvI及ilvM的转录水平。结果表明,NXU-B、NXU-C中ilvA、ilvI及ilvM转录水平较出发菌株没有显著差异。但在NXU-D中ilvA、ilvI及ilvM转录水平较出发菌株分别提高了2.22、1.85、1.97倍(图6)。这与先前研究,通过提高L-Ile合成途径关键酶的表达水平或解除其反馈抑制,促进目标产物合成结果一致。Park等[5]在E.coli中,采用代谢工程手段增强L-Ile合成途径中ilvA和ilvIH等关键酶基因表达,并结合其他代谢调控策略,通过摇瓶分批补料发酵,L-Ile产量达9.46 g/L,说明增强合成途径中关键酶的表达,有助于代谢通量的增加。本研究中,摇瓶发酵结果显示在E.coli NXU-D中L-Ile积累量显著增加(图5-b)。因此可以推断,同时敲除alaA和alaC编码的丙氨酸转氨酶基因,可弱化L-Ala合成途径、缓解前体与转氨反应竞争,从而诱导L-Ile合成途径关键酶基因转录水平上调,并最终促进代谢通量向L-Ile合成途径重分配,进而提高L-Ile的合成能力,间接表明转录水平的增强有助于代谢通量的提高。
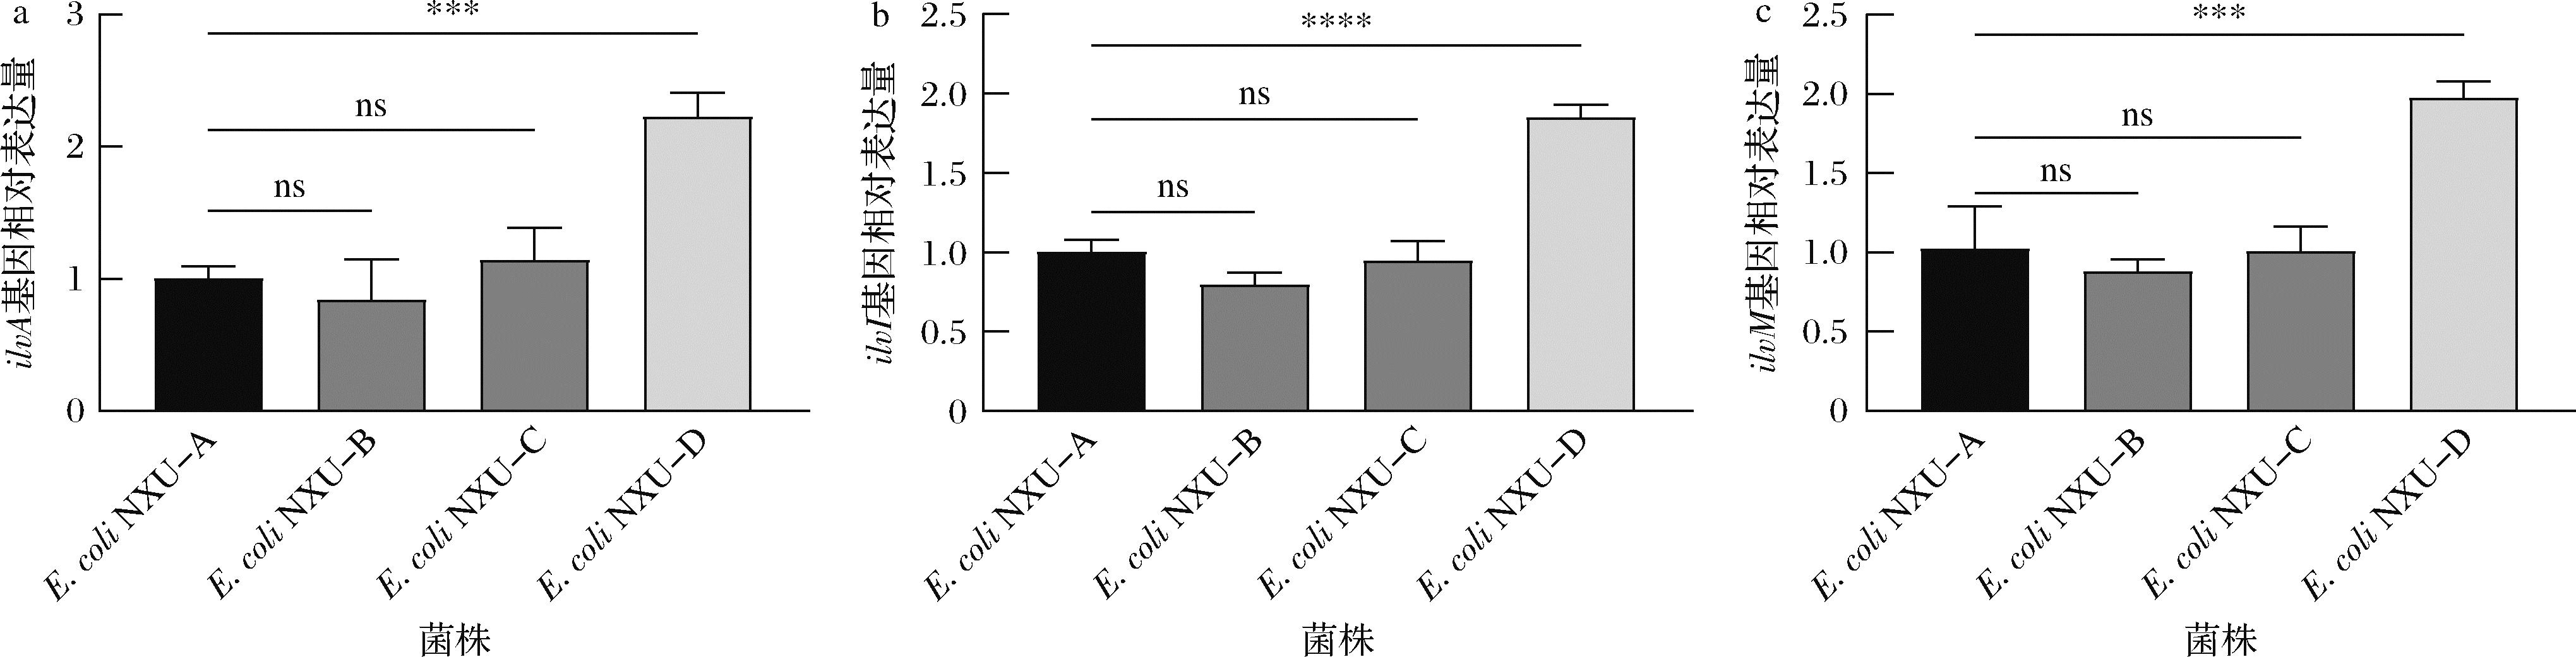
a-ilvA表达量;b-ilvI表达量;c-ilvM表达量
图6 弱化L-Ala途径对L-Ile合成途径关键酶基因的影响
Fig.6 Effect of L-Ala pathway attenuation on key enzyme gene in the L-Ile biosynthetic pathway
注:ns,没有显著性差异;***,P<0.001;****,P<0.000 1(下同)。
2.4 弱化L-Ala合成途径对重组菌株还原性辅因子NADPH/NADP+影响
NADPH是细胞中关键的电子供体,在氨基酸代谢中,NADPH不仅作为重要的辅助因子直接介入反应,更提供了必需的还原力,从而推动合成途径的顺利进行。研究表明,L-Ala的合成过程需要消耗1 mol的NADPH[35],而L-Ile的合成过程中,每合成1 mol的L-Ile需要4 mol的NADPH[36]。因此,NADPH的适量积累有利于L-Ile的合成。实验结果表明,同时敲除alaA、alaC菌株E.coli NXU-D的NADPH/NADP+比值较出发菌株显著增加(图7)。NADPH/NADP+比值的升高反映了细胞内还原性环境的增强,表明减弱L-Ala合成途径,有助于NADPH的积累,并且改善了细胞的氧化还原状态。从糖代谢途径分析,磷酸戊糖途径是细胞内NADPH的主要生成途径,通过葡萄糖-6-磷酸脱氢酶和6-磷酸葡萄糖酸脱氢酶脱氢生成NADPH,提供细胞生物合成所需的还原力。减弱L-Ala合成分支后,更多的葡萄糖-6-磷酸可能流入磷酸戊糖途径,从而增加NADPH生成。此外,糖酵解途径提供的葡萄糖-6-磷酸也可作为磷酸戊糖途径的底物,间接促进NADPH生成,糖酵解产生的NADH可通过转氢酶部分转化为NADPH,进一步优化还原力供应。三羧酸循环中的NADP+依赖型异柠檬酸脱氢酶也能生成NADPH,并提供2-酮丁酸前体,为L-Ile合成提供底物和还原力。实验结果显示,NXU-D菌株中L-Ile合成相关基因ilvA、ilvI、ilvM的转录水平显著上调,结合NADPH/NADP+比值升高,可以推断减弱L-Ala的合成,有助于胞内的NADPH积累,提高L-Ile合成途径中NADPH的可利用性。综上,同时敲除alaA、alaC基因以减弱L-Ala的合成竞争,能够有效提升细胞内NADPH的库存与NADPH/NADP+比值。这种还原力的增强不仅优化了细胞的氧化还原状态,更为L-Ile的高耗量合成提供了关键驱动力。
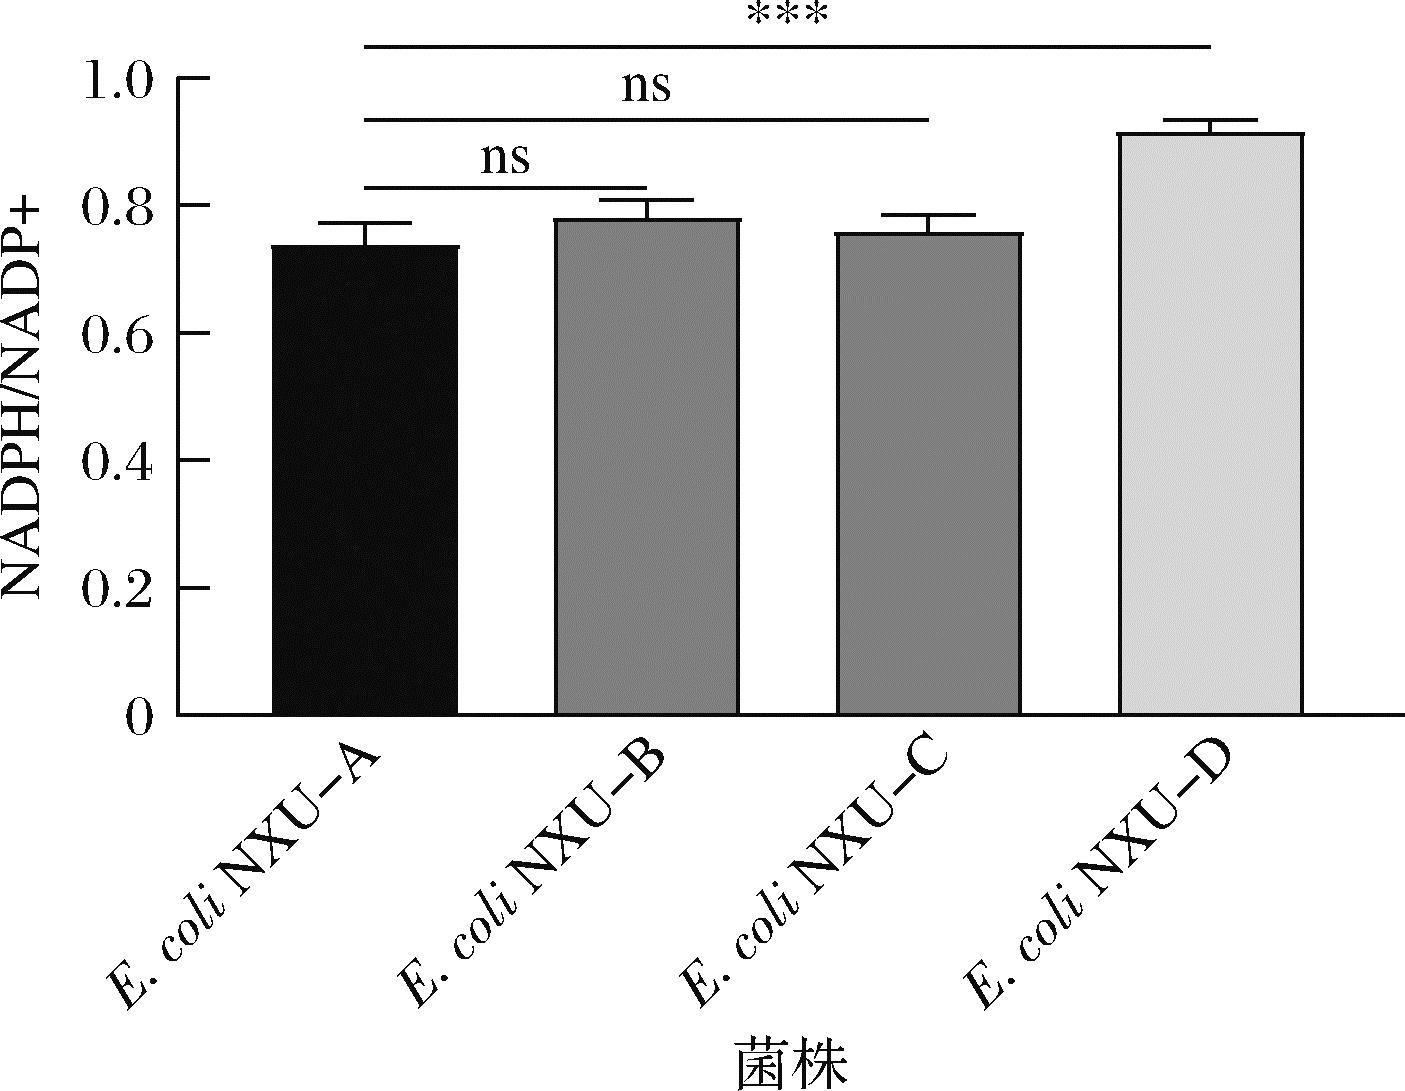
图7 弱化L-Ala途径对细胞内NADPH/NADP+比值的影响
Fig.7 Effect of L-Ala pathway attenuation on the intracellular NADPH/NADP+ ratio
3 结论
本研究基于CRISPR-Cas9技术组合敲除丙氨酸转氨酶基因alaA和alaC,有效阻断了副产物L-Ala的合成竞争,实现了中心代谢节点丙酮酸的碳流重定向。该改造策略有效促进了L-Ile合成途径中关键酶基因的表达水平,并显著提高了胞内NADPH/NADP+比值,最终使L-Ile产量与糖酸转化率均得到显著提升。上述结果证实,以丙酮酸节点为靶点的“节流”策略能够有效优化碳代谢分配,协同增强目标产物的合成效率,为构建L-Ile及其他以丙酮酸为前体的氨基酸高产底盘细胞提供了理论依据。
尽管本研究构建的工程菌株在L-Ile产量上与文献最高水平尚有差距,且合成途径仍存在反馈抑制等问题,但本研究为理性重构以丙酮酸为前体的氨基酸合成底盘细胞提供了理论依据与实践案例。后续研究将基于转录组与代谢组学分析,通过解除反馈抑制、强化前体供应及动态调控等多维策略,对菌株进行系统优化,以期进一步提升L-Ile的合成能力。
[1] Song J, Zhuang M M, Du C Y, et al.Metabolic engineering of Escherichia coli for self-induced production of L-isoleucine[J].ACS Synthetic Biology, 2025, 14(1):179-192.
[2] Lu N, Wei M H, Yang X J, et al.Growth-coupled production of L-isoleucine in Escherichia coli via metabolic engineering[J].Metabolic Engineering, 2024, 86:181-193.
[3] Shi C R, Huo X J, You R, et al.High yield production of L-isoleucine through readjusting the ratio of two direct precursors in Escherichia coli[J].Bioresource Technology, 2025, 418:131889.
[4] Wang X Y.Strategy for improving L-isoleucine production efficiency in Corynebacterium glutamicum[J].Applied Microbiology and Biotechnology, 2019, 103(5):2101-2111.
[5] Park J H, Oh J E, Lee K H, et al.Rational design of Escherichia coli for L-isoleucine production[J].ACS Synthetic Biology, 2012, 1(11):532-540.
[6] 芦楠, 李宇虹, 陈宁, 等.L-异亮氨酸及其衍生物代谢工程研究进展[J].食品与发酵工业, 2021, 47(9):307-313.Lu N, Li Y H, Chen N, et al.Advances on metabolic engineering of L-isoleucine and its derivatives[J].Food and Fermentation Industries, 2021, 47(9):307-313.
[7] Wang J, Wen B, Xu Q Y, et al.Optimization of carbon source and glucose feeding strategy for improvement of L-isoleucine production by Escherichia coli[J].Biotechnology &Biotechnological Equipment, 2015, 29(2):374-380.
[8] 吴晨, 王泽婷, 赵桂红, 等.系统代谢工程改造谷氨酸棒杆菌高产L-丙氨酸[J].食品与发酵工业, 2023, 49(21):9-17.Wu C, Wang Z T, Zhao G H, et al.Systems metabolic engineering of Corynebacterium glutamicum for the efficient production of L-alanine[J].Food and Fermentation Industries, 2023, 49(21):9-17.
[9] 杨晟, 蒋宇, 范文超, 等.一种去除制备中性氨基酸的反应体系中的丙氨酸的方法:CN200910047124.4[P].2025-09-24.Yang S, Jiang Y, Fan W C, et al.A method for removing alanine from the reaction system for preparing neutral amino acids:CN200910047124.4[P].2025-09-24.
[10] 俞铮, 彭奇均.一种从异亮氨酸液中分离提纯异亮氨酸的方法:CN200810196712.X[P].2025-09-24.Yu Z, Peng Q J.A method for separation and purification of isoleucine from isoleucine solution:CN200810196712.X[P].2025-09-24.
[11] Zhang Q Q, Wang Y H, Wang X L, et al.Metabolic engineering of Escherichia coli for efficient L-isoleucine production based on the citramalate pathway[J].Journal of Agricultural and Food Chemistry, 2025, 73(19):11900-11911.
[12] Wang J, Wen B, Wang J, et al.Enhancing L-isoleucine production by thrABC overexpression combined with alaT deletion in Corynebacterium glutamicum[J].Applied Biochemistry and Biotechnology, 2013, 171(1):20-30.
[13] 刘佳峰, 乔郅钠, 赵有玺, 等.理性代谢工程改造促进谷氨酸棒杆菌高效合成 L-谷氨酸[J].生物工程学报, 2023, 39(8):3273-3289.Liu J F, Qiao Z N, Zhao Y X, et al.Rational metabolic engineering of Corynebacterium glutamicum for efficient synthesis of L-glutamate[J].Chinese Journal of Biotechnology, 2023, 39(8):3273-3289.
[14] 孟帅帅, 黄钦耿, 吴松刚, 等.丙氨酸转氨酶修饰对大肠杆菌L-色氨酸合成的影响[J].生物技术通报, 2020, 36(1):66-72.Meng S S, Huang Q G, Wu S G, et al.Effects of modification of alanine aminotransferase on synthesis of L-tryptophan in Escherichia coli[J].Biotechnology Bulletin, 2020, 36(1):66-72.
[15] Pe a-Soler E, Fernandez F J, López-Estepa M, et al.Structural analysis and mutant growth properties reveal distinctive enzymatic and cellular roles for the three major L-alanine transaminases of Escherichia coli[J].PLoS One, 2014, 9(7):e102139.
[16] Kim S H, Schneider B L, Reitzer L.Genetics and regulation of the major enzymes of alanine synthesis in Escherichia coli[J].Journal of Bacteriology, 2010, 192(20):5304-5311.
[17] Wang M D, Liu L, Wang B M, et al.Cloning and characterization of the Escherichia coli K-12 alanine-valine transaminase (avtA) gene[J].Journal of Bacteriology, 1987, 169(9):4228-4234.
[18] 韩梦圆, 王萌, 高明亮, 等.大肠杆菌LG101生物合成L-丙氨酸特征及作为细胞增殖调控节点的研究[J].微生物学通报, 2025, 52(3):980-991.Han M Y, Wang M, Gao M L, et al.Biosynthetic pathways of L-alanine and their role in the regulation of cell proliferation in Escherichia coli LG101[J].Microbiology China, 2025, 52(3):980-991.
[19] Li J Y, Shen J W, Ye W Y, et al.Dynamically metabolic engineering overflow metabolism for efficient production of L-Alanine in Escherichia coli[J].Bioresource Technology, 2025, 428:132446.
[20] Jiang Y, Chen B, Duan C L, et al.Multigene editing in the Escherichia coli genome via the CRISPR-Cas9 system[J].Applied &Environmental Microbiology, 2015, 81(7):2506.
[21] Pan L T, Cha L J, Wang H, et al.The CRISPR/Cas9-mediated knockout of VgrG2 in wild pathogenic E.coli to alleviate the effects on cell damage and autophagy[J].Veterinary Sciences, 2025, 12(3):249.
[22] He X L, Ren Y W, Meng W L, et al.Knocking out analysis of the CpxP gene using CRISPR/Cas9 in Escherichia coli MG1655[J].AMB Express, 2020, 10(1):172.
[23] 何滋, 梁山泉, 刘丹, 等.工程大肠杆菌利用甘油和乳糖高效合成2’-岩藻糖基乳糖[J].食品科学, 2024, 45(18):99-105.He Z, Liang S Q, Liu D, et al.Efficient biosynthesis of 2’-fucosyllactose using glycerol and lactose in engineered Escherichia coli[J].Food Science, 2024, 45(18):99-105.
[24] 朱森康, 黄磊, 李燕飞, 等.制备高效大肠杆菌电转化感受态细胞和电转化条件的研究[J].生物技术通报, 2011,27(10):206-209.Zhu S K, Huang L, Li Y F, et al.Preparation of efficient electrotransformation competent cells of Escherichia coli and condition of electrotransformation[J].Biotechnology Bulletin, 2011,27(10):206-209.
[25] 赵英莲, 牟德华, 李艳.2,4-二硝基氟苯柱前衍生HPLC检测树莓中游离氨基酸[J].食品科学, 2015, 36(6):178-182.Zhao Y L, Mou D H, Li Y.High performance liquid chromatographic analysis of free amino acids in raspberry using pre-column derivatization with 2,4-dinitro uorobenzene[J].Food Science, 2015, 36(6):178-182.
[26] 汪吉鹏, 朱滕滕, 刘璐, 等.λ-Red重组技术结合复合诱变提高大肠杆菌L-异亮氨酸合成能力[J].食品工业科技, 2025, 46(2):167-174.Wang J P, Zhu T T, Liu L, et al.Enhancing the ability of Escherichia coli to synthesise L-Isoleucine using λ-red recombinant technology combined with complex mutagenesis[J].Science and Technology of Food Industry, 2025, 46(2):167-174.
[27] Guan Q H, Li W H, Dai M, et al.Key factors uncovered by transcriptomic analysis in the regulation of glutamic acid repressing the browning of fresh-cut potatoes[J].Postharvest Biology &Technology, 2025, 219:113242.
[28] Li S G, Xu J L, Cai Z X, et al.Comparative transcriptomics of Monilinia fructicola-resistant and-susceptible peach fruit reveals gene networks associated with peach resistance to brown rot disease[J].Postharvest Biology and Technology, 2025, 219:113254.
[29] 周丽, 陈献忠, 李金阳, 等.协调大肠杆菌代谢途径高效合成L-丙氨酸的方法:CN202411077399[P].2025-09-24.Zhou L, Chen X Z, Li J Y, et al.Method for efficient synthesis of L-Alanine by coordinating the metabolic pathway of Escherichia coli:CN202411077399[P].2025-09-24.
[30] Rodriguez A, Martnez J A, Flores N, et al.Engineering Escherichia coli to overproduce aromatic amino acids and derived compounds[J].Microbial Cell Factories, 2014, 13:126.
[31] Zampieri M, Hörl M, Hotz F, et al.Regulatory mechanisms underlying coordination of amino acid and glucose catabolism in Escherichia coli[J].Nature Communications, 2019, 10:3354.
[32] Ida K, Ishii J, Matsuda F, et al.Eliminating the isoleucine biosynthetic pathway to reduce competitive carbon outflow during isobutanol production by Saccharomyces cerevisiae[J].Microbial Cell Factories, 2015, 14:62.
[33] Wess J, Brinek M, Boles E.Improving isobutanol production with the yeast Saccharomyces cerevisiae by successively blocking competing metabolic pathways as well as ethanol and glycerol formation[J].Biotechnology for Biofuels, 2019, 12:173.
[34] Gao H, Tuyishime P, Zhang X, et al.Engineering of microbial cells for L-valine production:challenges and opportunities[J].Microbial Cell Factories, 2021, 20(1):172.
[35] 刘萍萍, 郭恒华, 张冬竹, 等.L-丙氨酸厌氧发酵关键技术及产业化[J].生物工程学报, 2022, 38(11):4329-4334.Liu P P, Guo H H, Zhang D Z, et al.Key technology for anaerobic fermentation of L-alanine and its commercialization[J].Chinese Journal of Biotechnology, 2022, 38(11):4329-4334.
[36] 陈进聪, 陈雪岚, 张斌, 等.NADPH代谢对氨基酸生物合成影响的研究进展[J].食品科学, 2014, 35(19):280-284.Chen J C, Chen X L, Zhang B, et al.Progress in the study of NADPH metabolism in biosynthesis of amino acids[J].Food Science, 2014, 35(19):280-284.