葡萄酒的风味与品质核心在于酵母主导的酒精发酵过程,其中酿酒酵母(Saccharomyces cerevisiae)作为主力发酵菌种,其代谢活动直接决定了葡萄酒的理化特性与感官风格[1]。然而,我国葡萄酒产业长期以来高度依赖进口商业酿酒酵母,虽保障了发酵的稳定性,但也导致了产品风味的趋同,削弱了葡萄酒本应表达的“风土”个性与地域多样性[2]。反观法国、意大利等传统葡萄酒产区,已通过系统挖掘与利用本土酵母资源,成功塑造了具有鲜明识别度的葡萄酒风格[3]。因此,发掘、选育具有优良酿造特性的本土酵母,已成为提升我国葡萄酒产品风格化、提升核心竞争力的关键路径。
布拉迪酵母(Saccharomyces boulardii)是S.cerevisiae家族中兼具酿造学价值与益生功能的微生物资源之一,在分类学上,它被视为S.cerevisiae的亚种[4]。长期以来,其研究和应用主要集中在医学与益生菌领域,因其在预防与治疗抗生素相关性腹泻、艰难梭菌感染,以及维护肠道微生态健康方面具备显著功效,已得到广泛认可[5-6]。然而,除了突出的益生属性,S.boulardii同样继承了S.cerevisiae核心的酒精发酵能力,并展现出一些独特的酿造学潜力;许多S.boulardii菌株具有嗜杀活性,能够分泌毒素抑制野生酵母及腐败微生物,从而提升发酵过程的可控性与纯净度[7]。这种集基础发酵能力、环境适应性及生物防护特性于一身的特性,使其成为极具吸引力的新型葡萄酒发酵微生物资源[8]。若能将S.boulardii成功应用于葡萄酒酿造,不仅有望为产品注入独特的风味印记,还可能赋予其差异化的健康功能内涵。
尽管如此,目前国内对S.boulardii的研究几乎完全聚焦于其医学益生功能,而针对其系统性酿酒学特性评价及在葡萄酒酿造中的应用潜力探索仍严重滞后,相关菌种资源与基础数据匮乏[9]。为此,本研究以从河西走廊葡萄酒产区自然发酵醪液中分离、鉴定的6株本土S.boulardii菌株为研究对象,通过评估其生长动力学、发酵性能、环境耐受性、絮凝特性、产H2S能力及嗜杀活性等酿酒学特性,并与商业酿酒酵母对比,利用筛选出的优良菌株进行葡萄酒发酵试验,验证其实际酿造效果。本研究旨在为我国葡萄酒产业提供兼具优良酿造性能与特色功能的本土酵母菌种资源,并为开发具有自主知识产权和健康潜力的新型葡萄酒发酵剂奠定理论基础与数据支撑。
1 材料与方法
1.1 材料与试剂
1.1.1 菌株与原料
供试菌株为6株本土S.boulardii菌株,编号分别为M34、M49、HM66、HM19、BD27、CV18,由本课题组从河西走廊葡萄酒产区的自然发酵葡萄醪中分离、纯化获得。菌株经26S rDNA D1/D2区序列分析鉴定,采用BLAST程序通过NCBI数据库进行同源性对比,相似度大于≥99%作为菌株鉴定的依据(表1)。商业酿酒酵母活性干粉SC(Vintage Red),意大利Enartis公司;敏感菌株(Saccharomyces cerevisiae 1296, S.cerevisiae 1296),西北农林科技大学葡萄酒学院馈赠。
表1 本土S.boulardii菌株鉴定结果
Table 1 Identification of the local S.boulardii
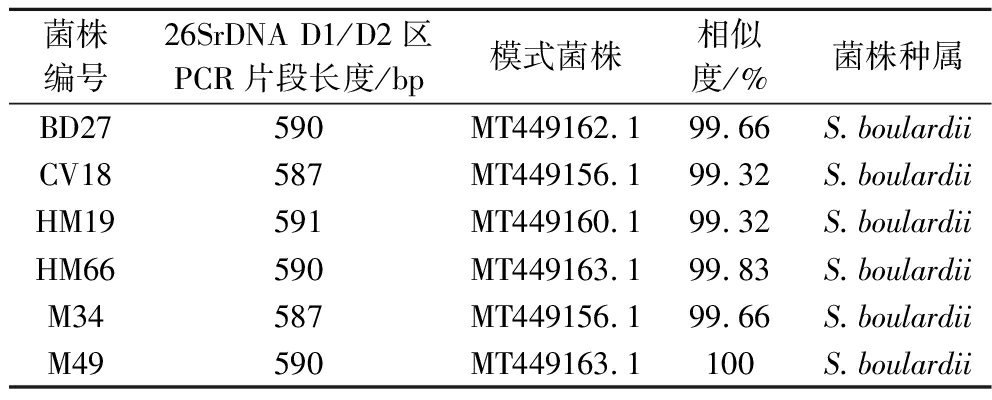
菌株编号26SrDNA D1/D2区PCR片段长度/bp模式菌株相似度/%菌株种属BD27590MT449162.199.66S.boulardiiCV18587MT449156.199.32S.boulardiiHM19591MT449160.199.32S.boulardiiHM66590MT449163.199.83S.boulardiiM34587MT449156.199.66S.boulardiiM49590MT449163.1100S.boulardii
葡萄原料为2024年9月采自甘肃农业大学酿酒葡萄种植园。其基本理化指标如下:长相思(Sauvignon Blanc),还原糖含量232.4 g/L,pH 3.40,可滴定酸含量(以酒石酸计)5.67 g/L;黑比诺(Pinot Noir),还原糖含量225.5 g/L,pH 3.60,可滴定酸含量(以酒石酸计)4.97 g/L。
1.1.2 培养基
YPD培养基(g/L):葡萄糖20、蛋白胨20、酵母浸粉10。制备固体培养基时添加琼脂20。用于酵母常规培养与活化。
亚硫酸铋葡萄糖甘氨酸酵母琼脂培养基(bismuth sulfite glucose glycine yeast agar, BIGGY):按说明书配制,用于检测酵母产H2S能力。
YPD-MB培养基(yeast extract peptone dextrose-methylene blue medium, YPD-MB)(g/L):在YPD液体培养基基础上,用0.1 mol/L柠檬酸-磷酸盐缓冲液调节pH值至4.6,并添加琼脂20.0和亚甲基蓝0.3。用于酵母嗜杀性检验。
所有培养基均于121 ℃高压灭菌20 min后备用。
1.1.3 培养基与试剂
无水葡萄糖、无水乙醇、柠檬酸(分析纯)、琼脂、蛋白胨、酵母浸粉(生化试剂),国药集团化学试剂有限公司;偏重亚硫酸钾,法国LAFFORT公司;NaCl(分析纯),天津市百世化工有限公司;2-辛醇(色谱纯)及其他26种用于挥发性化合物分析的标准品,美国Sigma-Aldrich贸易有限公司。
1.2 仪器与设备
AE224电子分析天平,德国赛多利斯公司;GI54DWS立式自动蒸汽灭菌器,厦门致微仪器有限公司;SW-CJ-2FD超净工作台,苏州安泰空气技术有限公司;H2050R台式高速冷冻离心机,长沙湘仪离心机仪器有限公司;SPX-150-11生化培养箱,上海跃进医疗器械有限公司;31048磁力搅拌器,郑州市亚荣仪器有限公司;WINESCAN S20 FLEX多功能葡萄酒分析仪,福斯华(北京)科贸有限公司;TRACE1310-ISQ气相色谱-质谱仪、1804178S全波长酶标仪,美国Thermo Scientific公司。
1.3 实验方法
1.3.1 菌株活化与种子液制备
将-80 ℃甘油管保藏的6株供试菌株划线接种于YPD固体培养基,28 ℃培养48 h。挑取单菌落接种于YPD液体培养基中,于28 ℃、150 r/min振荡培养24 h,作为一级种子液。取一级种子液按2%接种量转接至新鲜YPD液体培养基,相同条件下培养24 h,作为实验用种子液。
1.3.2 生长曲线测定
将各菌株种子液按2%接种量接种于YPD液体培养基中,28 ℃静置培养。每2 h取样,使用酶标仪测定600 nm处吸光度(OD600),以未接种培养基为空白对照。以培养时间为横坐标,OD600为纵坐标绘制生长曲线[10]。
1.3.3 发酵力测定
采用CO2失重法[11]。将种子液以2%接种量接入装有YPD液体培养基的发酵瓶(配备排气阀),28 ℃静置培养72 h。每隔12 h使用分析天平上精确称量发酵瓶总重并取平均值记录,计算CO2累积失重量。
1.3.4 耐受性测定
参照吴健等[12]的方法略作修改。将种子液以2%接种量分别接入含不同胁迫因子的YPD液体培养基中,28 ℃静置培养24 h后测定OD600,评估菌株生长相对活性。
乙醇耐受性:培养基中乙醇体积分数设置为3%、6%、9%、12%、15%、18%。
葡萄糖(高糖)耐受性:培养基中葡萄糖质量浓度设置为150、200、250、300、350、400 g/L。
SO2耐受性:添加偏重亚硫酸钾,使培养基中SO2质量浓度分别为100、150、200、250、300、350 mg/L。
pH耐受性:用HCl或NaOH调节YPD培养基初始pH至2.5、3.5、4.5、5.5、6.5。
1.3.5 嗜杀性测定
参照De Ullivarri等[13]的牛津杯抑菌法进行改进。将敏感指示菌S.cerevisiae 1296的菌悬液(约1×10⁶ CFU/mL)均匀涂布于YPD-MB平板。将10 μL待测菌种子液点种于平板中央,28 ℃培养3~4 d。观察并测量待测菌周围是否形成蓝色死菌带及透明抑菌圈。
1.3.6 产H2S特性测定
参照闫兴敏等[14]的方法,采用BIGGY琼脂显色法。将活化后的待测菌株点种于BIGGY平板,28 ℃培养3 d。根据菌落颜色深浅判断产H2S能力:白色(不产)、浅棕色(低产)、深棕色(中产)、黑色(高产)。
1.3.7 絮凝值测定
参照孔维涛等[15]的方法并稍作修改。收集对数生长期菌体,用无菌水和去絮凝缓冲液洗涤后,重悬于絮凝缓冲液中,立即测定OD600(A)。悬液静置30 min后,取上清测定OD600(B)。根据絮凝值(flocculation value,Flo)将菌株分为:高絮凝性(0%~30%)、中絮凝性(30%~70%)、低絮凝性(70%~100%)。
Flo计算如公式(1)所示:
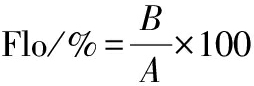
(1)
式中:Flo,絮凝值,%;A,在摇瓶前悬浮于絮凝缓冲液中的细胞吸光度;B,细胞絮凝沉降后的吸光度。
1.3.8 葡萄酒发酵实验
1.3.8.1 理化指标测定
以商业酿酒酵母SC为对照,将筛选出的优良菌株(M34、HM66、HM19)进行活化。葡萄汁经60 mg/L SO2处理后,分别接种优良菌株(接种量1×10⁶ CFU/mL)进行酒精发酵。每天监测还原糖变化,待残糖降至4 g/L以下视为发酵结束并取样。利用多功能葡萄酒分析仪测定酒样的乙醇、残糖、总酸、挥发酸和pH。
1.3.8.2 挥发性化合物测定
参考Gao等[16]的方法。SPME条件:8 mL酒样、2.5 g NaCl和10 μL内标(2-辛醇,820.7 mg/L)置于20 mL顶空瓶中,加入磁力搅拌子并密封,40 ℃水浴平衡30 min后顶空萃取30 min。GC-MS条件:采用TG-WAX色谱柱(60 m×0.25 mm,0.5 μm);程序升温:40 ℃保持5 min,3.5 ℃/min升至180 ℃并维持15 min;载气(He)流速1 mL/min,不分流;电子电离源(EI)70 eV;进样口温度240 ℃、传输线温度180 ℃、离子源温度250 ℃;质量扫描范围50~350 m/z。
香气化合物先经NIST、Wiley数据库检索比对,再结合谱图及C6~C22正构烷烃保留指数定性;以2-辛醇为内标物进行半定量分析。以目标化合物的峰面积与内标物峰面积之比计算浓度。香气物质含量计算如公式(2)所示:
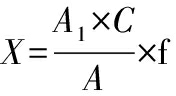
(2)
式中:X,香气物质质量浓度,μg/L;A1,测得香气物质的峰面积;f,内标物校正因子,1;C,内标物质量浓度,μg/L;A,内标物峰面积。
1.3.8.3 感官评价
参考赵美等[17]的方法稍作调整。感官品鉴由10名葡萄酒专业人员组成。对葡萄酒的外观(澄清度)、香气(花香、果香等)、口感(余味,平衡感等)及整体质量进行评价,具体评分标准如电子版增强出版附表1所示(https://doi.org/10.13995/j.cnki.11-1802/ts.045496,下同),每个样品重复分析3次,样品间通过饮水和食用饼干消除残留效应。
1.4 数据处理
利用Excel 2022软件进行数据整理,SPSS 25 进行单因素方差分析(ANOVA)及邓肯多重比较检验(P<0.05);使用Origin 2022 软件绘图。数据用“平均值±标准差”表示,所有实验均设3次重复。
2 结果与分析
2.1 菌株生长曲线
如图1所示,所有供试菌株均呈现典型的微生物生长曲线,经历延滞期(0~2 h)、对数生长期(2~14 h)与稳定期(16 h后)。与商业酿酒酵母SC相比,6株S.boulardii菌株表现出更优的适应性和生长潜力。值得注意的是,与商业酿酒酵母SC相比,6株本土S.boulardii菌株普遍表现出更优的生长潜力与适应性。其中,菌株HM66的生长动力学特性尤为突出,第10小时为对数生长期末期,且生物量(OD600)明显高于其他供试菌株(P<0.05)。这一特征表明HM66具有快速感知营养环境、高效启动细胞分裂与物质合成的能力,在发酵初期能迅速建立种群优势。该特性在实际发酵中至关重要,较短的延滞期可有效降低杂菌污染风险,减少如双乙酰前体物α-乙酰乳酸等不良代谢产物的积累,从而提高发酵纯度和效率[18]。
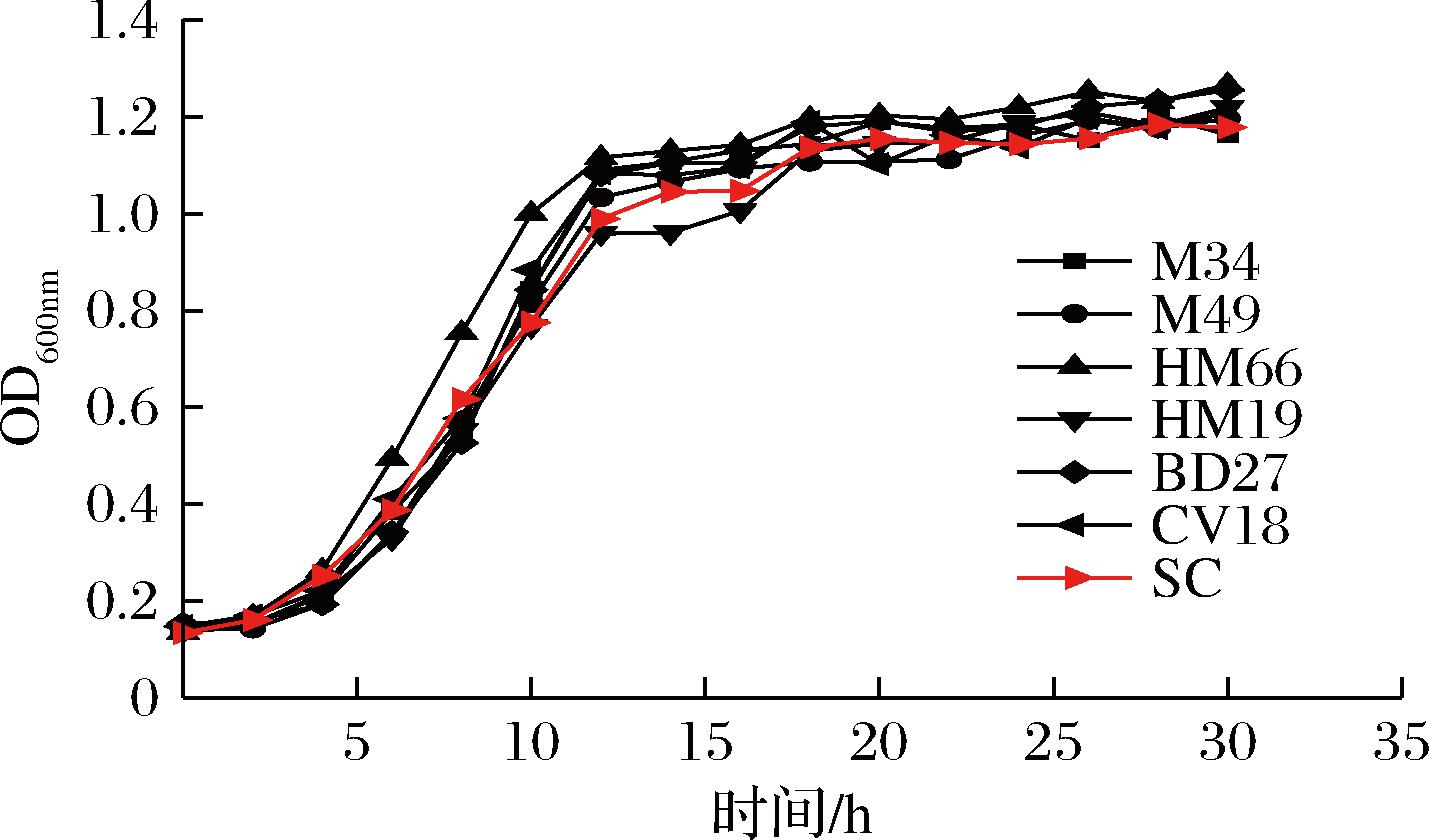
图1 不同酵母菌株生长曲线
Fig.1 Growth curve of different yeast strains
2.2 菌株发酵力分析
CO2累积失重量是评价酵母菌株发酵活力和代谢效率的关键指标,直接反映其对糖类的转化速率与酒精生成潜力[19]。如图2所示,各菌株在72 h内的CO2释放动态呈现明显差异,整体趋势表明所有菌株在24~72 h期间进入发酵旺盛期,CO2失重量随发酵时间延长显著上升(P<0.05)。在发酵初期(24 h),本土菌株M34表现出最快的启动能力,其CO2失重量(0.573 8 g/100 mL)与商业酿酒酵母SC无显著差异(P>0.05),说明M34具有迅速适应发酵环境并启动代谢的能力,这对缩短发酵滞后周期、降低杂菌污染风险具有重要意义。随着发酵进入中期(48 h),菌株SC的CO2失重量最高,菌株HM19的CO2失重量达到0.715 g/100 mL,相当于SC的85.6%,表现突出;而菌株M49的发酵力显著低于其他菌株(P<0.05),表明其代谢活性可能受限于某些酶系统或营养利用途径。至发酵后期(72 h),商业酵母SC仍保持最高的CO2释放总量,显著优于所有供试S.boulardii菌株,说明SC经过长期人工选育后确实具备高效、稳定的糖酵解能力。但值得注意的是,菌株HM19在72 h时的CO2失重量(0.794 2 g/100 mL)与SC的差距较中期有所缩小,说明其在发酵中后期仍能维持较强的代谢持续性,这可能与其对环境胁迫(如乙醇积累、营养耗竭)的适应性较强有关[20]。因此,综合来看,尽管S.boulardii菌株的整体发酵力不及商业酿酒酵母SC,但菌株M34、HM19和HM66在特定发酵阶段展现出接近或优于SC的代谢活性,表现出良好的发酵潜力。尤其HM19在中后期仍保持较高的CO2释放速率,说明其具有较好的发酵续航能力,适用于需较长发酵周期或高糖底物的酿造场景。
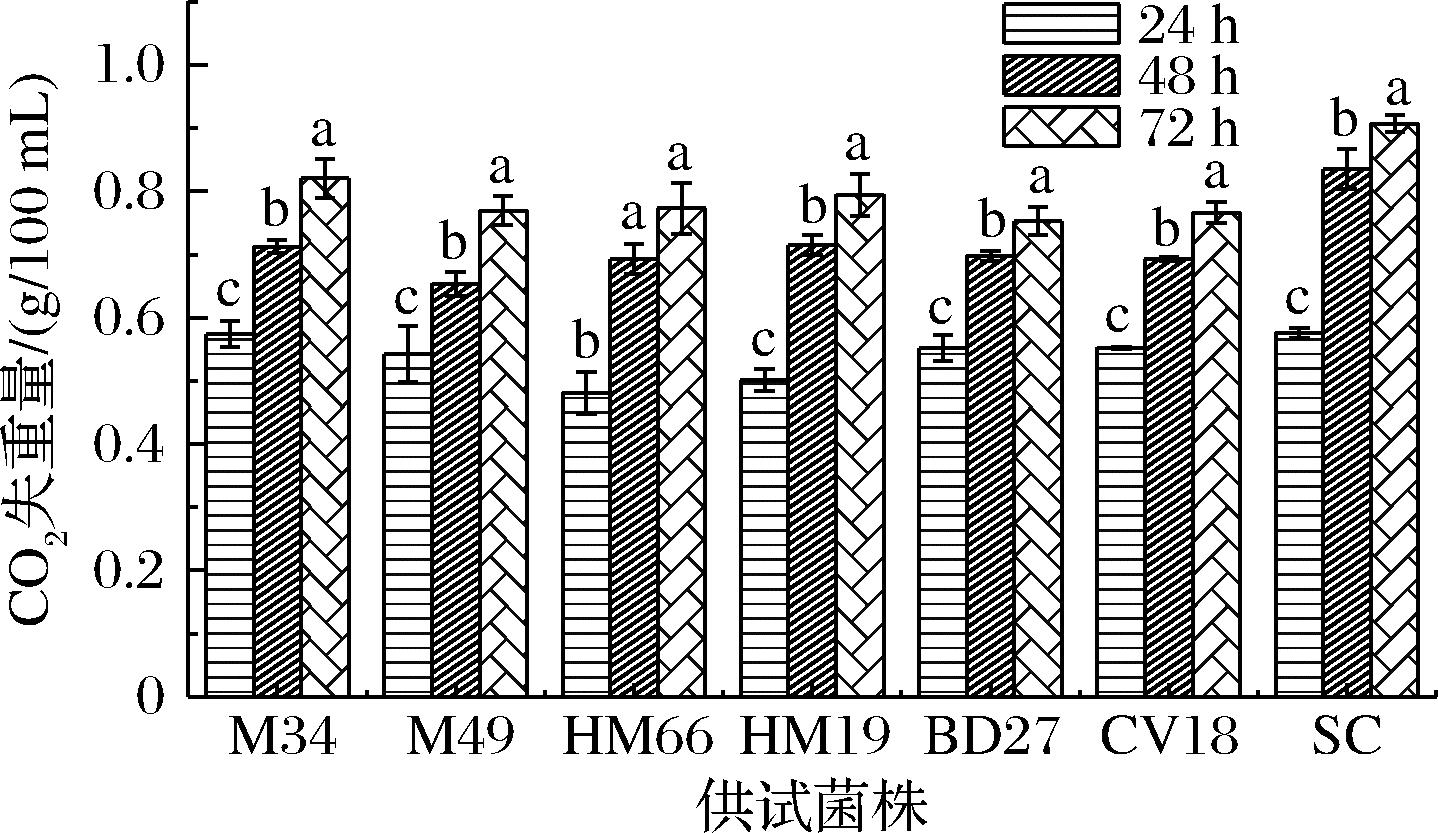
图2 不同酵母菌株发酵能力
Fig.2 Fermentation capacity of different yeast strains
注:不同小写字母表示显著差异(P<0.05)(下同)。
2.3 菌株的耐受性分析
2.3.1 乙醇耐受性分析
乙醇作为葡萄酒发酵主要产物,其积累会破坏酵母细胞膜流动性、抑制酶活性并干扰代谢,从而导致发酵停滞[21],乙醇耐受性是评价酵母发酵彻底性与稳定性的关键指标。图3-a显示,随乙醇浓度(3%~18%)升高,所有菌株生长活性均呈浓度依赖性下降,菌株M34与BD27在高乙醇(15%~18%)胁迫下仍维持较高存活率,耐受性最强,与其细胞膜不饱和脂肪酸比例高、甾醇合成能力强相关[22],适配高酒精度或高糖原料葡萄酒酿造;HM66与商业对照SC在乙醇体积分数超9%后活性显著降低,耐受性敏感,实际应用需通过控温、分阶段接种等措施保障发酵彻底性;M49、HM19、CV18为中等耐受性,12%乙醇浓度下仍具活性,适用于酒精度12%~13.5%的常规葡萄酒酿造。
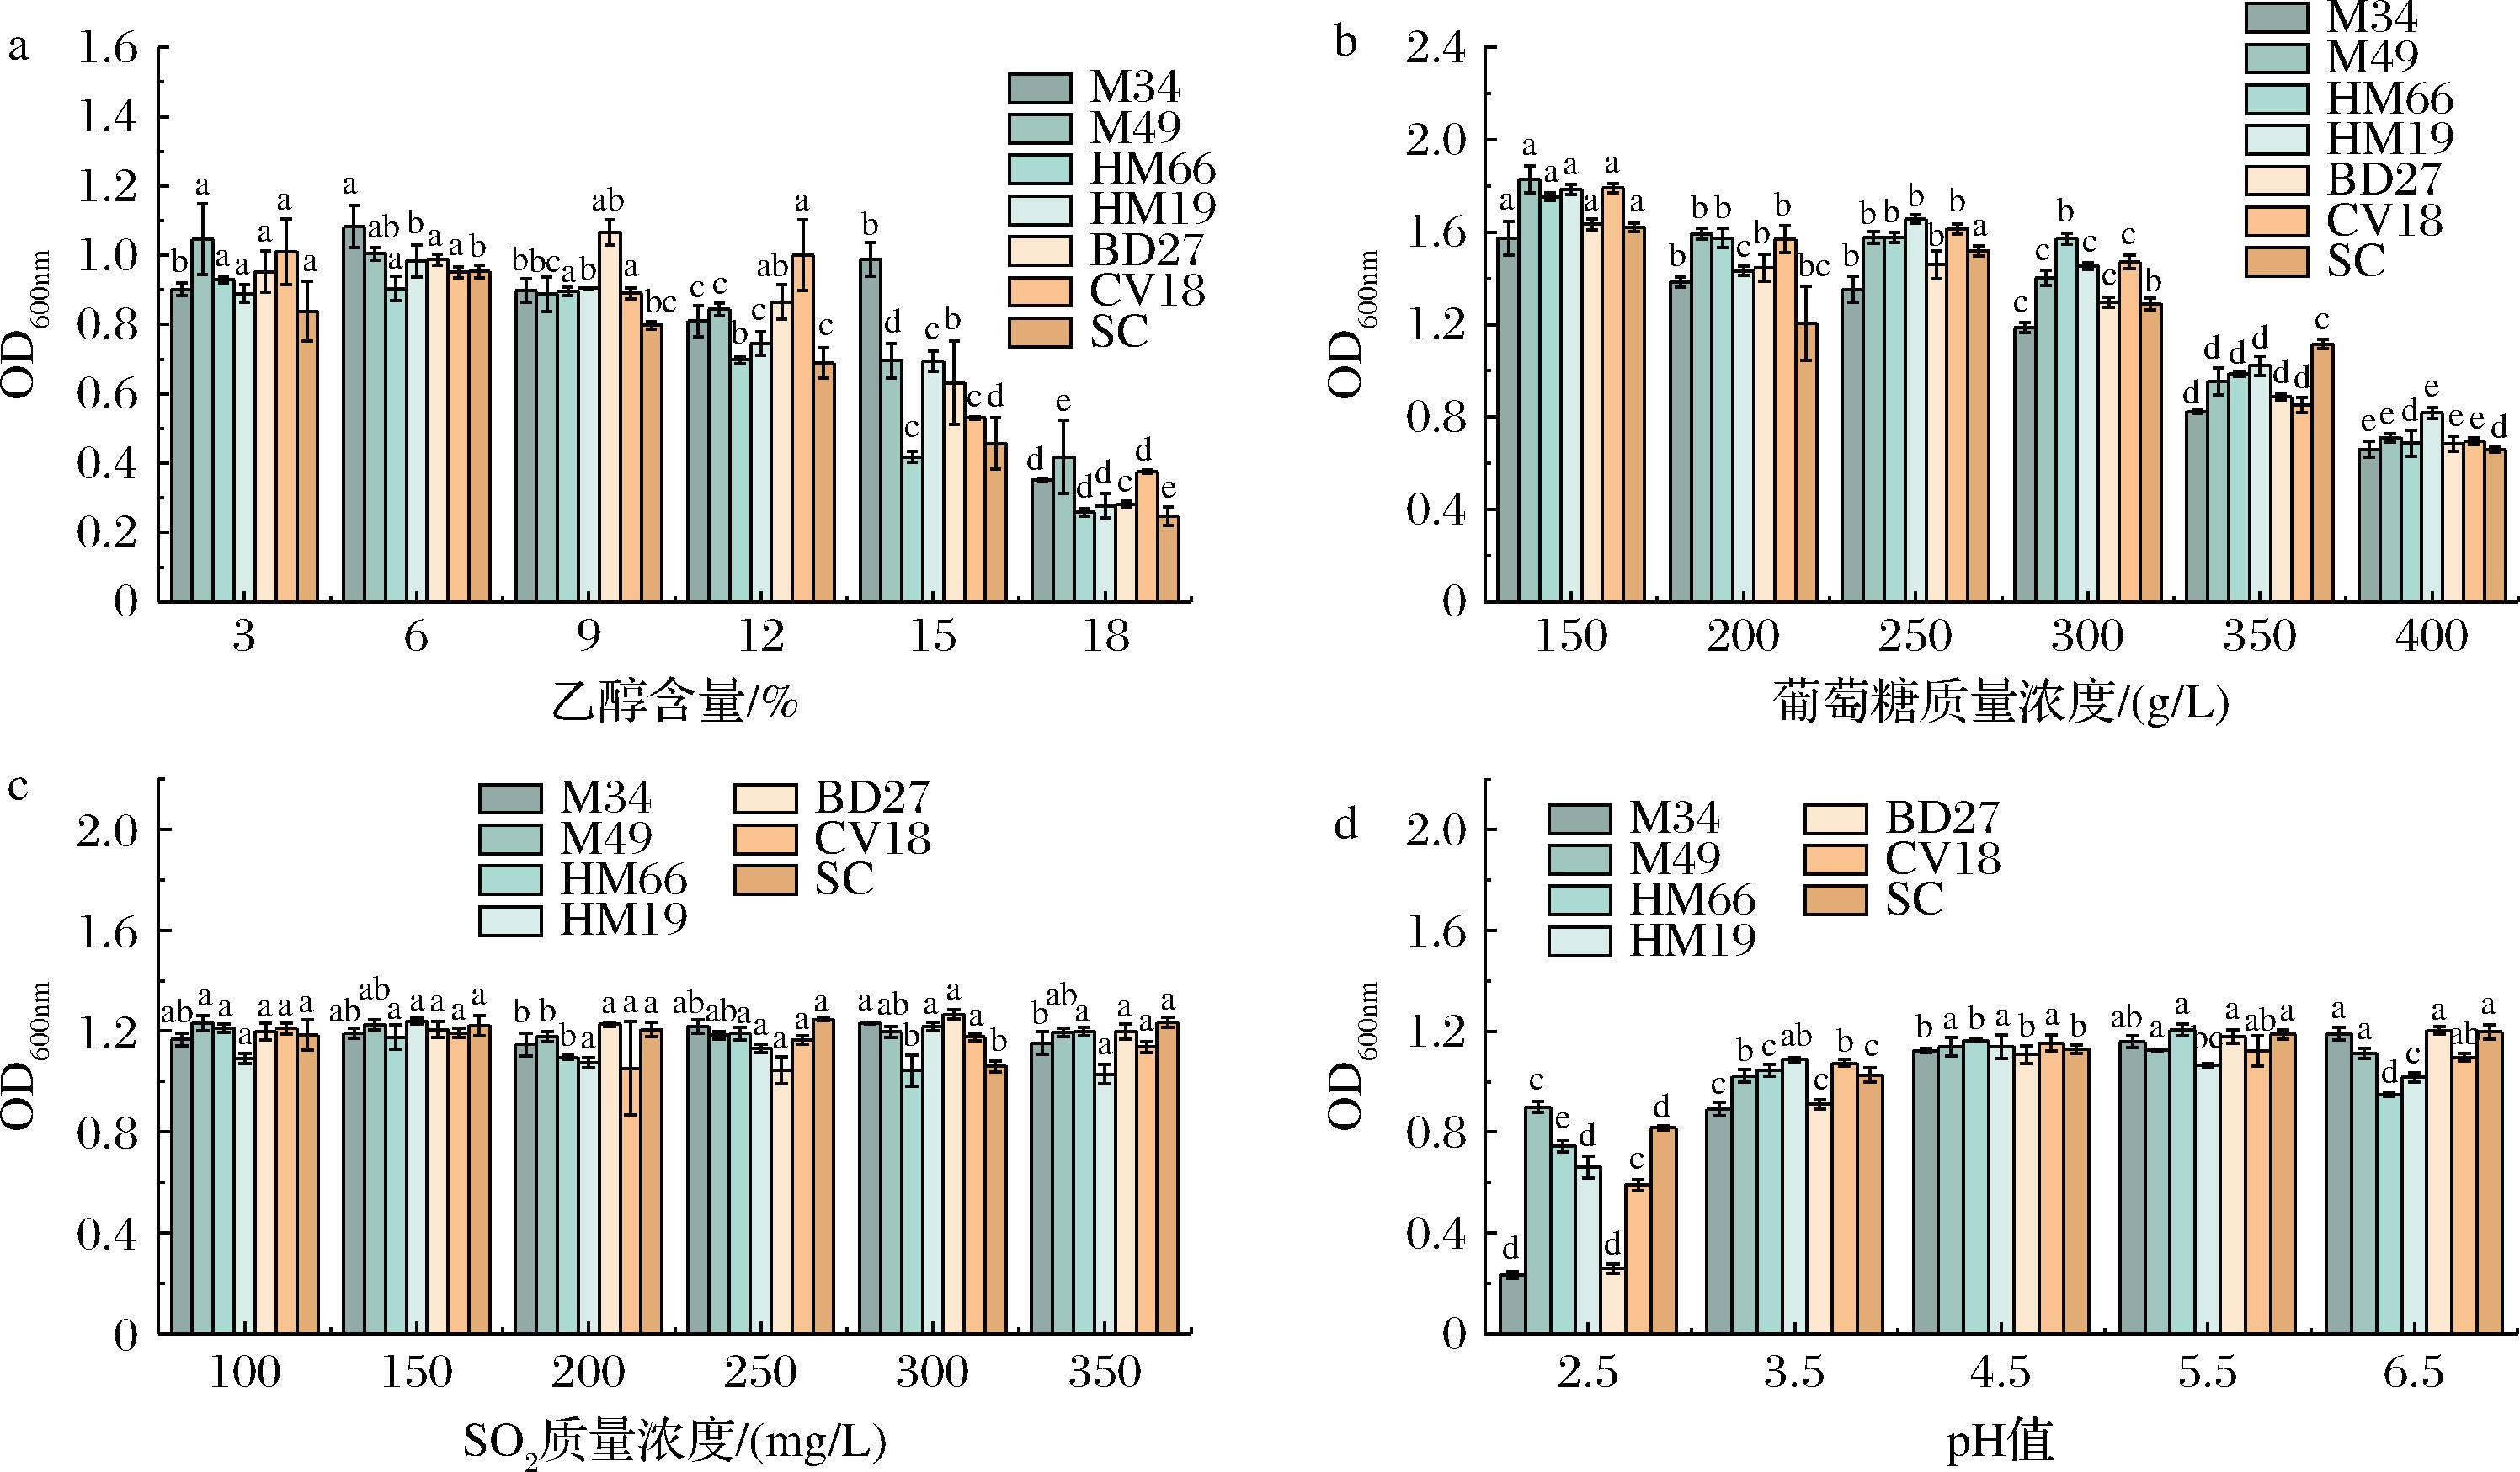
a-乙醇耐受性;b-葡萄糖耐受性;c-SO2耐受性;d-pH耐受性
图3 不同酵母菌株耐受性
Fig.3 Tolerance of different yeast strains
2.3.2 葡萄糖耐受性分析
葡萄糖作为酒精发酵主要碳源,高浓度(>250 g/L)会引发高渗胁迫、膜损伤及“Crabtree效应”,影响发酵彻底性[23],高糖耐受性是酵母适配高糖原料的关键指标。图3-b显示,各菌株生长响应随葡萄糖浓度(150~400 g/L)呈“先升后降”趋势,菌株间耐受性差异显著(P<0.05):HM19在350 g/L高糖下仍维持高活性,耐受性突出,推测与细胞壁结构紧密、甘油合成活跃等渗透压调节机制相关[24],适配晚收、风干葡萄等甜型或加强酒酿造;商业酵母SC在400 g/L极端高糖下表现稳定,印证其选育后的代谢适应优势;M49、HM66、CV18在200~300 g/L中等糖度下活性较高,适用于常规糖度葡萄酒酿造;M34与BD27对高渗环境敏感,各葡萄糖浓度下活性均较低,需谨慎评估其糖转化效率。HM19可作为高糖耐受核心候选菌株,为高糖原料葡萄酒酿造提供支撑。
2.3.3 SO2耐受性分析
SO2是葡萄酒酿造中常用的抗氧化与抑菌剂,过高游离SO2会抑制酵母生长代谢[25],筛选SO2耐受菌株对降低SO2添加量、推动低硫酿造具有重要意义。图3-c显示,随SO2质量浓度(100~350 mg/L)升高,各菌株生长响应分化显著(P<0.05):M49与商业对照SC在全浓度梯度下均维持高稳定活性,SO2耐受性突出,推测与高效抗氧化系统、低细胞膜通透性相关[26];HM66与CV18在SO2超200 mg/L后活性显著下降,耐受性敏感,实际应用需严控SO2添加时机与剂量;M34、HM19与BD27为中等适应性,250 mg/L以下保持可观生长能力,适用于常规SO2添加量的酿造场景。
2.3.4 pH耐受性
pH作为影响酵母生长、酶活力及膜稳定性的关键因子,葡萄酒发酵低pH环境(3.0~4.0)对酵母耐酸能力提出要求,阐明菌株pH适应性是评估其酿造适用性的重要基础。图3-d显示,各菌株在初始pH 2.5~6.5下生长响应差异显著(P<0.05),多数菌株在pH 4.5~5.5活性最高;HM19在低pH(3.5~4.5)时仍维持高活性,耐酸适应性突出,推测与细胞膜H+-ATPase泵活性强、胞内pH稳态调控优异相关[27],适配高酸原料酿造;M34与BD27在pH 5.5~6.5活性更高,酸性环境适应性有限,低pH条件下需关注发酵效率;M49、HM66、CV18在宽范围pH(3.5~5.5)内生长良好,pH适应性广,适用于常规酿造。
2.4 菌株絮凝值分析
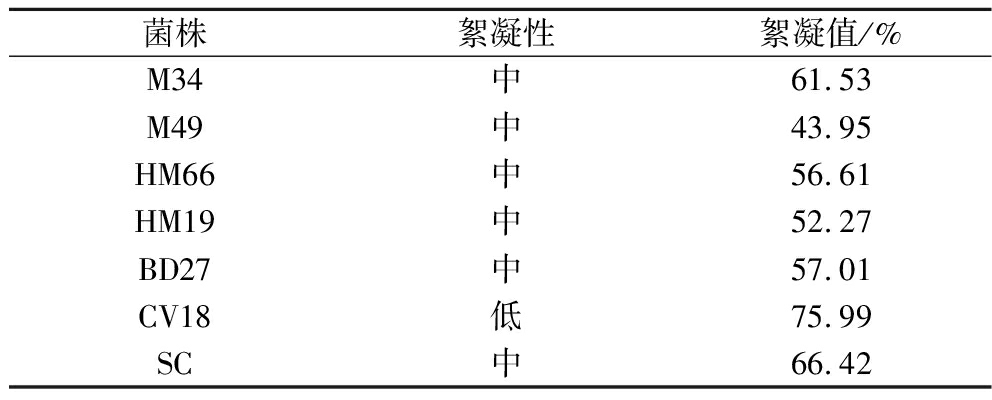
酵母絮凝性是细胞发酵后期形成聚集体沉降的能力,直接影响酒体自然澄清速度、酒泥分离效率及葡萄酒澄清度与稳定性[28],是评价酿酒酵母后期加工适宜性的关键工艺性状。由表2可知,供试菌株絮凝能力差异显著:CV18絮凝值最高(75.99%),为低絮凝型,细胞悬浮时间长,适配二次发酵或酒泥陈酿工艺;M49絮凝值最低(43.94%),属高絮凝型,沉降快速彻底,简化生产流程、降低过滤成本,适合静态葡萄酒酿造[14];M34、HM66、HM19、BD27及商业对照SC絮凝值介于44%~67%,为中絮凝型,在沉降速度与悬浮持续性间达成平衡,通用性强,适用于多数葡萄酒酿造工艺。
表2 不同酵母菌株的Flo值
Table 2 Flo value of different yeast strains
菌株絮凝性絮凝值/%M34中61.53M49中43.95HM66中56.61HM19中52.27BD27中57.01CV18低75.99SC中66.42
2.5 菌株产H2S能力分析
H2S是酵母在硫代谢过程中产生的主要挥发性硫化物,其过量生成会赋予葡萄酒类似“臭鸡蛋”、“燧石”或“橡胶”的还原性异味,严重损害酒质与香气纯净度[29]。因此,筛选低产H2S的菌株是控制葡萄酒还原病害、保障果香表达的关键。结果显示(图4),不同菌株间H2S产量差异显著。菌株M49完全不产生H2S,而菌株M34与商业酵母SC仅产生微量,均属于低产型。这些菌株的硫酸盐同化途径(从硫酸盐还原为H2S)或含硫氨基酸分解代谢可能受到更精准的调控,倾向于将硫元素整合至生物分子(如甲硫氨酸、谷胱甘肽)中,而非以H2S形式释放[30]。在实际酿造中,使用此类菌株可大幅降低因酵母代谢引发的还原味缺陷风险,尤其适用于以清新果香为主导的葡萄酒酿造。菌株HM19与BD27产生中等量的H2S。值得注意的是,本研究供试菌株中未发现高产H2S(菌落黑色)类型,整体表现优于许多报道的酿酒酵母,显示出S.boulardii作为酿酒微生物在硫代谢调控方面的潜在优势。
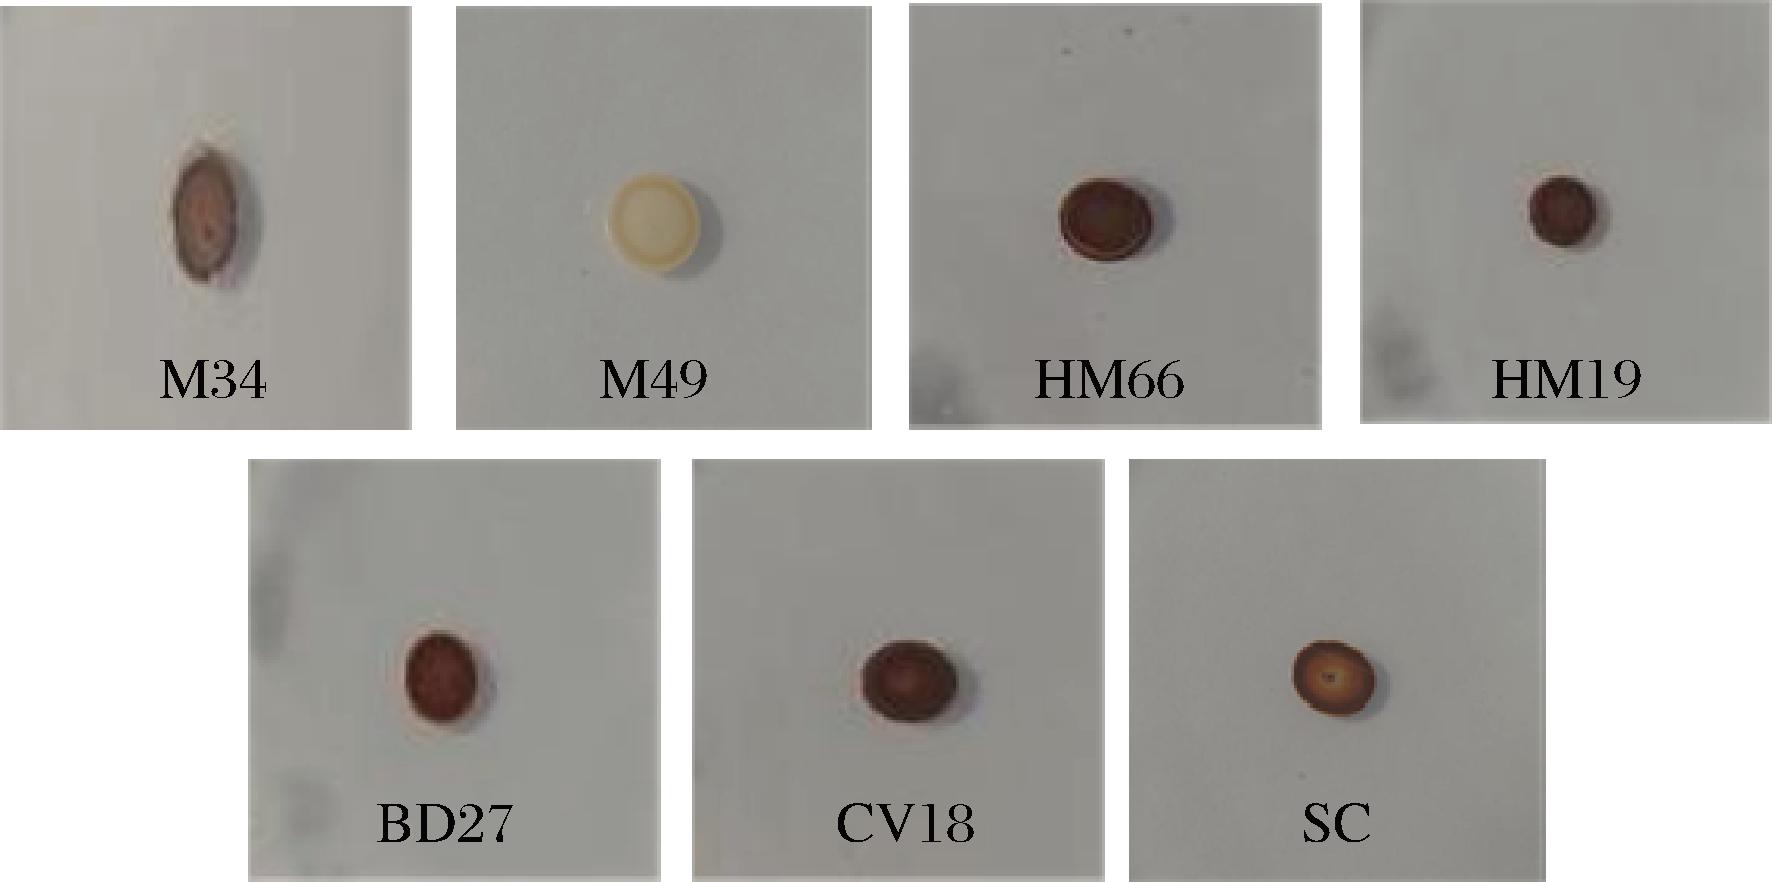
图4 不同酵母菌株产H2S能力
Fig.4 Ability of different yeast strains to produce H2S
2.6 菌株嗜杀性分析
嗜杀性是指某些酵母菌株能分泌蛋白质毒素(嗜杀毒素),抑制或杀死同种或近缘敏感酵母菌株的特性。在葡萄酒自然发酵或接种发酵体系中,这一特性是决定菌株生态竞争能力、保障接种菌株主导地位、防止野生酵母或腐败酵母污染的关键生物学因素[31]。结果表明(图5),除CV18外,其余5株本土S.boulardii(M34、M49、HM66、HM19、BD27)均在其菌落周围形成了清晰、直径显著的透明抑菌圈,证实它们具有显著的嗜杀活性。其中,菌株M34与HM66的抑菌圈直径更大,表现出更强的毒素产生或分泌能力。嗜杀活性在葡萄酒酿造实践中具有重要应用价值,可通过抑制野生酵母、降低发酵风险为发酵提供保障,同时为开发低SO2生物保护型发酵剂提供新方向[32]。菌株CV18未表现出嗜杀活性,属于敏感型。这意味着在实际应用中,需确保其发酵环境洁净或通过足量接种来保障其竞争优势。
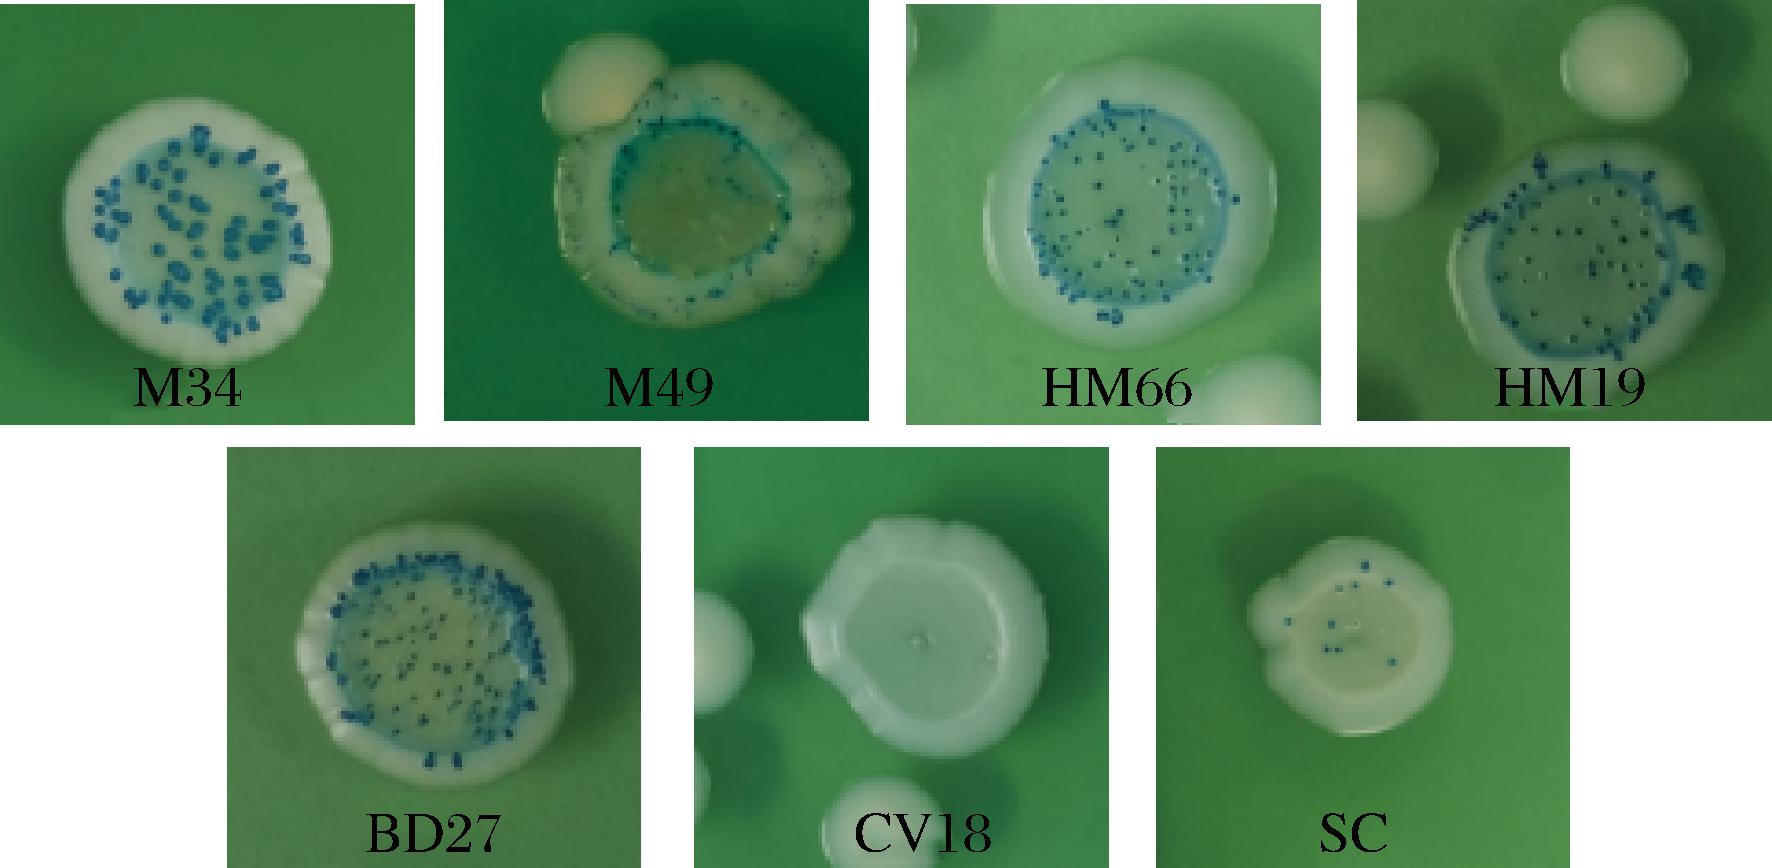
图5 酵母的嗜杀结果
Fig.5 Killing results of sensitive strains to yeasts
2.7 葡萄汁发酵试验
2.7.1 基本理化指标分析
酵母菌在发酵过程中对糖的转化能力可以由发酵液中的残糖量反映,发酵结束后,若残糖量低,则表明酵母发酵彻底,对糖的利用能力高,发酵能力强[33]。由表3、表4可知,各酒样残糖含量均<4 g/L,表明酒精发酵完全。SC的糖转化效率最优,长相思和黑比诺酒精度分别达13.3%和14.0%,且残糖含量最低,菌株M34糖转化效率最优,菌株HM66糖转化效率最低。优势酵母菌株可通过调控中心代谢通路提升底物利用效率,而发酵能力较低的菌株常存在代谢应激响应缺陷进而造成糖利用不充分[34]。所有菌株产物总酸(4.0~8.0 g/L)和pH(3.0~4.0)均符合国家标准GB/T 15037—2006《葡萄酒》,且S.boulardii菌株总酸普遍高于SC,其中HM66菌株发酵的长相思酒样总酸达7.67 g/L,较SC菌株高出0.85 g/L,这种总酸差异可能赋予S.boulardii发酵酒品更明快的口感层次,同时较低的pH值环境能有效抑制醋酸菌等腐败微生物生长,为酒品提供天然的微生物稳定性保障,这与Feifel等[35]关于酸类物质对葡萄酒感官及稳定性影响的研究结论一致。所有菌株产物挥发酸含量均显著低于国标限值(≤1.2 g/L)表明发酵过程无明显杂菌污染,菌株发酵稳定性良好。
表3 长相思葡萄汁发酵结束后的理化指标
Table 3 Physicochemical indices of Sauvignon Blanc grape juice after fermentation completion
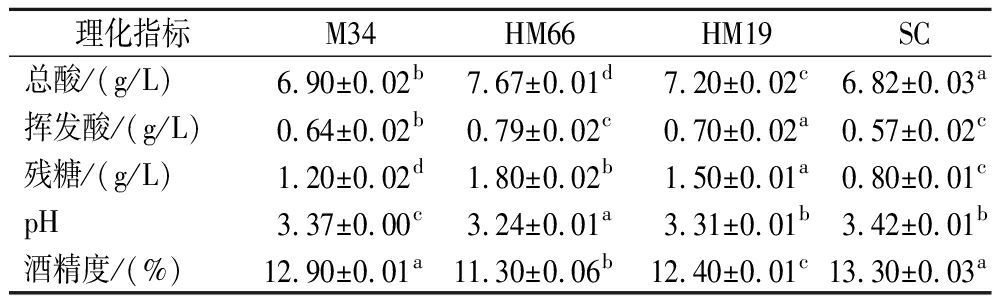
理化指标M34HM66HM19SC总酸/(g/L)6.90±0.02b7.67±0.01d7.20±0.02c6.82±0.03a挥发酸/(g/L)0.64±0.02b0.79±0.02c0.70±0.02a0.57±0.02c残糖/(g/L)1.20±0.02d1.80±0.02b1.50±0.01a0.80±0.01cpH3.37±0.00c3.24±0.01a3.31±0.01b3.42±0.01b酒精度/(%)12.90±0.01a11.30±0.06b12.40±0.01c13.30±0.03a
注:同一行不同小写字母表示显著差异(P<0.05)(下同)。
表4 黑比诺葡萄汁发酵结束后的理化指标
Table 4 Physicochemical indices of Pinot Noir grape juice after alcoholic fermentation
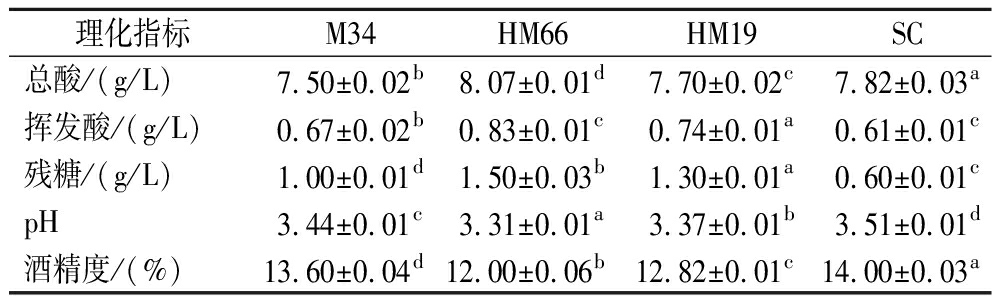
理化指标M34HM66HM19SC总酸/(g/L)7.50±0.02b8.07±0.01d7.70±0.02c7.82±0.03a挥发酸/(g/L)0.67±0.02b0.83±0.01c0.74±0.01a0.61±0.01c残糖/(g/L)1.00±0.01d1.50±0.03b1.30±0.01a0.60±0.01cpH3.44±0.01c3.31±0.01a3.37±0.01b3.51±0.01d酒精度/(%)13.60±0.04d12.00±0.06b12.82±0.01c14.00±0.03a
2.7.2 挥发性香气化合物种类和浓度分析
两类葡萄酒中共鉴定出78种挥发性香气化合物,涵盖6大类物质,包括27种酯类、20种高级醇、10种萜烯类、6种脂肪酸、12种醛酮类物质及3种其他化合物(见附表2)。图6呈现了不同菌株发酵酒样中挥发性化合物的浓度差异。分析显示,57种化合物为所有酒样共有,体现酿酒酵母代谢核心保守性;另有5种化合物为S.boulardii处理组特有(如反-4-癸烯酸乙酯、顺-6-壬烯醇),未在SC对照组检出。菌株HM66发酵黑比诺、长相思分别检出73种、71种化合物,平均丰富度显著高于其他菌株。图6-a显示,菌株M34发酵黑比诺的酯类总浓度最高(6 791.77 μg/L),显著高于SC(3 379.50 μg/L),其中脂肪酸乙酯(己酸乙酯、辛酸乙酯)的浓度提升最为明显(较SC高85%~120%)。图6-b显示,菌株HM19的萜烯类总浓度最高(91.40 μg/L,其中芳樟醇(花香、柠檬味)、香茅醇(柠檬味、玫瑰味)的浓度均超过阈值5~10倍,可显著强化长相思的典型花香特征;与SC对照组相比,S.boulardii处理不仅增加了香气化合物种类,酯类、萜烯类等关键风味物质的浓度也显著提升,为葡萄酒风味品质优化与风土差异化表达提供了物质基础。
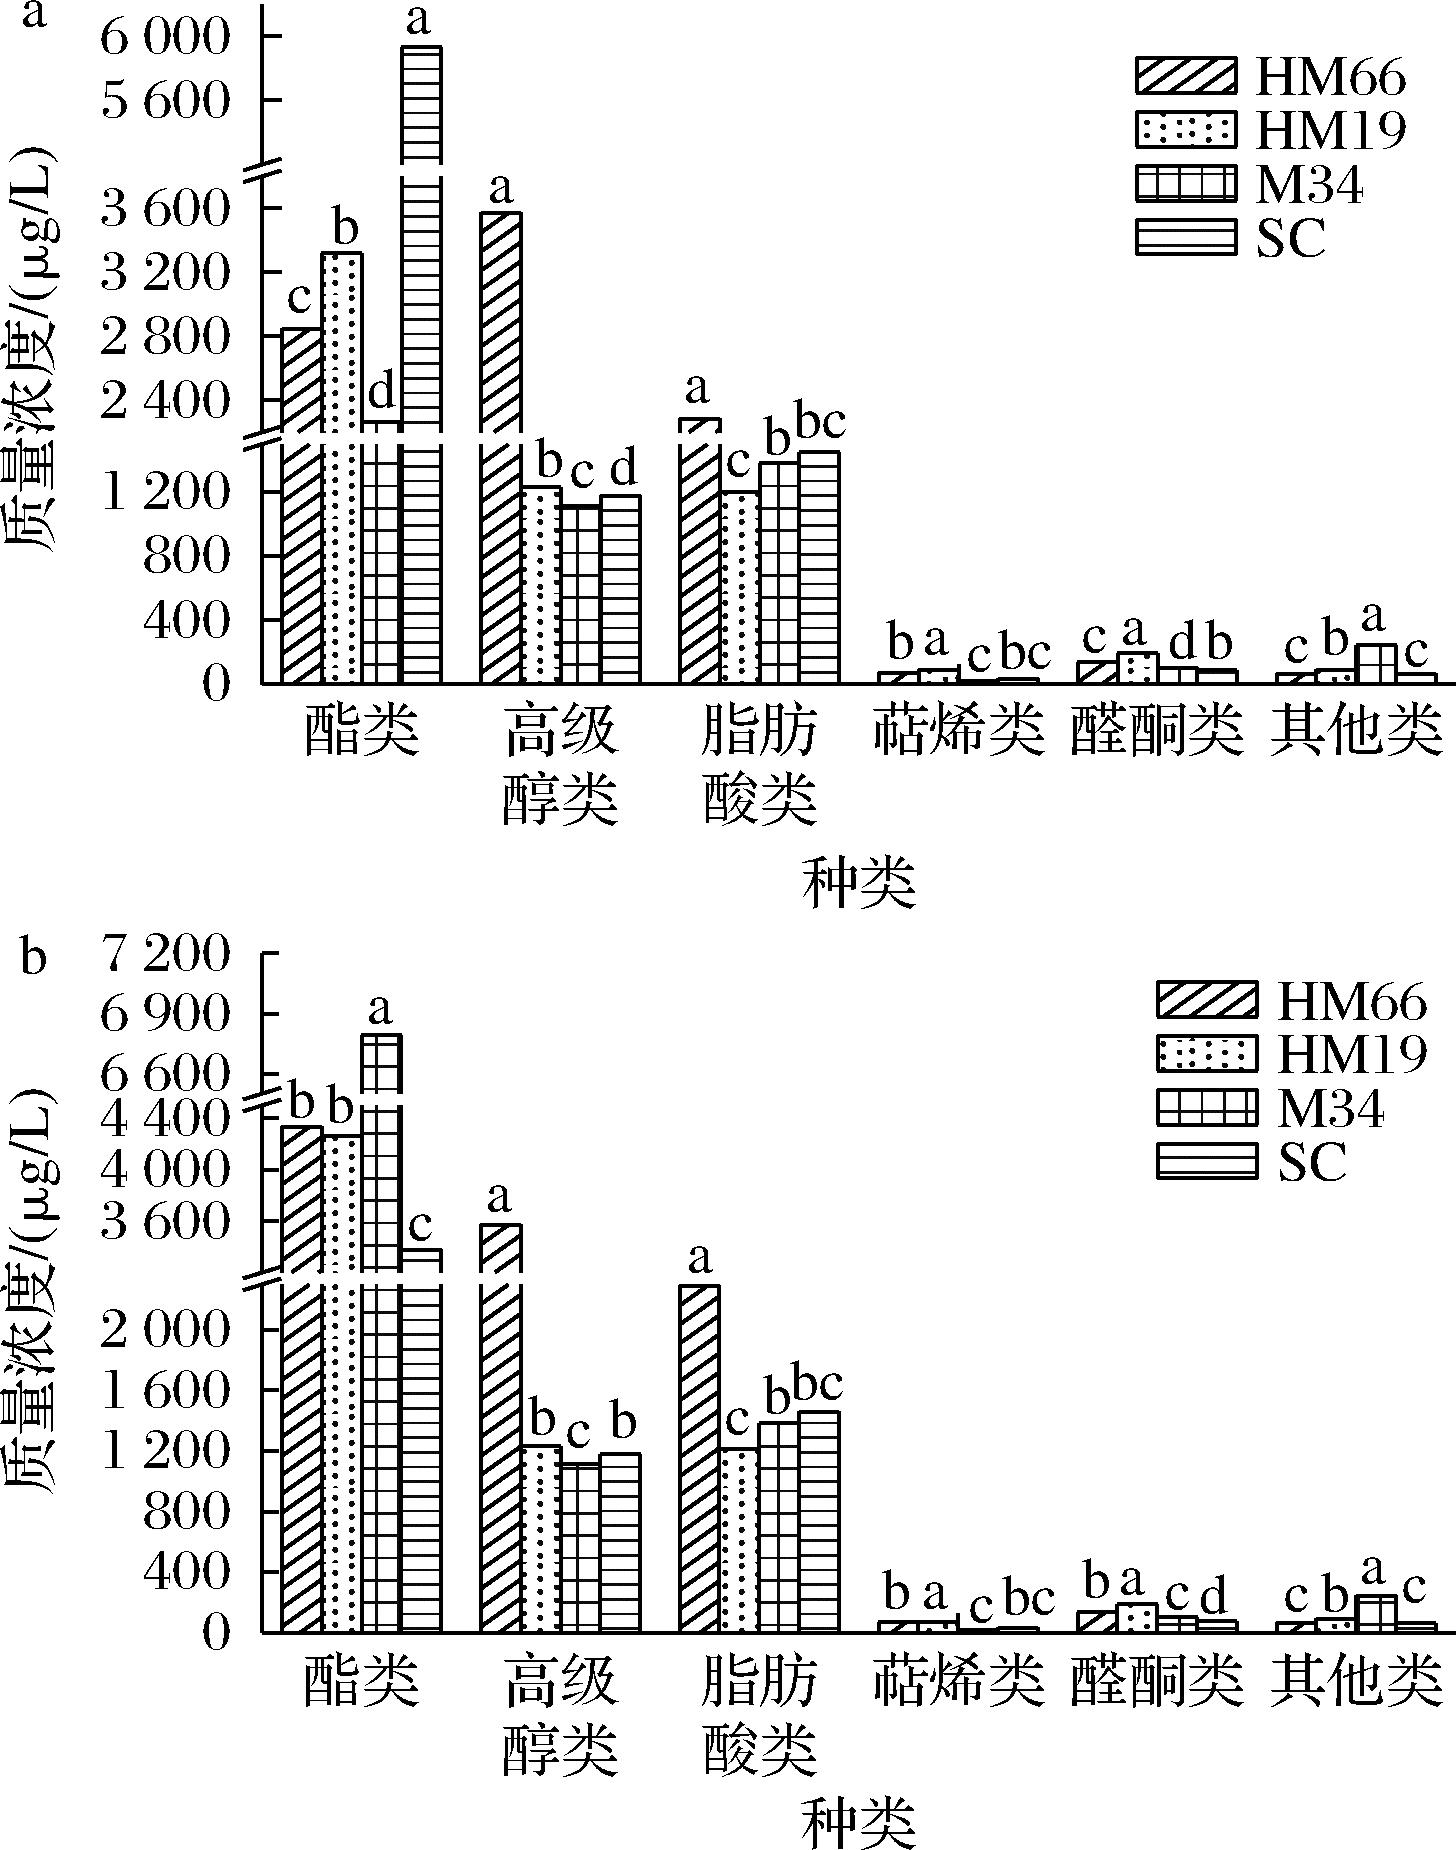
a-黑比诺;b-长相思
图6 不同酒样挥发性化合物的含量
Fig.6 Volatile compound contents in different wine samples
注:不同小写字母表示显著差异(P<0.05)。
2.7.3 感官分析
如图7所示,菌株HM66发酵的长相思酒样(C-HM66)在整体协调性、强度、浓郁度上评分最优(接近9.0),显著优于对照菌株C-SC(评分≤7.0),其代谢产生的甘油与果香酯类可有效平衡长相思的高酸度,提升酒体圆润度与果香浓郁度(图7-a);C-M34可增强风味复杂性,C-HM19有助于优化酒体平衡性。由图7-b可知,HM66菌株发酵的黑比诺酒样在整体协调性、强度、浓郁度、花香、果香等核心感官指标上评分最高(≥8.5),显著优于对照菌株SC(评分≤7.0),反映该菌株可高效强化黑比诺果皮酚类物质提取与芳香酯合成;H-HM19在体感结构维度表现突出,H-M34可提升风味复杂性。菌株HM66在黑比诺与长相思葡萄酒中均展现出普适性品质提升效应,而不同菌株的特异性优势(如M34提升风味复杂性、HM19优化酒体平衡感),为葡萄酒风味的定向调控提供了精准菌株选择依据。相较于商业酵母SC的弱势表现,S.boulardii可作为黑比诺、长相思葡萄酒品质升级的高效发酵菌株,为葡萄酒产业的精准化生产提供技术支撑。
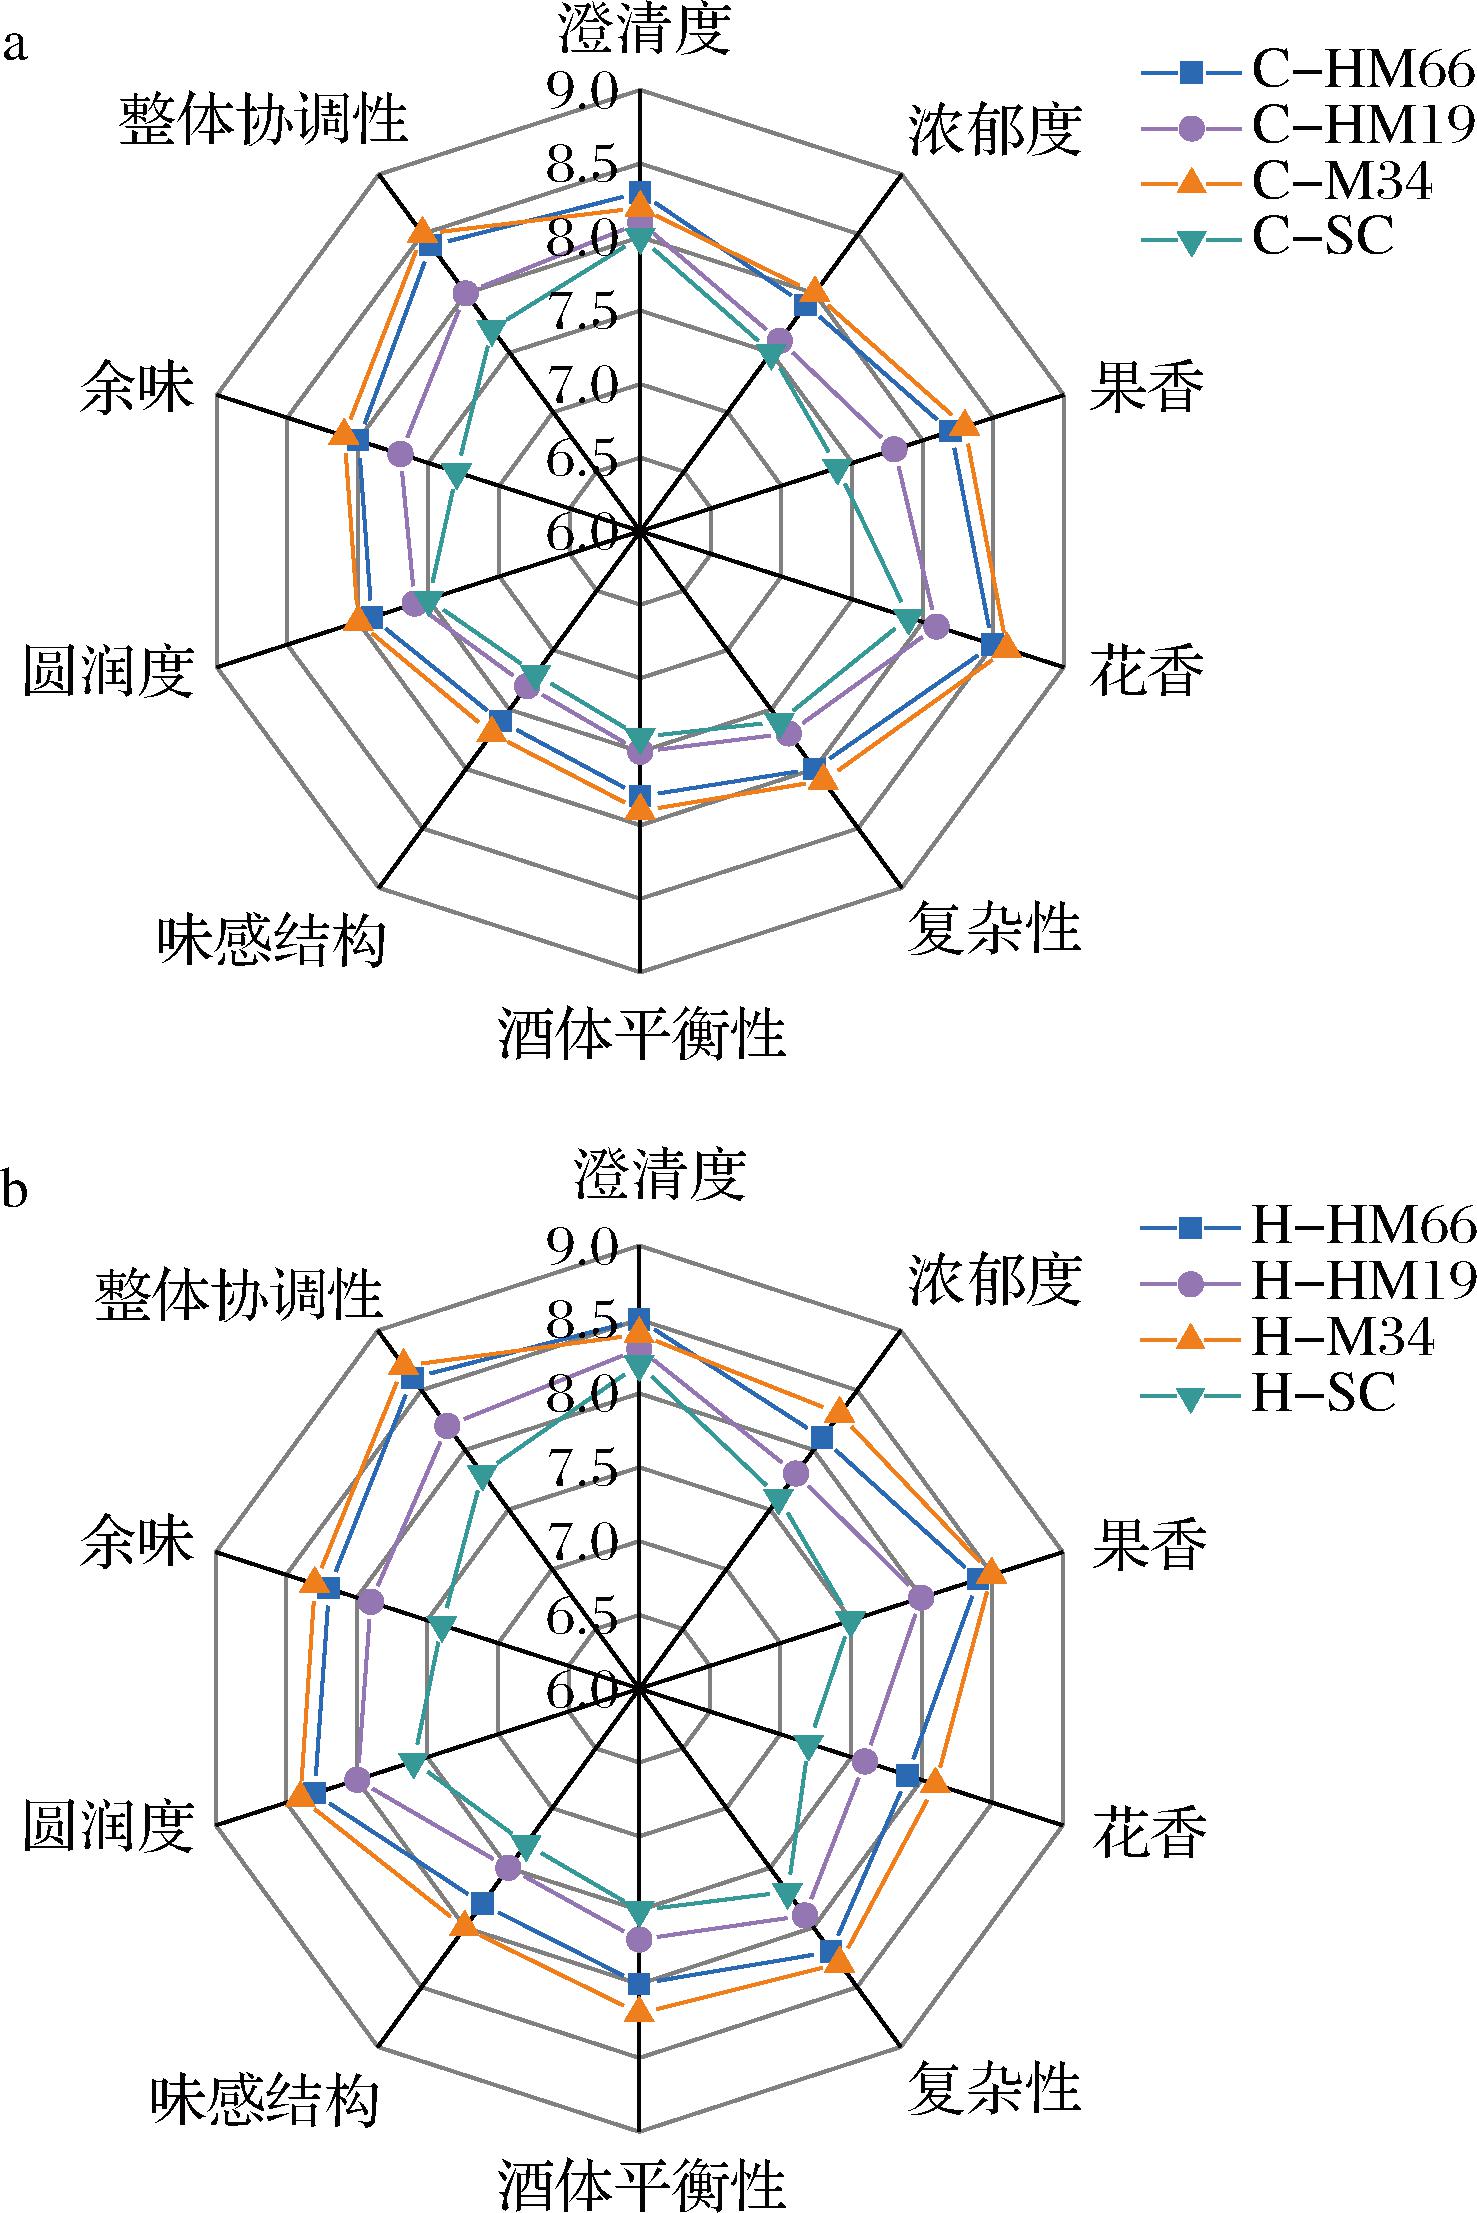
a-长相思;b-黑比诺
图7 不同酒样感官评分雷达图
Fig.7 Sensory evaluation radar chart in different wine samples
3 结论
本研究以从河西走廊葡萄酒产区分离的6株本土S.boulardii为对象,通过系统评价其生长动力学、发酵性能、多重环境耐受性(乙醇、高糖、SO2、pH)、絮凝性、产H2S能力及嗜杀活性等关键酿酒学特性,并与商业酿酒酵母SC进行比较,成功筛选出3株兼具优良酿造潜力与特色功能的候选菌株:M34、HM66与HM19。研究结果表明,菌株M34展现出均衡且突出的综合性能:其发酵启动迅速(24 h CO2释放量与SC相当),具有较高的乙醇耐受性(耐受15%乙醇),同时为低H2S产型且具有显著嗜杀活性,在后续葡萄酒发酵试验中表现出最优的糖转化效率与发酵稳定性,理化指标符合国家标准,展现出替代商业酵母、酿造优质干型葡萄酒的潜力。菌株HM66的优势在于快速的生长适应性与生物竞争能力,生物量积累高,并具有强嗜杀活性,虽然其乙醇耐受性及发酵力稍弱,但适合作为发酵启动快、需生物防控的酿造场景的补充菌株,或用于偏高酸度风格的葡萄酒酿造。菌株HM19则表现出优异的发酵续航力与胁迫适应性:其在发酵中后期(48~72 h)代谢活性强,对高糖(350 g/L)环境具有突出耐受性,且耐酸能力较好,尽管产H2S为中等水平,但可通过工艺调控进行管理,适合应用于高糖原料或需保持高酸特性的特色葡萄酒酿造。S.boulardii菌株不仅增加香气种类,还显著提升酯类、萜烯类等关键物质的浓度,且展现出“功能分化”与“品种适配性”。筛选所得的3株S.boulardii菌株分别在高效率发酵、快速启动与生物防护、高糖高酸适应等方向上具有明确的应用指向,不仅为我国葡萄酒酵母资源库提供了具有自主知识产权的特色菌种,也为开发兼具区域风土表达与健康功能属性的新一代葡萄酒发酵剂奠定了重要的理论依据与菌种资源基础。
[1] Tzamourani A, Lytra G, Goulioti E, et al.Profound analysis of the impact of indigenous Saccharomyces cerevisiae strains on the chemical and sensorial profile of assyrtiko wine[J].ACS Food Science &Technology, 2025, 5(6):2286-2295.
[2] Capozzi V, Garofalo C, Chiriatti M A, et al.Microbial terroir and food innovation:The case of yeast biodiversity in wine[J].Microbiological Research, 2015, 181:75-83.
[3] Luzzini G, Slaghenaufi D, Ugliano M.Volatile compounds in monovarietal wines of two amarone della valpolicella terroirs:chemical and sensory impact of grape variety and origin, yeast strain and spontaneous fermentation[J].Foods, 2021, 10, 2474.
[4] Agarbati A, Canonico L, Ciani M, et al.Fitness of selected indigenous Saccharomyces cerevisiae strains for white Piceno DOC wines production[J].Fermentation, 2018, 4(2):37-37.
[5] Kopacz K, Phadtare S.Probiotics for the prevention of antibiotic-associated diarrhea[J].Healthcare, 2022, 10(8)::1450.
[6] Strejfeck O, Sulc M, Jelinkova M, et al.Comparative genomics of probiotic yeast Saccharomyces boulardii reveals high genome divergence and specific adaptations[J].Genomics, 2025, 117(1):110804.
[7] Bendelja Ljolji D, Dolen
 i
 Pehar I, Tudor Kalit M, et al.The potential of using Saccharomyces boulardii yeast in fermented milk products[C] Proceedings of the 58th Croatian &18th International Symposium on Agriculture.Zagreb, 2023:363-367.
[8] Ricci G, Gabrielli M, Magni L, et al.Saccharomyces boulardii:mechanisms of action, clinical indications, and future perspectives[J].Microorganisms, 2023, 11(6):1558.
[9] 冯丹萍, 何荣荣, 程思琦, 等.本土酵母NX11424对赤霞珠葡萄酒发酵中酵母菌多样性及香气成分的影响[J].微生物学通报, 2022, 49(9):3722-3739.Feng D P, He R R, Cheng S Q, et al.Effects of indigenous yeast NX11424 inoculation on the yeast diversity and aroma compounds during Cabernet Sauvignon wine fermentation[J].Microbiology China, 2022, 49(9):3722-3739.
[10] 耿海波. 优良耐酸酿酒酵母的筛选及发酵特性研究[J].中国酿造, 2021, 40(10):152-156.Geng H B.Screening and fermentation characteristics of superior acid-tolerant Saccharomyces cerevisiae[J].China Brewing, 2021, 40(10):152-156.
[11] 梁丽红. 接种发酵对葡萄酒微生物多样性和风味的影响及优选菌株呈香机制研究[D].兰州:甘肃农业大学, 2023.Liang L H.Effects of inoculation fermentation on microbial diversity and flavor of wine and the aroma mechanism of optimized strains[D].Lanzhou:Gansu Agricultural University, 2023.
[12] 吴健, 何伟, 王建成, 等.酿酒酵母与产香酵母发酵特性及其相互作用规律[J].食品与发酵工业, 2020, 46(20):78-87.Wu J, He W, Wang J C, et al.Fermentation characteristics and interaction of Saccharomyces cerevisiae and aroma-producing yeast[J].Food and Fermentation Industries, 2020, 46(20):78-87.
[13] De Ullivarri M F, Mendoza L M, Raya R R, et al.Killer phenotype of indigenous yeasts isolated from Argentinian wine cellars and their potential starter cultures for winemaking[J].Biotechnology Letters, 2011, 33(11):2177-2183.
[14] 闫兴敏, 姜娇, 高辉, 等.优良本土酿酒酵母的酿酒特性及产香能力初析[J].食品与发酵工业, 2022, 48(4):62-68.Yan X M, Jiang J, Gao H, et al.Oenological properties of superior indigenous Saccharomyces cerevisiae and their production of volatile compounds[J].Food and Fermentation Industries, 2022, 48(4):62-68.
[15] 孔维涛, 张先舟, 王羽, 等.高产酵母壁多糖菌株的选育及其酿造性能研究[J].中国酿造, 2012, 31(4):111-114.Kong W T, Zhang X Z, Wang Y, et al.Screening of Saccharomyces cerevisiae with high wall polysaccharide production and study on its vinification properties[J].China Brewing, 2012, 31(4):111-114.
[16] Gao P P, Peng S, Sam F E, et al.Indigenous non-Saccharomyces yeasts with β-glucosidase activity in sequential fermentation with Saccharomyces cerevisiae:A strategy to improve the volatile composition and sensory characteristics of wines[J].Frontiers in Microbiology, 2022, 13:845837.
[17] 赵美, 田秀, 李敏, 等.粟酒裂殖酵母与酿酒酵母共同接种发酵对‘黑比诺’干红葡萄酒品质的影响[J].食品科学, 2021, 42(24):108-116.Zhao M, Tian X, Li M, et al.Effect of mixed culture fermentation with Schizosaccharomyces pombe and Saccharomyces cerevisiae on the quality of ‘Pinot Noir’Dry red wine[J].Food Science, 2021, 42(24):108-116.
[18] 杨惠婷. 浙江地区酿酒酵母的优选鉴定及发酵特性的研究[D].呼和浩特:内蒙古农业大学, 2022.Yang H T.Selection and identification of optimal Saccharomyces cerevisiae and fermentation characteristics in Zhejiang region[D].Hohhot:Inner Mongolia Agricultural University, 2022.
[19] Wang J, Yan J J, Gao H F, et al.Comparative metabolic profiling of Cabernet Sauvignon wines reveals the potential of different Wickerhamomyces anomalus co-fermented with commercial Saccharomyces cerevisiae[J].LWT, 2023, 186:115229.
[20] 刘安, 王丹阳, 王振, 等.高耐受性酿酒酵母的适应性驯化选育与发酵[J].微生物学通报, 2024, 51(3):1018-1032.Liu A, Wang D Y, Wang Z, et al.A Saccharomyces cerevisiae strain with high tolerance:Breeding by gradual acclimation and fermentation performance[J].Microbiology China, 2024, 51(3):1018-1032.
[21] 黄庆, 苏圆媛, 左勇, 等.耐受高浓度乙醇酿酒酵母的定向驯化及其在桑葚果酒中的应用初探[J].食品与发酵工业, 2023, 49(12):166-173.Huang Q, Su Y Y, Zuo Y, et al.Directional domestication of Saccharomyces cerevisiae tolerant to high concentration ethanol and its application in mulberry wine brewing[J].Food and Fermentation Industries, 2023, 49(12):166-173.
[22] Romano C, Suzzi G.Wine yeast fermentation performance:Effect of sugar concentration and temperature on ethanol production[J].International Journal of Food Microbiology, 2021, 345:109456.
[23] Rodrigues B, Peinado J M, Raposo S, et al.Kinetic and energetic parameters of carob wastes fermentation by Saccharomyces cerevisiae:Crabtree effect, ethanol toxicity, and invertase repression[J].Journal of Microbiology and Biotechnology, 2015, 25(6):837-844.
[24] 付肖蒙, 王鹏飞, 郝爱丽, 等.高耐性酿酒酵母的筛选及其耐受性研究[J].中国酿造, 2017, 36(10):23-26.Fu X M, Wang P F, Hao A L, et al.Screening of high tolerance Saccharomyces cerevisiae and its tolerance[J].China Brewing, 2017, 36(10):23-26.
[25] Petrovic M, Jovanovic V.Resistance to sulfur dioxide as a criterion for selecting Saccharomyces cerevisiae for organic winemaking[J].Journal of Food Protection, 2025, 88(8):1345-1352.
[26] 陈雨, 杨雪峰, 郭安鹊, 等.葡萄汁pH值对酿酒酵母生长及挥发性香气物质的影响[J].食品科技, 2021, 46(5):192-197.Chen Y, Yang X F, Guo A Q et al.The effect of grape juice pH on the growth of Saccharomyces cerevisiae and volatile aromatic compounds[J].Food Science and Technology, 2021, 46(5):192-197.
[27] 田甜甜, 孙军勇, 蔡国林, 等.基于转录组学的酿酒酵母耐酸机制解析[J].食品与发酵工业, 2020, 46(6):1-7.Tian T T, Sun J Y, Cai G L, et al.Transcriptomic profiling reveals the acid-tolerance mechanism of Saccharomyces cerevisiae[J].Food and Fermentation Industries, 2020, 46(6):1-7.
[28] 张驰, 李宛格, 钮成拓, 等.枇杷果酒酿酒酵母的筛选及其发酵性能研究[J].食品与发酵工业, 2025, 51(13):135-143.Zhang C, Li W G, Niu C T, et al.Screening of strains for brewing loquat wine and study on its fermentation performance[J].Food and Fermentation Industries, 2025, 51(13):135-143.
[29] Simon M, Christiaens R, Janssens P, et al.Unexpected behavior of a maltose-negative Saccharomyces cerevisiae yeast:Higher release of polyfunctional thiols from glutathionylated than from cysteinylated S-conjugates[J].Fermentation, 2024, 10(6):276.
[30] Morejon B, Michel K.A zone-of-inhibition assay to screen for humoral antimicrobial activity in mosquito hemolymph[J].Frontiers in Cellular and Infection Microbiology, 2023, 13:891577.
[31] 叶冬青, 孙悦, 李莹, 等.本土酿酒酵母与商业酵母混菌发酵特性研究[J].中国食品学报, 2021, 21(4):90-98.Ye D Q, Sun Y, LI Y, et al.Studies on the characteristics of mixed fermentation with indigenous and commercial Saccharomyces cerevisiae[J].Journal of Chinese Institute of Food Science and Technology, 2021, 21(4):90-98.
[32] Zhong V, Ketchum N, Mackenzie J K, et al.Inhibition of diastatic yeasts by Saccharomyces killer toxins to prevent hyperattenuation during brewing[J].Applied and Environmental Microbiology, 2024, 90(10):e01072-e01024.
[33] 王艳, 李华, 袁春龙.酿酒酵母对代谢低聚糖的研究进展[J].食品发酵与工业, 2024, 50(22):281-288.Wang Y, Li H, Yuan C L.Advances in the study of metabolic oligosaccharides by Saccharomyces cerevisiae[J].Food Fermentation and Industry, 2024, 50(22):281-288.
[34] Wu Z L, Gao J Q, Gao N, et al.Engineering chronological lifespan toward a robust yeast cell factory[J].Proceedings of the National Academy of Sciences of the United States of America, 2025, 122(46):e2515324122.
[35] Feifel K, Schreier P.Acid composition and its impact on sensory quality and microbial stability of wine[J].Journal of Food Quality, 2022:8976542.